Материал: 4 занятие бх
Вопрос 8. Аминокислотный пул организма
В жидкой среде организма постоянно имеется определенное количество свободных аминокислот. Они образуют аминокислотный пул. Для человека массой 70 кг величина этого пула - 30 гр.
Этот пул всегда пополняется за счет трех основных процессов.
всасывание или поступление аминокислот из кишечника - так называемые пищевые а/к
распад тканевых белков
синтез заменимых аминокислот.
Если речь касается пула отдельной аминокислоты то вы должны определить заменимая это аминокислота или нет. Если незаменимая, то только 2 источника.
Аминокислоты постоянно изымаются из пула для использования в самых различных метаболических процессах, что можно отразить на схеме.
Пищевые АК Распад тканевых белков Синтез АК
Синтез белков Окислительный распад
Аминокислотный пул
Синтез полипептидов АцетилКоА пурины, пиримидины Превращение в углеводы и липиды
гормоны, холин, креатин, таурин
Несомненно, что большее количество аминокислот из пула изымается на синтез белков.
Второй путь использования ам. к. это окислительный распад до конечных продуктов. Около 100 гр распадается, обеспечивая 10-15 % необходимой энергии для жизнедеятельности человека.
Третий путь использование - синтез из ам.к. углеводов и липидов. Глюконеогенез идет достаточно интенсивно.
Четвертый путь - синтез других азотосодержащих соединений (креатин, холин, сфингозин, гем).
Синтез азотистых оснований нуклеотидов
Синтез биогенных аминов
Синтез других аминокислот за счет реакции трансаминирования
Синтез гормонов - производных аминокислот
Вопрос 9. Трансаминирование, его биологическая роль
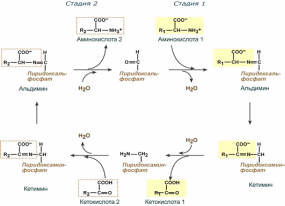
Механизм реакции трансаминирования непрост и протекает по типу "пинг-понг". Катализируют реакцию ферменты аминотрансферазы, Они являются сложными ферментами, в качестве кофермента имеют пиридоксальфосфат (активная форма витамина В6).
пролина, лизина, треонина, которые не подвергаются трансаминированию.
Весь перенос аминогруппы совершается в две стадии:
к пиридоксальфосфату сначала присоединяется первая а/к, отдает аминогруппу, превращается в кетокислоту и отделяется. Аминогруппа при этом переходит на кофермент и образуется пиридоксаминфосфат.
на второй стадии к пиридоксаминфосфату присоединяется другая кетокислота, получает аминогруппу, образуется новая а/к и пиридоксальфосфат регенерирует.
Роль и превращение пиридоксальфосфата сводится к образованию промежуточных соединений – шиффовых оснований (альдимин и кетимин). В первой реакции после отщепления воды образуется иминовая связь между остатком аминокислоты и пиридоксальфосфатом. Полученное соединение называется альдимин. Перемещение двойной связи приводит к образованию кетимина, который гидролизуется по месту двойной связи. От фермента отщепляется готовый продукт – кетокислота.
После отщепления кетокислоты к комплексу пиридоксамин-фермент присоединяется новая кетокислота и процесс идет в обратном порядке: образуется кетимин, затем альдимин, после чего отделяется новая аминокислота.
Чаще всего аминокислоты взаимодействуют со следующими кетокислотами:
пировиноградной с образованием аланина,
щавелевоуксусной с образованием аспартата,
α-кетоглутаровой с образованием глутамата.
Однако аланин и аспартат в дальнейшем все равно передают свою аминогруппу на α-кетоглутаровую кислоту. Таким образом, в тканях осуществляется поток избыточных аминогрупп на один общий акцептор – α-кетоглутаровую кислоту. В итоге образуется большое количество глутаминовой кислоты.
Далее глутаминовая кислота может вовлекается в процессы связывания аммиака (синтез глутамина) либо в прямое окислительное дезаминирование.
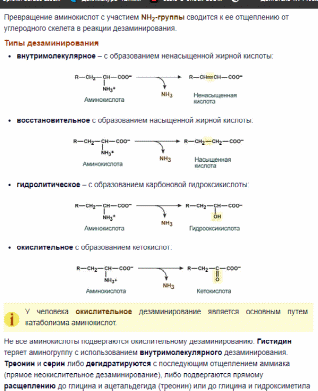
Вопрос 10.Дезаминирование а/к
Вопрос 11.Трансдезаминирование а/к
Непрямое окислительное дезаминирование включает 2 этапа и активно идет во всех клетках организма.
Первый этап заключается в обратимом переносе NH2-группы с аминокислоты на кетокислоту с образованием новой аминокислоты и новой кетокислоты при участии ферментов аминотрансфераз. Этот перенос называется трансаминирование и его механизм довольно сложен.
В качестве конечной кетокислоты-акцептора ("кетокислота 2") в организме обычно используется α-кетоглутаровая кислота, которая превращается в глутамат ("аминокислота 2").
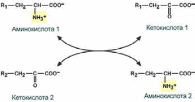
В результате трансаминирования свободные аминокислоты теряют α-NH2-группы и превращаются в соответствующие кетокислоты. Далее их кетоскелет катаболизирует специфическими путями и вовлекается в цикл трикарбоновых кислот и тканевое дыхание, где сгорает до СО2 и Н2О.
Второй этап состоит в отщеплении аминогруппы от аминокислоты 2 – дезаминирование.
Т.к. в организме коллектором всех аминокислотных аминогрупп является глутаминовая кислота, то только она подвергается окислительному дезаминированию с образованием аммиака и α-кетоглутаровой кислоты. Этот этап осуществляется глутаматдегидрогеназой ,которая имеется в митохондриях всех клеток организма, кроме мышечных.
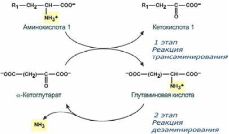
реакция активируется при дефиците энергии и ингибируется избытком АТФ и НАДН.
Роль трансаминирования и трансдезаминирования:
активируются в печени, мышцах и других органах при поступлении в клетку избыточного количества тех или иных аминокислот – с целью оптимизации их соотношения,
обеспечивают синтез заменимых аминокислот в клетке при наличии их углеродного скелета (кетоаналога),
начинаются при прекращении использования аминокислот на синтез азотсодержащих соединений (белков, креатина, фосфолипидов, пуриновых и пиримидиновых оснований) – с целью дальнейшего катаболизма их безазотистого остатка и выработки энергии,
необходимы при внутриклеточном голодании, например, при гипогликемиях различного генеза – для использования безазотистого остатка аминокислот в печени для кетогенеза и глюконеогенеза, в других органах – для его прямого вовлечения в реакции цикла трикарбоновых кислот.
Процесс трансдезаминирования идет в организме непрерывно, потому что:
сопряженные реакции трансаминирования и дезаминирования создают поток лишнего аминного азота из периферических клеток в печень для синтеза мочевины и в почки для синтеза аммонийных солей.