Курсовая работа (т): Биологические особенности симы в связи с ее искусственным разведением
Сима заходит в реки вскоре после ледохода. В южных реках Сахалина ход длится с середины или конца мая до середины июля, массовый - во второй половине июня; в средней части острова и севернее сроки сдвигаются на 10-15 дней. Заход симы в реки западного побережья Камчатки отмечается с середины июня по 10-15 июля. В южных реках Приморья миграция и нерест проходят позже. Миграция в реки начинается при температуре воды от 4 до 120. В течение суток ход интенсивнее в первой половине дня, слабеет примерно с 15 до 18 часов, в сумерки усиливает, а ночью ослабевает. Со времени захода в реки до начала нереста проходит значительное время.
Поднимаясь по реке, рыба постепенно созревает. Покровы начинают утрачивать серебристость, спинка темнеет, по бокам тела обозначается до 17-18 розоватых поперечных полос, чередующимися с темными оливково-зеленоватыми полосами. У самцов намечается горб, увеличиваются челюсти, растут зубы. Сима для размножения поднимается в верховьях нерестовых рек или заходит в мелкие притоки. В местах ее массового нереста родственные виды не размножаются. Дно нерестилищ каменисто-песчаное. В расширенных участках, напоминающих перекаты равнинных рек, нерестится по нескольку самок. Но и на таких нерестилищах гнезда располагаются редко. Около самок держится обычно один (редко два) проходной и несколько карликовых самцов. Нерестовые бугры имеют обычно в плане форму овала, вытянутого вдоль течения на 1-3,5 м и имеющего поперечник от 0,5 до2 м. Сима чаще нерестится на глубине 10-20 см и вершины бугров обнажаются уже после небольшого спада воды. Икра находится обычно на 15-20 см от вершин свежих бугров.
Сперматогонии симы достигают 6,7 мкм в среднем
диаметре. Эти клетки имеют большое округленное ядро с неравномерно
распределенным хроматином и диаметром в среднем около 5,2 мкм. В цитоплазме
присутствуют половые детерминанты (электронно-плотные структуры, состоящие из
рыхлого материала, не окруженные мембраной). Как правило возле таких структур
локализованы митохондрии. Митохондрии диаметром 0,5 мкм присутствуют во всей
цитоплазме в большом количестве, в основном имеют округлую или овальную форму и
прозрачный матрикс с большим количеством крист. В цитоплазме присутствуют
центриоли (рис. 2,а).
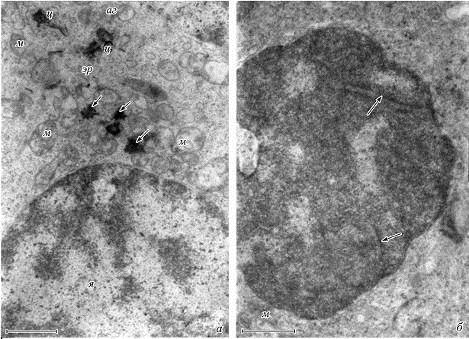
Рис. 3. Сперматогенные клетки в гонадах симы Oncorhynchus masou
а -сперматогоний: стрелками указан «нуаж»; б-сперматоцит I порядка: стрелками указан синоптонемальный комплекс. аг-аппарат Гольджи; ц- центриоли; м-митохондрии; эр-эндоплазматический ретикулум
Ядра содержат неравномерно распределенный конденсированный хроматин. На стадии пахинемы в ядрах присутствуют синаптонемальные комплексы - маркеры первичных сперматоцитов (рис. 2,б) . В цитоплазме располагаются различной величины неправильной формы митохондрии.
Сперматоциты второго порядка аналогичны сперматоцитам первого порядка и отличаются от них только меньшими размерами. Особенностью спермиогенеза является образование АС, которая возникает путем совмещения апикального утолщения ядерной мембраны и электронно-светлой везикулы. На стадии позднего спермиогенеза везикула исчезает и сохраняется только базальная часть акросомноподобного комплекса в виде ядерного утолщения. На последнем этапе конденсации хроматина этот элемент исчезает. В сформированных спермиях какие-либо акросомальные элементы отсутствуют.
Сперматозоиды имеют головку пулеобразной формы. В головке содержится ядро, заполненное электронно-плотным хроматином. В базальной части ядра имеется инвагинация, включающая в себя проксимальную и дистальную центриоли (Незнанова и др.,2009).
1.2
Эмбриональное развите
Эмбриональный период развития симы делится на 12 этапов.
этап (обводнение осемененных икринок, образование зародышевого диска): при 9,20 длится 45-50 мин. Яйцевые оболочки прозрачнее, чем у горбуши или кеты. У осемененной икры интенсивность дыхания возрастает. При 8,40 зародышевый бугорок формируется через 12 час. после осеменения.
этап (дробление зародышевого диска): при
стабильной температуре дробление начинается спустя 13-14 час. и требуется еще 1
час, чтобы два бластомера сформировались у всех яиц. Второе и четвертое
дробление наступает с периодичностью около 4 час. после третьего деления контур
зародышевого диска принимает форму овала (рис.4, А-Г). Четвертая борозда
деления проходит в экваториальной плоскости.
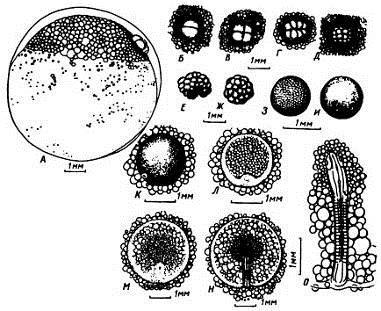
Рис. 3. Развитие симы от первых стадий дробления до начала формирования головы и туловища
А-живая
икринка с 4 бластомерами, зарисованная в проходящем свете. Б-Д -
бластодиски с прилежащими участками желтка на стадиях от 2 до 16 бластомеров. Е-И
- бластодиски более поздних стадий дробления до многоклеточной морулы
включительно, снятые с желтка. К - бластула. Л-стадия «краевого
узелка». М -стадия «краевого язычка». Н -формирование первых
мезодермальных сегментов, длина эмбриона 1,9 мм. О -эмбрион длиной 3,3
мм, стадия 20 сегментов
этап (бластула): за несколько часов до исхода пятых суток зародышевые диски начинают увеличиваться, формируется бластула (рис. 3, К). этап длится немного более суток.
этап (гаструляция): бластодиски становятся плоскими. Начинается дифференцировка зародышевых пластов (рис. 3,Л), образуется «краевой язычок» (рис. 3, М). При средней температуре 8,70 этап длится около 4 сут.
этап (формирование головы и туловища зародыша):
зародыш вырос до 2-2,2 мм. Появились первые сомиты, начались дифференцироваться
отделы головного мозга, наметились зачатки глаз (рис. 3, Н). На 11-12
сут. при 11-12 сомитах видны зачатки слуховых пузырьков, начали формироваться
хрусталики. В возрасте 12 сут. бластодерма охватывает примерно половину сферы
желточного мешка. Стали заметны обонятельные плакоды (рис. 3, О).
Обособляется хвостовая почка. После того, как бластодерма закрывает больше
половины желточного мешка, чувствительность икры к механическим агентам
понижается.
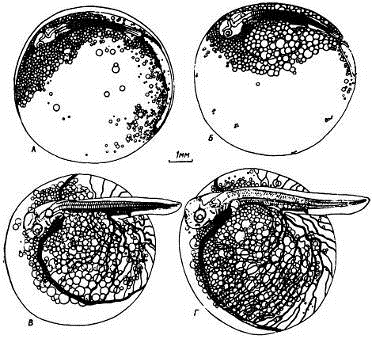
А - эмбрион
длиной 5,0 мм с 43 сегментами. Б - стадия начала кровообращения, длина
эмбриона 5,6 мм. В - стадия появления пигмента в глазах, длина эмбриона
7,2 мм, 79 сегментов. Г-эмбрион длиной 8,2 мм с 71 сегментом.
Прижизненная зарисовка; рис. Б-Г сделаны с эмбрионов, извлеченных из-под
оболочек
6 этап (обособление задней части тела зародыша от поверхности желточного мешка): появляются хвостовые миотомы и задний участок туловища начинает обособляться от желточного мешка. на этой стадии стенки сердечной трубки начинают волнообразно сокращаться (рис. 4, А). К началу этапа сформировались хрусталики, появились мелкие отолиты, выявились зачатки жаберных крышек. Бластодерма практически полностью покрыла желточный мешок. В течение этапа завершается процесс эпиболии. Желточная пробка закрывается в середине или конце 17 сут. Чувствительность икры в это время высокая.
этап (развитие подкишечно-желточной системы кровообращения): циркуляция крови начинается в возрасте 17 сут. У некоторых из них в это время еще сохраняется небольшая желточная пробка (рис.4,Б). Первоначально кровь по спинной аорте протекает только до 1-2-го хвостовых миотомов и содержит мало форменных элементов. В начале этапа намечается ротовая воронка, выявляются зачатки нижних челюстей, голова начинает отделяется от желточного мешка. позади зачатков грудных плавничков живых эмбрионов просматриваются клубочки пронефроса и зачаток печени. Эмбрионы энергично поводят хвостом и иногда переваливают тело то на один, то на другой бок.
После начала кровообращения сосуды обильно заполняются эритроцитами, длина хвостовых артерий и вены увеличиваются, на желточном мешке появляется все больше капилляров. После начала кровообращения существенно возрастает интенсивность обмена.
этап (возникновение кардинальных вен и
смешанного подкишечно-желточного и печеночно-желточного кровообращения):
кардинальные вены образуются в возрасте 18-19 сут. Имеются правая и левая ветви
краевой вены желточного мешка. На нем заметно возрастает площадь, покрытая
капиллярами и их густота. Возникает печеночное кровообращение. Ускоряется рост
эмбриона. К исходу 22 сут. эмбрионы достигли длины 6,8-7,2 мм (рис. 4, В).
Голова отделилась от желточного мешка. Появляется задняя брыжеечная артерия. К
концу этапа заканчивается сегментация хвоста, глаза становятся серыми, в
статоакустических каналах четко выявляются полукружные каналы и образуются
крупные отолиты. Сформировалось две пары жаберных артерий. По всему туловищу
образовались сегментальные сосуды (рис. 4, Г). При температуре 9,5-9,70
этап продолжается около 7 сут.
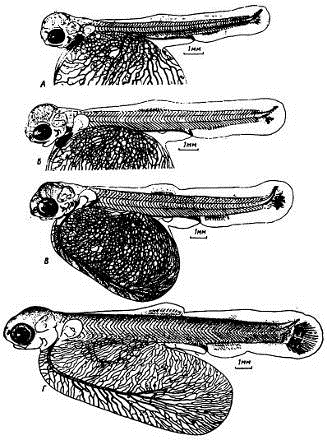
Рис. 5. Эмбрионы симы, извлеченные из-под оболочек
А - стадия
закладки непарных плавников, длина эмбриона 11,8 мм. Б - стадия закладки
брюшных плавников, длина эмбриона 13,5 мм. В - начало дифференциации
жирового плавника, длина эмбриона 15,9 мм. Г - зародыш во время
массового вылупления, длина 20,0 мм; его развитие проходило при средней
температуре 9,90, возраст 53 сут.
этап (формирование печеночно-желточной системы кровообращения): в возрасте 25-26 сут. подкишечно-желточная вена пустеет и с этого времени желточный мешок снабжается кровью только через печень. К началу этапа спинная плавниковая складка разрастается до первых миотомов и в дальнейшем только расширяется. Намечается закладка непарных плавников. Глаза чернеют, жаберные крышки закрывают первую пару жабер. Формируются 3 гипуралии, закладываются первые лучи в лопасти плавника, начинает развиваться капиллярная сеть, хвостовой плавник утрачивает симметрию. Заметно удлиняются грудные плавники (рис. 5, А).
На 28-е сутки начинается кровоснабжение третьей, а через сутки и 4-й пары жабер. Появляются гиодные дуги аорты. Желточная вена принимает вентральное положение. В возрасте 29 сут. на верхней поверхности головы появляются многочисленные мелкие липофоры яркой красной окраски.
этап (дифференцировка верхних и нижних конусов миотомов):у некоторых эмбрионов в возрасте 36 сут. В хвосте выявляются зачатки верхних и нижних конусов миотомов (рис. 5, Б). Обозначаются зачатки верхних челюстей. На 2-й и 3-й жаберных дужках появляются зачатки жаберных лепестков. Закладываются брюшные плавники, грудные плавники приобретают подвижность. Сегментальные сосуды образовывают сеть капилляров над спинным мозгом и у поверхности тела. На голове появляются меланофоры. Обозначаются железы вылупления. Эмбрионы приобретают способность хвостом производить волнообразные движения . увеличивается интенсивность дыхания.
этап (развитие подвижности челюстей, жаберных крышек, завершение инкубации): начало этапа на 38-40 сут., эмбрионы увеличиваются к началу этапа до 15 мм. Нижние челюсти полностью прикрывают ротовое отверстие. Челюстями и жаберными крышками эмбрионы совершают энергичные движения. Слуховые пузырьки максимально сближаются с глазами. Хвостовой плавник продолжает дифференцироваться. В спинном и анальном плавниках продолжают закладываться опорные элементы. Усиливается пигментация тела; появляются меланофоры неврального и гемального рядов. Жировой плавник начинает дифференциацию (рис. 5, В).
этап (пассивное состояние свободных зародышей): первые эмбрионы выходят из икринок на 48 сут., массовое вылупление на 52-53 сут., а последние эмбрионы вылупляются на 56 сут. Из непарной плавниковой складки вычленяется анальный, спинной плавники и обозначается контур жирового плавника. В грудных плавниках начали формироваться лучи. Ко времени вылупления глаза приобретают подвижность, жаберные крышки полностью прикрывают жабры. В жабрах и псевдобранхиях образуется сеть капилляров. Имеется небольшой зачаток плавательного пузыря, намечается вычленение желудка (Смирнов, 1975)
1.3
Постэмбриональное развитие
Вылупившиеся зародыши ведут себя пассивно и их реакции на внешние раздражители нечетки.
этап (формирование непарных и брюшных плавников, развитие плавательного пузыря): в возрасте 60-64 сут., когда сима достигает длины 23-25 мм, она перемещается навстречу потоку, положительно реагирует на прикосновение посторонних предметов, отрицательно относится к свету.
Рот зародышей принял полуконечное положение (рис. 6. А). Лучи хорошо выявились в спинном, анальном, грудных плавниках и начали формироваться в брюшных плавниках. Зародыши приобретают темную окраску, причем много хроматофоров появляется на непарной плавниковой складке. При температуре 9,4-9,60 через 25-30 сут. после вылупления на боках тела появляются темные пятна (рис. 6, Б). К этому времени на челюстях прорезаются зубы, хвост принимает симметричную форму и в нем намечается выемка. Брюшные плавники становятся подвижными. Возрастает вязкость желтка. Появляются первые пилорические придатки, начинают формироваться петли кишечной трубки, наблюдается слабая перистальтика. Начинается быстрый рост зачатка плавательного пузыря.
Зародыши время от времени поднимаются в толщу
воды, но долго плавать они еще не могут и вскоре опускаются на дно (Смирнов,
1975).
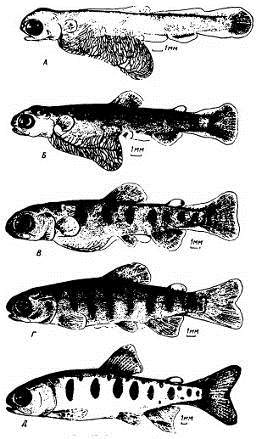
Рис.6. Сима разного возраста
А - свободный
зародыш длиной 25,1 мм. Б - свободный зародыш длиной 24,6 мм. В -
личинка длиной 28,3 мм. Г - сплывающая с нерестилища личинка длиной 32,5
мм. Д - малек длиной 48,7 мм
Личиночный период развития делится на 2 этапа: этап смешанного питания и этап экзогенного питания.
Этап смешанного питания наступает наступает через 35-40 дней после вылупления. Плавательный пузырь заполняется воздухом, кончики лепидотрихий разветвляются, поперечные темные пятна на боках становятся крупнее. При вскрытии личинок невооруженным глазом различается пол.
Личинки хорошо ориентируются в пространстве, в
толще воды двигаются во всех направлениях, активно захватывают мелкий живой и
искусственный корм. Утрачивается светобоязнь и положительная реакция на
прикосновения; такая смена поведения предшествует выходу симы из грунта.
Личиночный период длится 2 - 2,5 мес.
Глава 2. Влияние различных факторов среды на симу
2.1
Влияние температуры
Сима - самый южный и наиболее тепловодный представитель тихоокеанских лососей. Тихоокеанские лососи развиваются в относительно широком диапазоне температур - от 0,10 до 12-15°C. Сима, летняя кета, горбуша, чавыча, нерка могут переносить и более высокую температуру. Миграция симы в реки приурочена к весеннему паводку и, по сравнению с другими видами тихоокеанских лососей на Сахалине, протекает при невысокой температуре воды в реке (4 - 120 С). Массовый ход наблюдается при температуре 9 - 180С. Температура воды во время нереста (период летней межени) колеблется в пределах 8 - 110С. Инкубация икры симы в бугре продолжается в течении нескольких месяцев, в условиях постепенного снижения температуры с 10-12° в августе до 3-4° в январе-марте.
Максимальная температура для периода эмбрионального развития симы- 17,2° С.
Молодь стайками расселяется в верхнем и среднем течении рек на мелководьях с заиленным галечно-песчаным дном, слабым течением и хорошо прогретой водой (до 210С).
Первые покатные миграции симы начинаются в конце мая при температуре воды 7 - 80С и продолжаются до середины июня. Увеличивается число смолтов с повышением температуры до 13 - 180 С. Незначительное снижение интенсивности ската смолтов наблюдалось при похолодании до 10° С . Скатившаяся в море рыба расселяется по акватории его открытой части с температурными границами 8-120 С (Макеев и др.,2013).
На Сахалине экология ската симы имеет ряд региональных особенностей. В южных районах острова молодь скатывается с конца мая до I декады июня, в северных районах - с I декады июля по I декаду августа. Соответственно в южных районах скат начинается в период прохождения пика весеннего паводка, а основная масса молоди скатывается на спаде паводковой волны (реки Лютога, Очепуха). В реках северо-востока (Тымь, Богатая) сима скатывается после весеннего паводка при расходах воды,приближающихся к меженным. Соответственно в первых двух реках скат симы совпадает по времени со скатом молоди горбуши, во вторых двух - происходит после его окончания. Подобное смещение сроков ската обеспечивает для молоди симы разных рек попадание в сравнительно сходные температурные условия в море. Так, если поверхность воды в заливах Анива и Мордвинова прогревается в июне до 7-10 °С (обычно до 8-9 °С), то у северо-восточного Сахалина такой прогрев наступает лишь в июле. В пределах острова сима скатывается в сходных температурных условиях в реках. Скат начинается при прогреве воды до 7- 10 °С, основная масса скатывается при 10-12 °С. Однако в среднем и нижнем течении крупных рек (Тымь, Лютога) температура вода во время ската достигает 18-20 °С. Более 90 % особей симы на Сахалине скатывается в возрасте 1+ и 2+, при этом доля старших рыб увеличивается на севере острова. Сеголетки составляют незначительную часть мигрантов. Они были обнаружены лишь в Найбе.