Материал: физиология_соматовисц_сенсорной_системы
1.Роль соматовисцеральной сенсорной системы,ее морфофункциональная организация. Соматовисцералъная система включает рецепторы трех типов по месту их расположения:кожные рецепторы,мышечные исуставные рецепторы —проприоцепторы ивисцеральные рецепторы —инте-роцепторыОбщим свойством рецепторов соматовисцеральной системы является то, что они не образуют сенсорные органы, а широко распространены по всему телу. Кроме того, их афферентные волокна не образуют высокоспециализированные нервы, подобные зрительному и слуховому, а входят в многочисленные нервы тела и центральные тракты.Соматовисцеральная система перерабатывает сенсорную информацию нескольких модальностей, получая ее от кожи, мышц, суставов, внутренних органов и кровеносных сосудов. Она содержит разные типы рецепторов: механорецепторы, терморецепторы, хеморецепторы, осморецепторы, но-цицепторы. Поступающая информация передается по афферентным волокнам в составе чувствительных и смешанных нервов, перерабатывается раздельными проводящими путями и переключательными ядрами, а затем доставляется в соматосенсорную кору, занимающую постцентральные извилины мозга и организованную топически.
2.Перефирический отдел соматовисцеральной сенсорной системы.
2.1.Кожная механорепция(классификация рецепторов,механизмы их возбуждения)
На различных участках кожи человека расположены инкапсулированные механорецепторы, которые иннер-вируются миелинизированными афферентными волокнами диаметром 5-12 мкм, проводящими импульсы со скоростью 30-70 м/с.
По функции все механорецепторы делятся на
датчики давления стимула,
датчики скорости его воздействия
датчики ускорения.
В коже имеется также множество так называемых свободных нервных окончаний, на которых отсутствуют корпускулярные структуры. Афферентные волокна свободных нервных окончаний — не-миелинизированные аксоны со скоростью проведения 1 м/с. Геометрия свободных нервных окончаний весьма разнообразна. Свободные нервные окончания реагируют импульсом не более, чем на один уровень интенсивности — пороговый. Поэтому они считаются пороговыми датчиками, отмечающими наличие стимула в определенном месте кожи. Свободные нервные окончания принимают участие в передаче информации о слабых (околопороговых) движущихся по коже стимулах и имеют отношение к ощущению щекотки.
Ощущение давления илиприкосновения (тактильные ощущения) можно вызвать только в определенных точках кожи, которые называютсячувствительными тактильными точками. Большое число тактильных точек находится на коже кончиков пальцев и на губах. На коже, покрывающей плечи, бедра и спину тактильные точки встречаются редко, для появления тактильного ощущения на внутренней стороне руки достаточно вдавить кожу на глубину 0,01 мм (10 мкм). Пороги тактильных ощущений на кончиках пальцев значительно ниже, чем на остальной поверхности кисти. При помощи ножек циркуля с тупыми концами легко определяютсяпространственные пороги различения, то есть минимальные расстояния между двумя тактильными стимулами, при которых оказывается возможным воспринять их как раздельные. Одновременное касание кожи кончиками циркуля демонстрирует порогиодновременного пространственного различения. Эти пороги рассматриваются в качестве меры пространственного различения кожей тактильных стимулов в исследуемой части тела. Так, например, величины одновременного пространственного различения кончика языка, пальцев и губ — порядка 1-3 мм — свидетельствуют о высокой чувствительности этих областей тела. На спине, плечах и бедрах пространственное различение значительно хуже — 50- 100 мм. Различия чувствительности связаны с плотностью рецепторов в тех или иных областях тела.Из всех кожных механорецепторов наиболее изучены тельца Па-чини — детекторы коротких механических воздействий. Многократное частое раздражение этих рецепторов вызывает ощущение вибрации. Капсула тельца Пачини состоит их множества одинаковых слоев, вложенных друг в друга наподобие "матрешки". В сердцевине "матрешки" находится нервное окончание. Эта многослойная конструкция работает как высокочастотный фильтр: при кратковременном воздействии капсула деформируется и действует на нервное окончание. Если действие механического раздражителя продолжается, то происходит изменение расстояний между слоями капсулы, которое компенсирует постоянное давление на тельце Пачини и приводит к отсутствию деформации нервного волокна.
Капсула тельца Пачини деформируется при воздействии механического раздражителя и действует на нервное окончание. В нервном окончании возникает генераторный потенциал. Поскольку капсула работает как высокочастотный фильтр, то она не реагирует на стимуляцию постоянным давлением. В самом возбудительном процессе нейрона капсула не участвует. Она только меняет характер раздражения. При многократном раздражении генераторные потенциалы телец Пачини снижаются.
Потенциалы действия нервных волокон, отходящих от телец Пачини. следуют частоте раздражения до 200-400 Гц, в интервале 400- 500 Гц соответствие импульсации частоте стимула нарушается, выше 500 Гц они перестают реагировать. Люди при одинаковом раздражении кожи ладони отмечают два вида ошушений — вибрации и трепетания. Для возникновения ощущения вибрации необходима более высокая частота и меньшая амплитуда, чем для ощущения трепетания, которое появляется при более низких частотах, но большей амплитуде колебаний. Трепетание исчезает при поверхностной анестезии, так же как разряды рецепторов, реагирующих на низкие частоты вибрации. Местная анестезия поверхностных слоев кожи не уничтожает вибрационную чувствительность и ответы высокочастотных рецепторов. Условием появления ощущения вибрации в коже является одновременное вовлечение в реакцию нескольких телец Пачини, поскольку именно в этом случае разряд в афферентных волокнах становится эффективным стимулом.
Механизмы возбуждения кожных рецепторов. Механический стимул приводит к деформации мембраны рецептора. В результате этого электрическое сопротивление мембраны уменьшается, т.е. увеличивается её проницаемость для ионов. Через мембрану рецептора начинает течь ионный ток, приводящий к генерации рецепторного потенциала. При достижении рецепторным потенциалом критического уровня деполяризации генерируются импульсы, распространяющиеся по волокну в ЦНС.
2.2.Кожная терморецепция.
Терморецепция или температурное чувство соотносится с двумя ощущениями —тепла ихолода. Эти ощущения можно вызвать втемпературных точках тела. Специальные рецепторы тепла и холода выполняют две основные функции — они отвечают на изменения температуры окружающей среды и участвуют в регуляции температуры тела.Рецепторы кожи, чувствительные к холоду и теплу (точки тепла и холода), расположены на разных участках тела. Плотность и общее число температурных точек меньше, чем число тактильных точек во всех областях тела человека. Точек холода на коже значительно больше, чем точек тепла., например, на поверхности кисти руки имеется по 1-5 точек холода на каждом квадратном сантиметре и лишь в среднем по 0,4 точки тепла. Максимальная плотность тех и других точек характерна для кожи лица, наиболее чувствительной к изменениям температуры. Число точек холода здесь достигает 16- 19 на см2.
Низкая, по сравнению с плотностью механорецепторов, плотность точек холода и, особенно, тепла свидетельствует, что одновременные пространственные пороги для температурных стимулов относительно велики. Пространственные пороги для холодовых стимулов ниже, чем для тепловых. Так, на бедре одновременный пространственный порог для тепловых стимулов в продольном направлении равняется 26 см, а в поперечном — 9 см. Холодовым стимулам соответствуют значения 16,5 см и 2,9 см.
Специфические терморецепторы (рецепторы холода и тепла) предположительно представляют собой свободные нервные окончания, которые несут также механорецепторные функции.У человека рецепторы холода располагаются в эпидермисе и непосредственно под ним, а рецепторы тепла — преимущественно в верхнем и среднем слоях собственно кожи. Рецепторы холода связаны с тонкими миелинизи-рованными волокнами, а рецепторы тепла — с немиелинизированны-ми волокнами. Специфические терморецепторы характеризуются рядом общих показателей. Так, при постоянной температуре кожи они тонически разряжаются с частотой, зависящей от температуры —статическая реакция. В случае изменения температуры кожи они увеличивают или уменьшают частоту разряда —динамическая реакция. Специфические терморецепторы нечувствительны к нетепловым стимулам, а пороги их импульсной реакции сравнимы с порогами появления ощущений при тепловой стимуляции кожи.
Ощущения, появляющиеся при изменении температуры кожи, определяются: 1)исходной температурой кожи, 2) скоростью изменения температуры кожи, 3) площадью кожи, на которую действует стимул.
Исходная температура влияет на пороги ощущения тепла и холода. При низких температурах, например при 20°С, порог для появления ощущения тепла высокий, а для появления ощущения холода — низкий. Если исходную температуру кожи повысить, то тепловые пороги уменьшатся, а холодовые увеличатся. При этом следует иметь в виду, что в зависимости от условий стимуляции одна и та же температура кожи может вызывать и ощущение тепла, и ощущение холода. Если, например, исходная температура равна 32°С, то нагревание на 0,5°С вызовет ощущение тепла, а при исходной температуре равной 33°С, охлаждение на 0,5°С — отчетливое ощущение холода. Однако, в том и другом случае конечная температура кожи будет одинаковой — 32,5°С.
Скорость изменения температуры, если она превышает 0,1°С с (6°С мин), почти не оказывает влияния на пороги ощущения тепла и холода. При снижении скорости изменения температуры оба порога монотонно возрастают.
Площадь кожи, на которой меняется температура, отражается на порогах ощущений при охлаждении и нагревании, соответственно, больше в случае малых площадей, чем при больших. При подобном надпороговым изменении температуры кожи интенсивность ощущений возрастает с увеличением стимулируемой площади. Следовательно, и в околопороговом, и в надпороговом диапазонах происходит пространственная суммация импульсных реакций терморецепторов в нервных центрах.
2.3 Мышечно-сухожильная проприорецепция.
Проприоцепцией называется совокупность способностей человека ориентироваться в положении своих конечностей по их отношению друг к другу, воспринимать собственные движения и оценивать сопротивление совершаемым движениям. Источником эффективных стимулов во всех этих случаях является само тело, в мышцах, сухожилиях и суставах которого преимущественно расположены соответствующие рецепторы —проприоцепторы.
Функции:Проприоцепция, как модальность, обладает тремя качествами. Это, во-первых, ощущение положения конечностей, базирующееся на информации об углах в каждом суставе. Так, человек может судить об относительном положении конечностей. Поскольку ощущение положения конечностей хорошо сохраняется, например, после долгого сна, оно лишь в незначительной степени подвержено адаптации.
Во-вторых, проприоцепция обеспечиваетощущение движения. В этом случае проприоцепторы воспринимают и направление, и скорость движения при изменениях суставного угла даже без зрительного контроля (например, сгибание и разгибание руки в локте).
Третьим качеством проприоцепции является ощущение усилия. Проприоцепторы способны оценивать величину мышечного усилия, необходимого для совершения определенного движения, а также для сохранения некоторого положения сустава при действии того или иного сопротивления движению.
Проприоцепторы находятся в подкожных структурах — мышцах, сухожилиях исуставных сумках. В мышцах — это мышечные веретена, а в сухожилиях — сухожильные органы Гольджи. Они участвуют в восприятии положения и движения тела и конечностей. В суставных сумках это рецепторы типа окончаний Руффини, сухожильных органов Гольджи и, в меньшем числе, рецепторы типа телец Пачини. Эти рецепторы связаны с миелинизированными нервными волокнами. Кроме того, в суставных сумках имеются свободные нервные окончания с немиелинизированными афферентами.
Механизм работы:Суставные механорецепторы при изменениях положения сустава исоответствующих сжатиях или растягиваниях суставной сумки, передают информацию о положении суставов, направлении и скорости движения конечностей тела. Фазно-тонические свойства суставных рецепторов проявляются не только тогда, когда сустав движется так, что обусловливает возрастание активности рецептора, но и тогда, когда движение осуществляется в обратном направлении. Работу рецепторов положения суставов объясняет
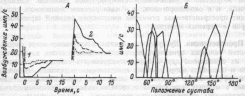 На
А — реакция неполностью адаптирующегося
рецептора
коленного сустава сгибанием (I) и разгибанием (2).
Сплошные линии — быстрое сгибание и разгибание, штриховые
и пунктирные линии — более медленное.
На Б — области ответа или "рецептивные углы" нескольких
суставных рецепторов при их постоянном возбуждении в
результате длительного расположения сустава под разными углами.
Общее представление об относительном положении суставов формируется у человека в результате процесса интеграции информации от рецепторов различных мышц, сухожилий и суставов. Этот процесс начинается, как и в других сенсорных системах, на уровне подкорковых ядер.В центральной интеграции, кроме того, используются и сигналы несенсорного происхождения. Речь идет, в частности, об эфферентных "копиях приказов мышцам", которые центральные отделы моторной системы адресуют в центральную нервную систему для взаимодействия с сенсорными сигналами, поступающими от пропри-оцепторов. Эти эфферентные "копии" содержат информацию о планируемой активности мышц и о том движении, которое последует. Подобные сведения важны для выделения из афферентной информации о движении той афферентации, которая связана с запрограммированной мышечной активностью.
2.4. Висцерорецепция.
Висцерорецепция – это восприятие висцерорецепторами изменений условий внутренней среды и состояния внутренних органов, передача информации в ЦНС и восприятие ее сенсорными нейронами коры больших полушарий.
Рецепторы висцеральной системы воспринимают разнообразные изменения внутренней среды организма, посылают информацию в ЦНС, участвуя таким образом в работе внутренних органов и поддержании гомеостаза в организме (химического состава, осмотического давления, температуры внутренней среды, давления крови в сосудах, давления и наполнения внутренних полых органов).
Периферический отдел висцеральной системы представлен соответствующими рецепторами. Висцероцепторы находятся во внутренних органах, тканях, сосудах (механо-, хемо-, термо- и осморецепторы).
Механорецепторы (баро- и волюморецепторы) расположены в сосудах, легких, ЖКТ и др. Для них адекватным стимулом является растяжение, деформация стенок органов.
Хеморецепторы находятся в аортальных и каротидных клубочках, в слизистых оболочках пищеварительного тракта, органов дыхания, в серозных оболочках, в головном мозгу.
Осморецепторы локализованы в аортальном и каротидном синусах, в интерстициальной ткани вблизи капилляров, внутри сосудов артериального русла, в печени и др. органах, а также в гипоталамусе (нейроны – осмометры). Часть осморецепторов является механорецепторами, часть – хеморецепторами (например, Na+ -рецепторы, гликорецепторы).
Терморецепторы находятся в слизистой оболочке пищеварительного тракта, органов дыхания, мочевого пузыря, в серозных оболочках, в стенках артерий и вен, в каротидном синусе, а также в ядрах гипоталамуса.
Все рецепторы висцеральной системы являются первично-чувствующими (за исключением вторично-чувствующих хеморецепторов каротидного клубочка).
Проводниковый отдел представлен в основном чувствительными волокнами вегетативных и соматических нервов, частично-смешанными нервами, в состав которых входят вегетативные волокна.
Чувствительные нейроны находятся в спинальных ганглиях или ганглиях черепно-мозговых нервов, промежуточные – в спинном мозге или в стволе мозга. Восходящие пути от них поступают к заднемедиальным ядрам таламуса и от него к лимбической системе. Проекции висцеральных нервов обнаружены также в мозжечке.
Корковый отдел локализуется в соматосенсорной области и в орбитальной части коры большого мозга. В коре замыкаются натуральные вегетативные условные рефлексы, являющиеся важным приспособительным ответом организма в различных условиях жизнедеятельности. Например, повышение АД у скаковой лошади на старте обеспечивает заблаговременное усиление кровоснабжения скелетной мускулатуры.Восприятие некоторых интероцептивных стимулов может сопровождаться возникновением четких локализованных ощущений:например, при растяжении стенок желудка, мочевого пузыря или прямой кишки. Но висцеральная импульсация от сердца, печени,почек обычно не вызывает ощущений, что является сигналом благополучного состояния организма.
3.Проводниковый отдел соматовисцеральной сенсорной системы.Проводниковый отдел сенсорной системы. Основные функции проводникового отдела — кодирование информации о стимуле и проведение её в кору больших полушарий. Он включает чувствительные волокна черепных и спинномозговых нервов, внутримозговые проводящие пути, подкорковые центры первичного анализа в стволе. Начинается проведение нервного импульса с образованием ПД. ГП, который является причиной возникновения нервного импульса не может распространятся по нервному волокну. Распространение нервного импульса возможно т.к. ПД в каждой новой точке нервного волокна является раздражителем. При действии раздражителя наступает повышение проницаемости для ионов натрия. Натрий поступает в клетку нервного волокна и возникает электрические ионные токи. Их возникновение связано с разными зарядами по обе стороны мембраны нервного волокна. Установлено, что распространение нервного импульса по мякотному волокну быстрее, чем по безмякотному. Мякотное волокно покрыто миелином, который является электроизолятором.
Корковый (центральный) отдел сенсорной системы расположен в коре больших полушарий, причём у каждого имеется своё представительство. Корковый отдел состоит из ядра или ядерной зоны и периферической зоны (зоны рассеянных элементов). Установлено, что ядерная зона выполняет наиболее сложные задачи анализа и синтеза поступающей информации. В зоне рассеянных элементов осуществляется элементарный анализ и синтез. Ядерная зона расположена более локально, а периферическая представлена в виде разбросанных отдельных элементов по всей доле мозга. Известный нейропсихолог Лурия выделил 3 основных зоны коркового отдела сенсорных систем: 1. Первичная (проекционная) зона обеспечивает мелкий синтез поступающих сигналов, т.е. она определяет узкоспецифичные характеристики (стимулы). 2. Вторичная (проекционно-ассоциативная), она как бы надстраивается над первичной и осуществляет более сложные формы анализа и синтеза. Она отвечает за узнавание. 3. Ассоциативная, она надстраивается над вторичной, самая молодая и выполняет наиболее сложные функции. На основании информации, поступающей из первичных и вторичных зон, третичная зона вырабатывает цели и задачи поведения.