Материал: Кратко обо всем
-
Простая и облегченная диффузия.
Диффузия—это самопроизвольный процесс проникновения вещества из области большей в область меньшей его концентрации в результате теплового хаотического движения молекул.
Различают несколько типов пассивного переноса веществ (диффузии):
-
простая диффузия.
-
перенос через поры.
-
транспорт с помощью переносчиков (подвижных и эстафетной передачи).
Простая диффузия выражается соотношением (уравнение Фика):
J = (dm/dt) / S = -D (dС/dx) , где j плотность потока вещества, (dС/dx) градиент концентрации, D коэффициент диффузии. Это уравнение даёт возможность рассчитать количество вещества (m) попавшее в клетку за определённое время (t) и через известную площадь (S): m = j t S.
Последние два вида диффузии относят к облегченной, т.к. количество вещества переносимое при таком виде транспорта существенно больше.
Если молекулы диффундирующего вещества движутся без образования комплекса с другими молекулами, то такая диффузия называется простой.
Облегченная диффузия состоит в том, что вещество слабо диффундирующее через мембрану, транспортируется через нее с помощью подвижных или фиксированных в мембране переносчиков. Разновидностью облегченной диффузии является обменная диффузия, которая состоит в том, что вспомогательное вещество образует соединение с диффундирующим веществом и перемещается к другой поверхности мембраны. На другой поверхности мембраны молекула проникающего вещества освобождается и на ее место присоединяется другая молекула такого же вещества. Например, установлено, что натрий эритроцитов благодаря обменной диффузии быстро обменивается на натрий плазмы.
-
Электродиффузия. Уравнение Нернста – Планка.
Поскольку в диффузии участвуют не только нейтральные вещества, но и ионы разной полярности, Нернст и Планк предложили формулу:
Ф = uRT (dc/dx) cuz F (d/dx)
где: u = D/RT (называется подвижностью молекул)
R универсальная газовая постоянная;
T абсолютная температура;
с концентрация вещества;
z валентность;
F число Фарадея;
(dc/dx), (d/dx) градиент концентрации и градиент потенциала (то же, что электрическая напряжённость).
Это уравнение выведено из уравнения Теорелла: Ф = cu (d/dx), где электрохимический потенциал.
-
Активный транспорт веществ через мембрану. Понятие о натрий – калиевом насосе.
Активный транспорт (в отличие от пассивного осуществляется против градиента концентрации проходящих веществ, т.е. в сторону больших их концентраций). Следующая особенность транспортируются вещества только за счёт расхода свободной энергии. В клетках ионный баланс (Na+, K+) обеспечивается белковыми структурами, которые носят название “калий-натриевый насос”.
Транспорт Na+ и K+ осуществляется за счёт гидролиза АТФ, превращения её в АДФ + свободный фосфат, с обязательным участием ферментов Na+, K+ -АТФ-аз. Перенос является сопряжённым, т.е. осуществляется синхронно: на переход 3 из клетки во вне необходимо наличие 2 во внеклеточной жидкости для её транспорта в клетку. Активный транспорт веществ через биологические мембраны имеет огромное значение. За счет активного транспорта в организме создаются градиенты концентраций, электрических потенциалов, давления и т.д. С точки зрения термодинамики активный транспорт удерживает организм в неравновесном состоянии, поддерживает жизнь.
Биопотенциалы.
Измерение биопотенциалов является объективным, универсальным точным показателем течения физиологических функций различных органов.
БИОФИЗИЧЕСКИЕ ПРЕДПОСЫЛКИ ВОЗНИКНОВЕНИЯ БИОПОТЕНЦИАЛОВ.
Все процессы жизнедеятельности органов сопровождаются появлением в клетках и тканях электродвижущих сил. Электрические явления играют большую роль в важнейших физиологических процессах: возбуждении клеток и проведении возбуждения по клеткам.
Благодаря непосредственной связи биопотенциалов ( БП ) с метаболическими процессами и физиологическим состоянием клеток они являются чувствительным и точно измеримым показателем различных изменений в клетках в норме и при патологии. Для более эффективного использования измерения БП в медицине необходимо выяснение механизмов их возникновения.
Диффузионные, мембранные и фазовые потенциалы.
Для возникновения БП решающее значение имеют потенциалы, обусловленные несимметричным, неравномерным распределением ионов. К таким потенциалам могут быть отнесены: диффузионные, мембранные и фазовые.
Диффузионные потенциалы возникают на границе раздела двух жидких сред в результате различной подвижности ионов. Диффузионная разность потенциалов может быть найдена из уравнения Гендерсона: Е = [ (U - V) RT ln ( a1/a2 ) ] / ( U + V ) ZF,
где U - подвижность катиона V - подвижность аниона R - газовая постоянная T - абсолютная температура Z - валентность ионов F - число Фарадея a1 - активность ионов в области, откуда идет диффузия a2 - активность ионов в области, куда идет дифффузия.
Под активностью ионов понимают их активную концентрацию. Активность ионов всегда меньше их абсолютной концентрации, что обусловлено взаимодействием ионов друг с другом, а также их взаимодействием с электрически заряженными группами других молекул. Активность выражается произведением коэффициента активности f, определяемым эмпирически, на абсолютную концентрацию С ионов: a = f C
Частным случаем диффузионного потенциала является мембранный потенциал. Он возникает при наличии пористой перегородки ( в клетке - мембрана ), которая избирательно пропускает катионы и анионы, например, пропускающей только катионы. Это приводит к возникновению разности потенциалов, которую можно найти из формулы:
E = (RT / ZF ) ln (a1/ a2 ) - она называется уравнением Нернста. Если перейти от натуральных логарифмов к десятичным и подставить значения постоянных, то при 20 С получим: E = 58 lg ( a1 / a2 ) ] / Z [mB] - это уравнение обычно используют при практическом расчете мембранных потенциалов.
В соответствии с современными представлениями потенциалы покоя, повреждения и действия являются по своей природе мембранными потенциалами.
Фазовые потенциалы возникают на границе раздела двух несмешивающихся фаз ( например, раствор электролита в воде и какое-либо масло ) в результате различной растворимости катионов и анионов в неводной фазе. Величину фазовых потенциалов можно определить из уравнения Гендерсона.
-
Потенциал покоя. Природа потенциала покоя.
Между внутренней и наружной поверхностями клеточной мембраны всегда существует разность электрических потенциалов. Разность потенциалов, измеренная между внутренней и наружной поверхностями клеточной мембраны в состоянии физиологического покоя клетки, называется потенциалом покоя. Потенциал покоя клетки можно измерить с помощью стеклянного микроэлектрода, введенного непосредственно в цитоплазму второй электрод при этом находится во внеклеточной жидкости. Кончик микроэлектрода, имеющего внутри канал, заполненный концентрированным раствором КС1, может иметь диаметр всего в долю микрона. При введении микроэлектрода мембрана клетки охватывает его кончик и ее повреждения практически не происходит
На основании большого экспериментального материала было установлено, что цитоплазма в состоянии покоя клеток всегда имеет отрицательный потенциал по отношению к потенциалу межклеточной жидкости. Потенциал покоя у разных клеток имеет величину от 50 до 100 мВ. Согласно современным взглядам, потенциал покоя по своей природе является мембранным потенциалом. Наличие мембраны приводит к возникновению потенциалов клеток, как в покое, так и при возбуждении. Причина их возникновения - неравномерное распределение ионов калия и натрия между содержимым клеток и межклеточной средой. Концентрация ионов калия внутри клеток в 20—40 раз превышает их содержание в окружающей клетку жидкости. Напротив, концентрация натрия в межклеточной жидкости в 10—20 раз выше, чем внутри клеток. Такое неравномерное распределение ионов обусловлено активным переносом ионов—работой натрий-калиевого насоса.
Как было установлено, возникновение потенциала покоя обусловлено в основном наличием концентрационного градиента ионов калия. Эта точка зрения базируется на том, что ионы калия внутри клетки находятся в свободном состоянии, т. е. не связаны с другими ионами и молекулами и могут свободно диффундировать.
Согласно теории Ходжкина, Хаксли, Катца, клеточная мeмбpaнa в cocтoянии покоя проницаема в основном только для ионов калия. Ионы калия диффундируют по концентрационному градиенту через клеточную мембрану в окружающую жидкость; анионы не могут проникать через мембрану и остаются на ее внутренней стороне. Так как ионы калия имеют положительный заряд, а анионы, остающиеся на внутренней поверхности мембраны,—отрицательный, то внешняя, поверхность мембраны при этом заряжается положительно, а внутренняя отрицательно. Понятно, что диффузия продолжается только до того момента, пока не установится равновесие между силами возникающего электрического поля и силами диффузии.
Если принять, что потенциал покоя определяется диффузией только ионов калия из цитоплазмы наружу, то его величина Е может быть найдена из уравнения Нернста:
Е = (RT/ z F)ln[K.]i / [К.]е (1)
где [K.]i и [К.]е—активность ионов калия внутри и снаружи клетки, z валентность.
-
Уравнение Гольдмана – Ходжкина – Хаксли.
Мембрана в состоянии покоя проницаема не только для ионов калия, но и в небольшой степени для ионов натрия и хлора. Мембранный потенциал клеток представляет собой результирующую электродвижущих сил, генерируемых всеми этими тремя каналами диффузии. Проникновение натрия из окружающей жидкости внутрь клетки по концентрационному градиенту приводит к некоторому уменьшению мембранного потенциала. Диффузия через мембрану ионов хлора, содержание которых в межклеточной жидкости большинства тканей выше, чем в клетках, вызывает некоторое увеличение мембранного потенциала. Следовательно, для более точного вычисления потенциала покоя необходимо учитывать не только диффузию ионов калия, но и диффузию натрия и хлора. Уравнение Нернста позволяет описывать мембранный потенциал только в первом приближении; для более точного определения потенциала применяют обобщенное уравнение Гольдмана-Ходжкина-Хаксли:
Е = (RT/ z F)ln[(Рк [K.]i + PNa [Na]i + PCl [Cl]e) / (Рк [K.]e + PNa [Na]e + PCl [Cl]i)
где Pk, PNa, PCl — коэффициенты проницаемости мембраны для ионов калия, натрия и хлора; [К], [Na], [Cl] — их активности внутри (i) и вне (е) клетки. Уравнение Гольдмана-Ходжкина-Хаксли позволяет определять мембранный потенциал не только в состоянии покоя, но и при возбуждении клетки. Для этого необходимо знание коэффициентов проницаемости для ионов. По данным Ходжкина и Катца (1949), для аксона кальмара в состоянии покоя отношение коэффициентов проницаемости Рк: Рnа : РCl= 1 : 0,04 : 0,45.
-
Потенциал действия. Генерация потенциала действия.
Все
клетки возбудимых тканей при действии
различных раздражителей достаточной
силы способны переходить в состояние
возбуждения. К возбудимым относятся
нервная, мышечная и железистая ткани,
хотя четкой границы между возбудимыми
и другими тканями провести нельзя.
Возбудимость—это
способность клеток к быстрому ответу
на раздражение, проявляющемуся через
совокупность физических, физико-химических
процессов и функциональных изменений.
Обязательным
признаком
возбуждения
является
изменение электрического состояния
клеточной мембраны.
Опыт показывает, что возбужденный
участок клетки становится электроотрицательным
по отношению к невозбужденному,
что указывает на перераспределение
ионов в возбужденном участке. При
возбуждении оно имеет временный характер,
и после окончания возбуждения вновь
восстанавливается исходный потенциал
покоя. Потенциалом
действия
называется
общее
изменение разности потенциалов между
клеткой и средой, происходящее при
пороговом и сверхпороговом возбуждении
клеток.
Потенциалы
действия
обеспечивают_проведение _возбуждения
по нервным волокнам и инициируют процессы
с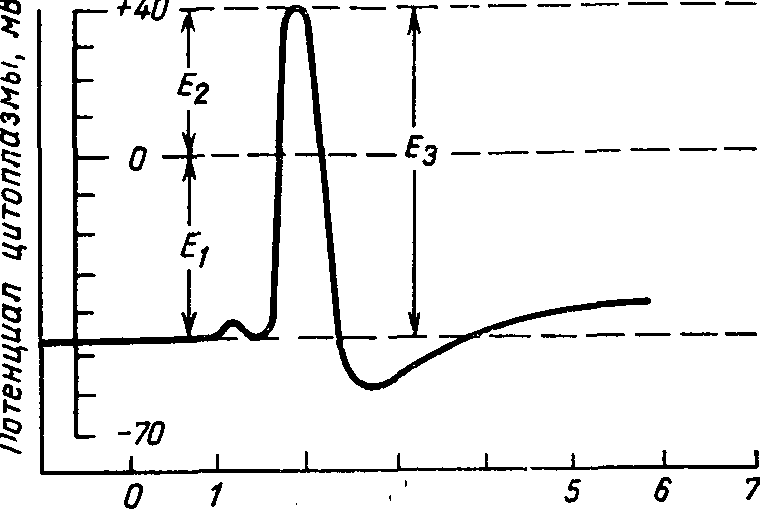 окращения
мышечных и секреции железистых клеток.
Время, мс
Рис. 1. Потенциал действия нервного волокна кальмара, зарегистрированный с помощью внутриклеточного электрода (по А. Ходжкину и А. Хаксли, 1965).
Е1 — потенциал покоя, E2 — мембранный потенциал при возбуждении, E3 - потенциал действия.
На рис. 1, где показано изменение мембранного потенциала при возбуждении, видно, что в состоянии покоя внутренняя сторона клеточной оболочки имеет отрицательный потенциал, примерно равный —45 мВ, тогда как при возбуждении мембранный потенциал становится равным +40 мВ. Таким образом, полное значение потенциала действия составляет 85 мВ, что значительно превышает величину потенциала покоя.
Возникновение потенциала действия связано с увеличением проницаемости мембраны для ионов натрия и последующим усилением диффузии этих ионов по концентрационному градиенту внутрь клетки, что приводит к изменению (уменьшению) мембранного потенциала. Независимо от того, чем это вызвано - уменьшение мембранного потенциала ниже критического уровня приводит к увеличению проницаемости мембраны для натрия, а увеличение проницаемости сопровождается усилением диффузии натрия в цитоплазму, что вызывает еще большую деполяризацию мембраны. Благодаря наличию положительной обратной связи деполяризация мембраны при возбуждении происходит с ускорением и поток ионов натрия в клетку все время возрастает.
-
Распространение потенциала действия. Понятие о локальных токах. Кабельная теория распространения потенциала действия.
Потенциал действия (ПД), возникнув в одном участке нервной клетки быстро распространяется по всей поверхности. Распространение ПД обусловлено возникновением локальных токов, циркулирующих между возбужденным и невозбужденным участками клетки. Локальными называются токи, возникающие между невозбужденным и возбужденным участками нервного волокна, вследствие возникновения разности потенциалов между ними. На поверхности клетки локальный ток течет от невозбужденного участка к возбужденному внутри клетки он течет в обратном направлении. Нервное волокно можно рассматривать как кабель, который характеризуется электрической емкостью, сопротивлением мембраны, сопротивлением аксоплазмы и окружающей среды. Распространение потенциала по нервному волокну описывается так называемым телеграфным уравнением, которое имеет вид: Е = Е0e –x/ где: - константа длины нервного волокна. Так как, при х = , Е = Е0 / e, то - это расстояние, на котором потенциал Е уменьшается в e раз по сравнению с Е0. Скорость проведения в миелинизированных волокнах
-
Особенности распространения потенциала действия в мякотных и безмякотных волокнах.
Распространение потенциала действия имеет особенности, зависящие от типа нервных волокон. По безмякотному волокну, которое не имеет миэлиновой оболочки, распространение возбуждения будет затухающим и осуществляется за счет локальных токов. Распространение потенциала действия по мякотным (покрытым миэлиновой оболочкой) осуществляется скачкообразно (сальтаторно) от одного перехвата Ранвье к другому.
Диапазон возможных значений скорости проведения в миелинизированных волокнах широк: от нескольких метров в секунду до 100 м/с. Мировой рекорд принадлежит миелинизированным аксонам креветки, которые проводят возбуждение быстрее 200 м/с. В нервной системе позвоночных нервы разделяются на группы по скорости проведения или по функции. В соответствии с теоретическими расчетами, скорость проведения в волокне должна быть пропорциональна его диаметру. Бойд и коллеги показали, что у млекопитающих скорость проведения (в м/с) для толстых миелинизированных волокон приблизительно равняется их внешнему диаметру (в м), помноженному на 6. Для более тонких волокон коэффициент пропорциональности приблизительно равен 4,5
-
Биофизические принципы исследования электрических полей в организме. Понятие о токовом диполе.
При функционировании тканей и органов, как и отдельных клеток, сопровождающемся электрической активностью, в организме создается электрическое поле. Так как организм является проводником, то два электрода, приложенные к разным участкам тела, регистрируют разность потенциалов. Зависимость от времени разности потенциалов, возникающей при функционировании данного органа или ткани, называется электрограммой. Названия электрограмм указывают на органы (ткани), функционирование которых приводит к появлению, регистрируемой разности потенциалов: электрокардиограмма (ЭКГ), электроэнцефалограмма (ЭЭГ), электромиограмма (ЭМГ) и т.д. Можно сформулировать две основные задачи изучения электрограмм: первая (прямая) заключается в выяснении механизма возникновения электрограмм, вторая (обратная, или диагностическая) - в выявлении состояния организма по характеру его электрограмм. При изучении механизма возникновения электрограмм ткани и органы как источники электрического поля представляют в виде эквивалентного электрического генератора. Под ним подразумевается модельная физическая система, которая должна удовлетворять двум условиям: 1) потенциалы, создаваемые генератором в различных точках должны соответствовать реальным величинам 2) при изменении параметров эквивалентного генератора должны происходить такие же изменения электрического поля как и в реальных электрограммах при соответствующем изменении в функционировании органа.
Почти во всех существующих моделях электрическую активность органов и тканей сводят к действию определенной совокупности токовых электрических генераторов, находящихся в объемной электропроводящей среде. Токовый генератор имеет высокое внутреннее сопротивление R, во много раз превосходящее сопротивление внешней нагрузки R0. По закону Ома для полной электрической цепи сила тока I = E / (R + R0), учитывая, что R во много раз больше R0, можно приближенно считать, что I = E / R .