Материал: ОВО – И СПЕРМАТОГЕНЕЗ, МЕЙОЗ
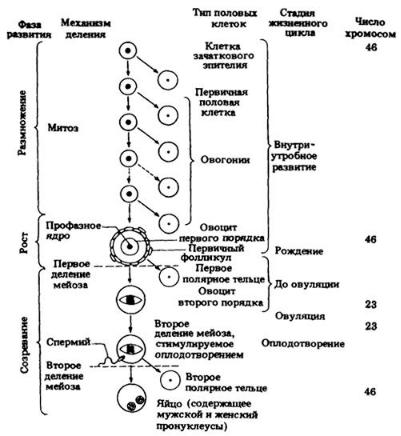
гормона гипофиза, оболочка яичника разрушается, вторичный овоцит попадает в брюшную полость и поступает на маточную трубу. В случае оплодотворения сперматозоидом, завершается второе деление мейоза и образуется яйцеклетка (в
последующем – концепт) и второе полярное тельце. Если оплодотворение не происходит,
то овоцит дегенирирует.
Рис. 4. Овогенез
Работа 3. Составить схемы ово – и сперматогенеза. Схемы составить в сравнении, указать периоды размножения, роста, созревания, формирования, их особенности, названия клеток на всех стадиях гаметогенеза, набор в этих клетках хромосом и содержание ДНК.
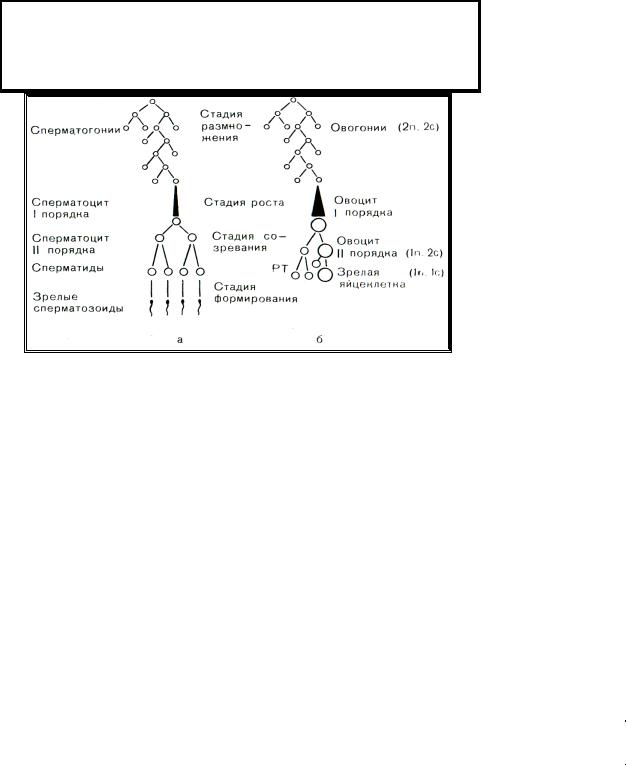
Схема гаметогенеза:
а – сперматогенез, б – овогенез, n – количество хромосомных наборов, с – количество ДНК, РТ – дукционные тельца
Рис. 5 Схема гаметогенеза.
Работа 4. Заполните таблицу отличий митоза и мейоза.
|
|
|
МЕЙОЗ |
|
ФАЗЫ |
|
|
|
|
МИТОЗ |
Редукционное |
|
Эквационное |
|
|
|
|||
|
деление |
|
деление |
|
|
|
|
||
|
|
|
|
|
Профаза |
|
|
|
|
Метафаза |
|
|
|
|
Анафаза |
|
|
|
|
Телофаза |
|
|
|
|
|
|
|
|
|
Набор хромосом |
|
|
|
|
|
|
|
|
|
Содержание ДНК |
|
|
|
|
|
|
|
|
|
Мейоз (греч. meiosis – уменьшение)
Это особый тип деления, характерный только для дифференцирующихся половых клеток. В результате его исходная половая клетка, имеющая диплоидный набор хромосом (2n), дает четыре гаплоидных клетки, т.е. происходит процесс созревания половых клеток. В жизненном цикле эукариот мейоз является обязательным звеном процесса размножения. Мейозу предшествует интерфаза. Она полностью идентична митотической. Редупликация хромосом происходит однажды, в течение S-периода.
Образовавшиеся клетки принято называть гаметоцитами первого порядка (сперматоциты I в сперматогенезе, ооциты I – в овогенезе). Они содержат диплоидный набор хромосом (2n) и удвоенное количество ДНК (4с).
Сам мейоз – это два последовательных деления, которые следуют один за другим и приводят к образованию гаплоидных гамет. Первое деление – редукционное (уменьшительное). В него вступают гаметоциты I (2n, 4c). Образуются гаметоциты второго порядка (сперматоциты II или ооциты II (n, 2c).
Второе деление – эквационное (уравнительное). В него вступают гаметоциты II, выходят сперматиды или овотиды, имеющие гаплойдный набор хромосом (n) и одинарное количество ДНК (с).
В каждом из мейотических делений выделяют четыре стадии: профаза I, II; метафаза I, II; анафаза I, II; телофаза I, II.
Основные события, которые отличают мейоз от митоза, происходят в процессе редукционного деления.
Редукционное деление: вступают в него гаметоциты первого порядка.
Профаза I. Это самая продолжительная стадия мейоза. Ее длительность может составлять от нескольких часов до нескольких суток и даже лет. Так, у мужчин она продолжатся около 24 дней, а у девочек начинается с трех месяцев внутриутробного развития, а заканчивается около 50 лет.
Эта фаза характеризуется высокой активностью синтетических процессов: хромосомы в 30 раз менее компактны, чем в следующей стадии (метафаза 1), поэтому хромосомы способны к синтезу РНК, частично редуплицируется ДНК. Происходит ряд структурных перестроек. Сложность и продолжительность профазы I определила ее деление на 5 стадий – лептотену, зиготену, пахитену, диплотену и диакинез (рис. 6).
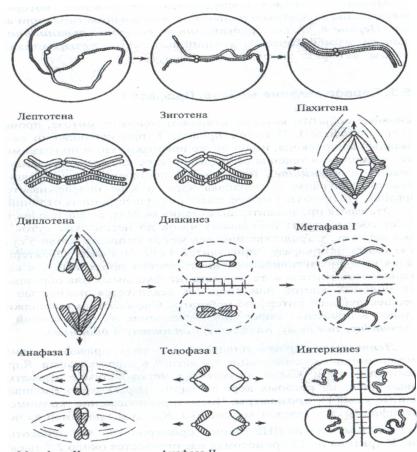
Рис. 6. Общая схема мейоза
Лептотена (leptos – тонкий, thena – нить, пряжа) – стадия тонких нитей.
В ядре начинается конденсация хроматина. Ядра увеличиваются в объеме. В них появляются четко видимые нити хроматина. На них нерегулярно расположены узелки – хромомеры. Число и расположение хромомер специфично для каждой пары хромосом. Количество хроматиновых нитей равно диплоидному набору хромосом. Прослеживается связь хроматиновых нитей с ядрышком и ламиной ядра. В конце лептотены компактизация хромосом приостанавливается.
Зиготена (греч. zigote – соединенный в пару) – стадия сближения хромосом и образование двойных нитей (возникновение бивалентов).
Компактизация хромосом начинается вновь. Одновременно происходит сближение гомологичных хромосом. Оно начинается с теломерных концов хромосом на ламине ядерной оболочки. Точками первичного контакта сближающихся гомологичных хромосом являются небольшие отдельные последовательности нуклеотидов, распределенные по всей длине хромосом. Они уникальны, не дублируются, не повторяются. Эти последовательности ДНК принято называть зиготеной ДНК (Z-ДНК). Самоудвоение этих участков ДНК происходит только после того, как между гомологичными хромосомами образуется стабильная связь, т.е. в пахитене. Образование стабильной связи между гомологичными хромосомами идет с помощью особой структуры – синаптонемного комплекса. Синаптонемный комплекс начинает образовываться еще в поздней лептотене, полностью формируется на стадии зиготены и сохраняется в течение следующей стадии – пахитены.
Полностью сформированный синаптонемный комплекс имеет вид трехслойной ленты: боковые белковые элементы соединены центральным тяжем из поперечных белковых молекул. Хроматиновые петли располагаются снаружи от белковых элементов.
По мере образования синаптонемного комплекса освобождается зиготенная ДНК. Редупликация ее идет в следующей стадии.
В результате компактизации и сближения гомологичные хромосомы в зиготене образуют единый комплекс – бивалент. Число бивалентов равно гаплоидному числу хромосом (n). В каждый бивалент входят четыре хроматиды, но в зиготене они отчетливо не проявляются. Важно, что в процессе образования бивалентов возможно «переплетение» как сестринских, так и несестринских хроматид между собой.
Пахитена (pachys – толстый) – стадия образования тетрад (стадия толстых нитей).
Продолжительность пахитены – до 50% времени от всей профазы I. У человека она продолжается до 15 суток.
Вэтой стадии завершается компактизация хромосом. Биваленты укорачиваются и утолщаются вдвое. Четко проявляется их разделение на хроматиды, т.е. образуются тетрады. При этом происходит обмен участками между гомологичными хромосомами (кроссинговер) и, как следствие, рекомбинация генов. Особое значение при этом имеет кроссинговер между несестринскими хроматидами.
Впахитене идут активные процессы синтеза веществ и ферментов. Синтезируются повторяющиеся последовательности нуклеотидов ДНК для восстановления утраченных при кроссинговере участков ДНК. Центрами их синтеза являются репликативные или «рекомбинационные узелки» – белковые ансамбли синаптонемного комплекса между гомологичными хромосомами. В следующих стадиях профазы 1 видно, что рекомбинационные узелки совпадают с местами хиазм.
Идет активный синтез ферментов, необходимых для восстановления целостности ДНК (рестриктазы, лигазы, ДНК-полимеразы). Усиливается работа рибосомальных генов, что приводит к образованию в ядре дополнительных ядрышек. Это приводит к увеличению количества рибосом и, как следствие, к началу активного синтеза белков, необходимых для развития будущего зародыша.
Активность ДНК внешне проявляется в изменении структуры тетрад: они начинают приобретать вид «ламповых щеток».
Эти изменения, связанные с увеличением транскрипционной активности, наиболее отчетливо проявляются в следующей стадии.
Диплотена (diplos – двойной) – стадия двойных нитей.
На начальных стадиях диплотены продолжается транскрипционная активность хромосом. Они все больше приобретают вид «ламповых щеток»: каждая хромосома окружается множеством петель. Каждая петля – это декомпактизированный, активный функционирующий хроматин. Идет накопление и-РНК для обеспечения белками ранних стадий развития зародыша. Следствие активности ДНК – разрушение синаптонемного комплекса между гомологичными хромосомами. Между ними в районе первичной перетяжки начинают действовать силы отталкивания. Между гомологичными хромосомами в области центромеры появляется щель, которая быстро увеличивается. Одновременно отталкиваются друг от друга и сестринские хроматиды, но в отличие от несестринских, они остаются связанными друг с другом центромерой (не произошло удвоения ДНК в ее районе). При расхождении хроматид становятся видимыми зоны их контакта – крестообразные фигуры – хиазмы. Наличие хиазм – показатель завершившегося кроссинговера, т.е. обмена участками ДНК. Каждая