Курсовая работа (т): Получение шикимовой кислоты
Было установлено, сто глифосат блокирует действие шикиматкиназы. Поэтому обработка данным гербицидом растений увеличивает выход шикимовой кислоты[13].
Но несмотря на то что методы выделения шикимовой кислоты постоянно совершенствуются, а также расширяется круг используемых растений, этот метод имеет ряд недостатков: является трудоёмким, поступление растительного сырья для выделения ограничивается сезоном года, когда содержание шикимовой кислоты максимально, и данного сырья недостаточно для удовлетворения существующих потребностей в шикимовой кислоте.
Поэтому наиболее перспективными методами в синтезе данного соединения является микробиологический синтез. На сегодняшний день одна треть от всего количества шикимовой кислоты получается путеё синтеза с использование сверхпродуцентов E. Coli.
Для создания микроорганизмов-сверхпродуцентов шикимовой кислоты применяется различные подходы. Например Джоном Фростом с коллегами был сконструирован штамм E.coli SP1.1/pKD12.112, дефектный по гену шикиматдегидрогиназы, продуктивность которого составила более 50 г. шикимата на литр культуральной жидкости. Но данные бактерии также секретировали в среду большое количество дегидрошикимата и хинной кислоты, поэтому для получения чистой шикимовой кислоты необходимо было производить трудоёмкую процедуру очистки[18].
Луиза Ёхансен с коллегами создали сверхпродуцент E.coli W3110.shik1 за счёт модификации гена aroL, который детерминирует образование фермента шикиматкиназы[19].
Сверхпродуценты шикимовой кислоты были созданы на основе Bacillus subtilis. За счёт увеличения числа копий генов, кодирующих шикиматдегидрогеназу и ингибирование генов, отвечающих за синтез шикиматкиназы. Были получены штаммы с выходом шикимата 14 г./л[21].
1.5 Применение шикимовой кислоты
Шикимовая кислота используется в синтезе противовирусного препарата осельтамивира, который является эффективным средством против вируса гриппа H5N1 особенно на начальных этапах лечения. Также препарат применяется для лечения гриппа А и В.
Осельтамивир - пролекарство, при пероральном приеме подвергается гидролизу и превращается в активную форму - осельтамивира карбоксилат. Механизм действия осельтамивира карбоксилата связан с ингибированием нейраминидазы вирусов гриппа типа А и В. Нейраминидаза - поверхностный гликопротеин вируса гриппа, является одним из ключевых ферментов, участвующих в репликации вирусов гриппа А и В.
При ингибировании нейраминидазы нарушается способность вирусных частиц проникать внутрь клетки, а также выход вирионов из инфицированной клетки, что приводит к ограничению распространения инфекции в организме. При ингибировании нейраминидазы нарушается способность вирусных частиц проникать внутрь клетки, а также выход вирионов из инфицированной клетки, что приводит к ограничению распространения инфекции в организме. Уменьшает выраженность симптомов и сокращает продолжительность заболевания, ускоряет элиминацию вируса из организма, снижает частоту развития осложнений гриппа, требующих проведения антибиотикотерапии. Осельтамивир входит в состав препарата тамифлю[10], [11].
Производные шикимовой кислоты обладают многими фармакологическими эффектами: антикоагулирующими, противовоспалительными, антиоксидантными[4].
Шикимовая кислота широко применяется в качестве реагента в органическом синтезе как в органической химии, так и в фармакологии. Описан способ получения фенола из шикимовой кислоты. Китайскими учёными был синтезирован зейленон, препарат который широко используется при химиотерапии раковых заболеваний. А также известно о синтезе монопальмитилоксишикимовой кислоты, обладающей анетикоагуляционной активностью при внутримышечном введении. Группой китайских учёных синтезировано производное шикимовой кислоты - триацилшикимовая кислота, также обладающая интикоагуляционным и антитромбическом действием[2].
Производные шикимовой кислоты могут использоваться в качестве гербицидов и антибактериальных средств, так как они могут блокировать шикиматный путь у растений и бактерий не нанося вреда для животных и человека, так как у них отсутствует данный метаболитический путь.
Данная кислота может быть использована в качестве исходного соединения для синтеза ряда ароматических и хиральных соединений. При кислотной дегидротации шикимовой кислоты образуется п-гидросибензойная кислота. Эта кислота является предшественником парабенов. 20
Таким образом, шикимовая кислота является важным реагентом в
синтезе различных соединений в органической химии, фармокологии и сельском
хозяйстве.
2. Материалы и методы
.1 Бактериальные штаммы и плазмиды
В работе использовали бактериальный штамм E.coli DH5б
и плазмиду pMTL21C, матрицы для полимеразной цепной реакции В. Subtilis ВНИИгенетика-15 С10 и В. Subtilis ВНИИгенетика-15 D4, характеристика которых представлена в таблице 2.1.
Таблица 2.1 - Характеристика бактериального штамма и
плазмиды, использованных в работе
Название
Характеристика
Источник
E.coli DH5б
F - endA1
glnV44 thi-1 recA1 relA1 gyrA96 deoR nupG Ц80dlacZДM15 Д (lacZYA-argF) U169,
hsdR17 (rK - mK+), л-
23
pMTL21C
AmpR,
CmR, ColE-репликон, tac-промотор, полилинкер (3,648kb)
22
В. Subtilis ВНИИгенетика-15 С10
Получен путём
ступенчатого мутагенеза штамма В. Subtilis
ВНИИгенетика-15 и последующего отбора мутантов, резистентных к структурным
аналогам триптофана
Коллекция
гафедры
В. Subtilis ВНИИгенетика-15 D4
Получен путём
ступенчатого мутагенеза штамма В. Subtilis
ВНИИгенетика-15 и последующего отбора мутантов, резистентных к структурным
аналогам триптофана
Коллекция
гафедры
Бактерии рода Escherichia грамотрицательные,
палочковидные бактерии. Эти бактерии являются факультативными анаэробами. Штамм
DH5б один из наиболее часто
используемых штаммов для технологии рекомбинантной ДНК. Штамм DH5б был разработан Ханаханом
в лаборатории для экспериментов по клонированию. Этот штамм был разработан с
содержанием нескольких мутаций, которые позволяют отбирать высокоэффективных
трансформантов. Эти мутации обладают различными характеристиками.
Мутация recA1снижает уровень гомологичной
рекомбинации, что обеспечивает большую стабильность вставки. И является
желательным, так как любой вектор, имеющий вставку может дестабилизироваться
общей рекомбинации в клетке реципиента.
Мутация deoR позволяет бактериям расти
на минимальной среде, которая содержит один источник углерода (инозин), а также
обеспечивает эффективную вставку больших фрагментов ДНК, что может быть полезно
при построении генных библиотек для больших фрагментов.
Мутация gyrA96 необходима для штаммов, используемых для
клонирования, так как продукт гена GyrА, ДНК-гиразы могут привести к делеции
между прямыми повторами, эти повторы могут произойти и в клонированной вставке
в плазмиде.
Мутация lacZДM15 деактивирует активность LacZ в
бактериях, которые продуцируют неактивную форму в - галактозидазы. Штаммы с
этой мутации не усваивают X-gal и остаются бесцветными на среде содержащей этот реагент. Но если
плазмида имеет LacZ альфа-субъединицу (например, PUC - плазмиды) и эту плазмиду
трансформируют в клетку, она дополняет ген LacZ и в - галактозидаза образуется.
Поскольку альфа - субъединицы находятся рядом с сайтом множественного
клонирования (MCS) векторов pUC, вставка в MCS будет нарушать альфа-субъединицу
и колонии, которые будут содержать данную вставку будут белые, а колонии без
вставки синие.
Этот штамм кишечной палочки был использован в недавних
исследованиях, для хранения цифровых данных[5], [8].
Бактериальную культуру выращивали в на плотной питательной
среде (полноценный агар). Агаризованная среда содержала 1,5% агара, источником
углерода была глюкоза в конечной концентрации 0,2%. Аминокислоты, основания и
витамины добавляли в концентрации 20, 10 и 1 мкг/мл соответственно.
Питательный бульон
Питательный
бульон для культивирования микроорганизмов (панкреатический гидролизат рыбной
муки)
20 г.
Дистиллированная
вода
1 л
Доводили pH 90 7,0-7,2 Стерилизовали путём
автоклавирования при 0,5 атм 45 минут
Агаризованная полноценная среда (на основе рыбного
гидролизата)
Питательный
бульон для культивирования микроорганизмов
15 г.
Смесь
аминокислот
5 г
Агар-агар
15 г.
Дистиллированная
вода
1 л
pH до 7,0-7,2 Стерилизовали путём
автоклавирования при 0,5 атм 45 мин
ТЕ-буфер (pH 7.4) 50 мл
Состав раствора
Стоковый
раствор
Количество
10 мМ Tris pH 8.0
1М
0,5 мл
EDTA1
мМ pH 8.0
0,5М
0,1 мл
Дистиллированная
вода
до 50 мл
Отмывающий раствор
Состав раствора
Стоковый
раствор
Количество
Tris
25мМ pH 8.0
1М
12,5 мл 0,5М
10,0 мл
NaCl
150мМ
5М
15,0 мл
Дистиллированная
вода
До 500 мл
Раствор 1 для выделения плазмидной ДНК. (200 мл)
Состав раствора
Стоковый
раствор
Количество
Глюкоза 50 мМ
2 М
5 мл
EDTA
10мМ pH 8,0
0,5 М
4 мл
Tris
25 мМ pH 8,0
1,0 М
5 мл
Лизоцим E. coli 3 мг/мл
0,6 г
(добавлять перед использованием)
Дистиллированная
вода
до 200 мл (186
мл)
Раствор 2 для выделения плазмидной ДНК. (30 мл)
Состав раствора
Стоковый
раствор
Количество
NaOH
0.2 н
2н NaOH
3 мл
SDS
1%
SDS
10%
3 мл
Дистиллированная
вода
До 30 мл (24
мл)
Раствор 3 для выделения плазмидной ДНК. (100 мл) pH 4,8
Состав раствора
Количество
Ацетат калия
(натрия) 5М
60 мл
Ледяная
уксусная кислота
11,5 мл
Дистиллированная
вода
28,5 мл
X-gal 20 мг/мл
Состав раствора
Количество
Х-gal
65.2 мг
раствор DMFA
До 3,26 мл
IpTg100 мМ (23,83 мг/мл)
Состав раствора
Количество
IpTg
238.4
мг
Деионизированная
вода
до 10.4 мл
Приготовление 0,7% агарозы
Агароза
0,7г
TАЕ - буфер
100 мл
Нагреть до
полного расплавления агарозы, охладить до 50-60оС.
10Х ТАЕ - буфер pH = 7.6
Tris
основной
24,2 г
Ледяная
уксусная кислота
5,71 мл 10 мл
Дистиллированная
вода
До 500 мл
В работе использовался коммерческий препарат антибиотика
ампицилин в концентрации 10000 мкг/мл. Аммпицилин растворяли в стерильной воде.
Изопропилтио в - галактозид (IPTG) и в-галактозиаду (X-Gal) производства «MBI Fermentas» (Литва) готовили в
соответствии с рекомендациями изготовителя и использовали в концентрации 100
ммоль/л и 20 мг/мл соответственно.
Тотальную ДНК использовали в качестве матрицы в полимеразной
цепной реакции. Рестрикцию ДНК и последующее лигирование фрагментов
осуществляли в условиях, рекомендуемых фирмой изготовителем ферментов «MBI Fermentas» (Литва). В качестве
реперной ДНК при определении размеров рестрикционных фрагментов использовали
синтетический репер 1 kb ladder (Fermentas, Литва))
Плазмидную ДНК из бактерий E.coli выделяли методом щелочного
лизиса. Выделение производили из ночной культуры E.coli, которую выращивали при
37 ОС.
Использовали растворы следующего состава: лизирующие (буфер I: 50 мМ глюкоза, 10мМ EDTA, 25 мМ Tris, лизоцим в концентрации
3 мг/мл; буфер II: 0,2н NaOH, 1% SDS) и нейтрализующий (3М ацета K, pH4,8). ДНК осаждали
изопропанолом и ресуспендировали в 200 мкл ТЕ буфера (10 мМ Tris pH 8.0, 1 мМ EDTA pH 8.0), дальнейшую очистку
препарата ДНК вели с использованием12 моль/л LiCl.
Трансформацию бактерий E.coli осуществляли кальциевым
методом. К клеткам предварительно переведённых в состояние компетентности
добавляли ДНК в концентрации до 1 мкг.
1) Бактериальную культуру выращивали в течении ночи на
питательном бульоне.
2) Ночную культуру разводили в 25 раз.
) Далее доращивали до log-фазы на качалке 200-250
оборотов 37 ОС до 2 часов.
) Бактериальную культуру переносим в стерильные
эппендерфы по 1,5.
5) Центрифугировали 5000 об/ мин 5 мин 4оС
6) Супернатант удаляли, осадок мягко ресуспендировали в
100 мкл 0,1М CaCl2. Эппендорфы оставляли на лядяной бане на 1 час для достижения
компетентности.
) К компетентным клеткам добавляли в концентрации ДНК
до 1 мкг и оставить в тех же условиях на 30-45 минут.
) Осуществляли температурный шок: 40оС - 30
сек + 2 мин на ледяной бане.
) В эппендорфы добавляли 1 мл питательного бульона, и
помещали на качалку на 30 мин, 200-250 оборотов 37оС для экспрессии.
) Центрифугировали 5000 об/мин 5 мин.
) Производили высев на чашки с селективной средой
содержащей ампициллин в концентрации 50 мкг/мл, IpTg в концентрации 0,5
ммоль/л, Х-gal в концентрации 0,1 мг/мл.
) Учёт результатов производили через 24 часа.
Электофоретический анализ ДНК осуществляли общепринятыми
методами. Для продуктов использовали 0,7% агарозный гель и ТАЕ-буфер. Для
визуализации фрагментов ДНК использовали бромистый этидий (добавляли в буфер) в
конечной концентрации 0,5 мкг/мл. Для нанесения проб использовали буфер
следующего состава: 40% сахароза, 0,25% бромфенеловый синий. Гель фотографировали,
используя
Размер фрагментов ДНК устанавливали на основании их
электрофоретической подвижности в агарозном геле, в качестве реперной ДНК
использовали 1 kb DNA Ladder (Fermentas, Литва)
При постановке полимеразной цепной реакции (ПЦР) использовали
набор FermentasTM (Литва) и амплификатор Thermo scientific Pico 24 Thermal Cycler.
Реакционную смесь для ПЦР готовили в объёме 20 мкл, состав
реакционноё смеси представлен в таблице 2.
Таблица 2.2 - Состав реакционной смеси для полимеразной
цепной реакции
Компонент
Объём (мкл)
Исходная
концентрация
Конечная
концентрация
ДНК
1-4
-
0,1-5 нг/мкл
Праймер 1
1
10 мкмоль/л
0,5 мкмоль/мл
Праймер 2
1
10 мкмоль/л
0,5 мкмоль/мл
Буфер
2
10Х
1Х
Смесь dNTP
2
2 ммоль/л
0,2 ммоль/л
ДНК-полимераза
0,06
5 ед/мкл
0,0025 ед/мкл
mQ вода
до 20 мкл
-
-
Фрагмент бактериальной хромосомы B. subtilis размером 885 п.н.,
содержащий гены tmrB и aroK - амплифицировали с помощью праймеров ShikF-NotI (5’ - GCGGCCGCCATTAGTGTAAAGTGGTGAAC-3’) и ShikR-BamH1 (5’ - CCGGATCCGCCCAGAGATACGATTTTG-3’) при
режиме амплификации: 94 ОС - 5 минут (один цикл); 94 ОС -
30 секунд, 54 ОС - 5 секунд, 52 ОС-25 секунд, 94ОС-30
секунд, 54 ОС-5 секунд, 52 ОС-25 секунд, 68 ОС-
1 минута 30 секунд (10 циклов); 94 ОС-30 секунд, 54 ОС-30
секунд, 68 ОС- 1 минута 30 секунд, (20 циклов); 72 ОС - 5
минут. Праймеры содержали на 5’ - концах сайты для рестриктаз NotI и BamHI соответственно.
Наиболее перспективным методом получения шикимовой кислоты
является микробиологический синтез.
В общем пути биосинтеза ароматических соединений образующийся
шикимат подвергается фосфолированию под действием шикиматкиназы с образованием
шикимат-3-фосфата. Для накопления шикимата надо инактивировать данный фермент.
Данный фермент кодируется геном aroI, который расположен достаточно далеко от
остальных генов данного метаболитического пути. Одним из таких вариантов
является постановка гена aroI под регулируемый промотор в составе
бактериальной хромосомы. Данный метод позволяет регулировать уровень экспрессии
гена в зависимости от стадии культивирования штамма-продуцента: индуцировать на
ранних этапах роста культуры, позволяя ей проявлять свои прототрофные свойства
и блокировать на поздних, вызывая накопление шикимовой кислоты.
Для амплификации целевого фрагмента, ограниченного генами tmrB и aroK, также содержащего
регуляторные элементы указанных генов, кодирующие последовательности которых
расположены на «-» и «+» цепи ДНК соответственно, использовали праймеры
содержащие на своих 5’ концах навески с сайтами распознавания для рестриктаз BamHI и NotI.
Данный фрагмент амплифицировали с матриц штаммов В. Subtilis ВНИИгенетика-15 С10 и
ВНИИгенетика-15 D4, размер данного фрагмента должен составлять 885 п.н.
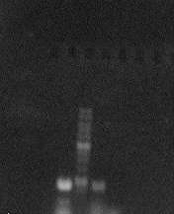
Рисунок 3.1 - Электрофореграмма продуктов амплификации.
- продукт амплификации по матрице ВНИИгенетика-15 D4
- маркер1 kb DNA Ladder
- продукт амплификации по матрице ВНИИ генетика-15 С10
Так как концентрация продукта амплификации с матрицы ВНИИгенетика-15
D4 была больше, этот
продукт использовался в дальнейшем работе.
Полученный продукт лигировали с ДНК плазмиды pMTL21C. C ДНК плазмиды
предварительно осуществляли рестрикцию по сайту рестрикции SmaI. Лигированной смесью
трансформировали клетки E. coli DH5a. Селекцию вели на полноценной питательной агаризованной
среде, содержащий ампициллин в концентрации 50 мкг/мл, X-Gal, IPTG. Из клонов
трансформантов, имеющих белую окраску выделяли плазмидную ДНК и проверяли путём
рестрикционного анализа по сайту рестрикции BamHI.
С данным продуктом рестрикции осуществляли полимеразную
цепную реакцию. Наименование
реагента
Исходная
концентрация
Желаемое
количество / концентрация в конечном растворе
Объем реактива
(добавляемый в пробирку)
ДНК вставки
50 ng/µl
91,7 ng
1,3 µl
ДНК вектора
50 ng/µl
108,3 ng
2,2 µl
10x Ligation Buffer
10X
1X
2.0
µl
T4 ligase
10
u/µl
5 u
0.5 µl
H2O
до 20 µl
14,02 µl
Условия
реакции: реакционная смесь оставляется на ночь при 4-8оС) Для инактивации
фермента выдерживаем смесь 10 минут при 65°С.
Суммарное количество ДНК в лигазной смеси - 200 ng
Отношение вектор / вставка = 1/3
Пусть x - масса вектора в ng, у - масса вставки в ng.
x+y=200 (y/1000)/(x/3543)=3=200-y
y/1000=3*(200-y)/3543=91,7 нг x=108,3 ng
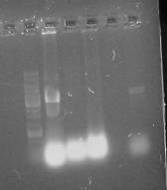
Рисунок 3.2 - Электофореграмма продуктов рестрикции по BamHI
1- маркер1 kb DNA Ladder
2- плазмида pMTL21C
- продукт рестрикции BamHI
- продукт рестрикции BamHI
- продукт рестрикции BamHI
- продукт рестрикции BamHI
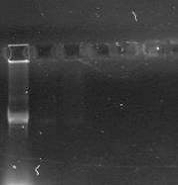
Рисунок 3.3 - Электофореграмма продуктов амплификации по
матрице BamHI
-плазмида pMTL21C
2 - продукт амплификации по матрице BamHI
В ходе данной работы были получены ампликоны с матриц с
матриц В. Subtilis ВНИИгенетика-15 С10 и В. Subtilis ВНИИгенетика-15 D4.
Осуществлено лигирование с ДНК плазмидой pMTL21C.
Осуществлена трансформация клеток E.coli DH5б.
Список использованной литературы
1. Бочков, Д.В. Исследование содержания
шикимовой кислоты в некоторых ратениях Алтайского края/ Д.В Бочков, С.В.
Сысолятин, А.И. Калашников, И.А. Сурмачёва // Химия растительного сырья 2011
№1. - с. 119-122
2. Бочков, Д.В. Поиск сырья для выделения
шикимовой кислоты/ Д.В Бочков, С.В. Сысолятин, А.И. Калашников, И.А. Сурмачёва,
А.А. Ламберова, А.С. Буянова, М.Э. Ламберова // Химия растительного сырья 2011
№3. - с. 81-87
3. Iwona Gientka. SHIKIMATE PATHWAY
IN YEAST CELLS: ENzYMES, FUNCTIONING, REGULATION - A REVIEW // Iwona Gientka,
Wanda Duszkiewicz-Reinhard // Рolish journal of food and nutrition sciences 2009, Vol. 59,
No. 2, pp. 113-118
. Fengli Chen. Extraction and
Chromatographic Determination of Shikimic Acid in Chinese Conifer Needles with
1-Benzyl-3-methylimidazolium Bromide Ionic Liquid Aqueous Solutions/ Fengli
Chen, Kexin Hou, Shuangyang Li, Yuangang Zu, and Lei Yang // Journal of
Analytical Methods in Chemistry Volume 2014 (2014), Article ID 256473, 12
pages.
. Malachi Griffith. Genetic
Modification of the Escherichia coli Strain DH5б to Allow the Selection of
Plasmids Carrying Complementary Yeast Genes // Projects in Biology 05.4111/6
Supervised by Dr. R.D. Gietz April 2, 2001
. Dewick, M. THE SHIKIMATE
PATHWAY:AROMATIC AMINO ACIDS AND PHENYLPROPANOIDS/ M. Dewick // Medicinal
Natural Products, 2002.
. Denis, V. Shikimic acid: review
of its analytical, isolation, and purification techniques from plant and
microbial sources/ Denis V. Bochkov, Sergey V. Sysolyatin, Alexander I.
Kalashnikov, and Irina A. Surmacheva // J Chem Biol. Jan 2012; 5 (1): c. 5-17.
8. Интернет-портал DH5-Alpha E.coli [Электронный ресурс] -
Режим доступа http://microbewiki.kenyon.edu/index.php/DH5-Alpha_E.coli.
. Интернет-портал Шикиматный путь
[Электронный ресурс] - Режим доступа
http://www.pandia.ru/text/77/454/37664.php.
. Интернет-портал Осельтамивир (Тамифлю)
[Электронный ресурс] - Режим доступа http://it-apharm.ru/oseltamivir.html.
. Интернет-портал Осельтамивир
(Oseltamyvir): инструкция, применение и формула [Электронный ресурс] - Режим
доступа http://www.rlsnet.ru/mnn_index_id_2869.htm
12. Hermann K.M. The
shirimatepathway:early steps in the biosynthesis of aromatic compounds. // The
Plant cell. -1995. Vol.7. - c. 907-919.
. Rangashari S., Fiedmay T.C.,
Hartvan G., Hemmiinghaus J.V., Kretzmer K.A. Processes for producing and recovering
shicimic acid.: пат. WO 2009/052303 А2 СI2P 7/42 (2006.01).-опублю 23.04.2009.
. Brouns K.D. Regulation of
aromatic amino acid biosyntesis in E.coli K12 // Genetics. - 1960. Vol.60. - c.
31-48
15. Panina E.M., Vitreschak A.G., A.A. Mironov and gelfand. Regulation
of Aromatic Amino acid Biosyntesis in Gamma - Proteobacteria // J. Mol.
Vicrobiol/ Biotechnol. - 2001.-Vol.33-/529-543
. Adachi O., Ano Y., Toyama H.,
Matsushita K. //High shikimate production from quinate with two enzymatic
systems of acetic acid bacteria. Biosci. Biotechnol. Biochem.2006. Vol.70.
17. Ambhaikar N. Shicimic acid //
Material of Group Meeting, 1.12.2005. - 2005.-7c.
. Frost J.W. Methods and materials
for production of shicimic acid.: patent US 2007/0087424 A1, C12P 7/42, C12N
1/21, C07H21/04? C12n 15/74.-опубликовано 19.04.2007
. Johansson L., Lindskog A.,
Silfversparre G., Cimander C., // Shicimic acid production by modified strain
of E.coli under phosphate-limited and carbon limited condition. //Biotechnology
and Bioengineering.2005. Vol.92. No.5., p541-552.
. Escalante A., Calderyn R.,
Valdivia A., Anda R., Hernandez G., Ramfirez O.T., Gosset G and Bolivar F.
Metabolic engineering for the production of shicimic acid in an evolved E.coli
strain lacking the phosphoenolpyruvate:carbohydrate phosphotransferaze system.
// Microbial Cell Factories. -2010.-Vol. 9. - c. 21.
. Iomantas Yurgis A.V., Abalkina
E.G., Polanuer B.M., Yampolskay T.A., Bachina T.A., Kozlov Y.B. //Method for
production shicimic acid // US6436664.2002-08-20.
. Chambers S.P., prior S.E.,
Barstov D.A., Minton N.P., The pMTL nic-cloning vectors. Improved pUC
polylinker regions to facilitate the the use of nucleotide sequencing //Gene. -
1988.-Vol.68, №1.-с. 139-149
23. Интернет-портал E. coli genotypes [Электронный ресурс] -
Режим доступа http://openwetware.org/wiki/E._coli_genotypes#DH5.CE.B1.
Краткая
характеристика штамма E.coli DH5б
2.2
Среды и реактивы
.3
Методы исследования
Манипуляции
с ДНК
Выделение
плазмидной ДНК
Трансформация
бактерий
Электофоретический
анализ
Полимеразная
цепная реакция
3.
Результаты и обсуждение
Заключение