Материал: УСР №1. Пластиды растительных клеток
Учреждение образования
”ПОЛЕССКИЙ ГОСУДАРСТВЕННЫЙ УНИВЕРСИТЕТ“
Факультет биотехнологический
Кафедра биотехнологии
Управляемая самостоятельная работа № 1
по дисциплине: «Цитология и гистология»
на тему:
Пластиды растительных клеток
Студент 1 курса, гр.22БХ-1 |
|
Децук Валерия Петровна |
||
Биохимия |
(подпись) __________________2022 |
|||
|
|
|
|
|
Проверил |
|
Татьяна Михайловна Натынчик |
старший преподаватель |
(подпись) ___________________2022 |
|
ПИНСК 2022

Оглавление
Глава 1 Онтогенез и структурно-функциональные перестройки пластид
|
3-4 |
Глава 2 Структура и функции хлоропластов
|
5-8 |
Глава 3 Геном хлоропластов
|
9 |
СПИСОК ИСПОЛЬЗОВАННЫХ ИСТОЧНИКОВ
|
10 |
Глава 1. Онтогенез и структурно-функциональные перестройки пластид.
Пластиды – это двумембранные органоиды, которые характерны для растительных клеток. Они были открыты А. Левенгуком в 1676 г. У высших растений имеется несколько типов пластид, отличающихся составом пигментов, структурой и функциями – хлоропласты, лейкопласты, амилопласты и хромопласты. Кроме высших растений, пластиды обнаружены также у некоторых водорослей и простейших. Количество пластид в клетке может колебаться от нескольких десятков до сотен. В среднем клетка высших растений содержит около 30 пластид. На самом деле все пластиды являются разновидностями одного органоида – хлоропласта.
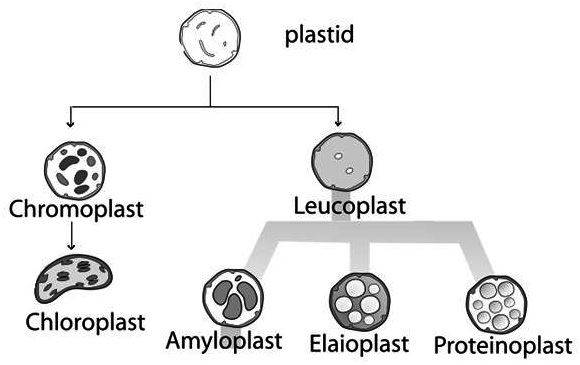
Рисунок 1.1. - Типы пластид
Зрелые хлоропласты высших растений делятся редко. Размножение хлоропластов и других пластид происходит в основном на уровне их предшественников – пропластид, которые представляют собой двумембранные пузырьки. Они содержатся в молодых камбиальных тканях и способны делиться перетяжкой или почкованием. Если растение развивается в условиях нормального освещения, пропластиды дифференцируются непосредственно в хлоропласты. В темноте пропластиды увеличиваются в размерах, но вместо ламелл и тилакоидов в них образуются многочисленные мелкие пузырьки и их комплексы (проламеллярные тела).
Образованные в этом случае бесцветные пластиды называются лейкопластами (этиопластами). На свету они способны превращаться в полноценные хлоропласты. В строме лейкопластов часто откладываются запасные питательные вещества, в особенности крахмал. В таких тканях, как эндосперм злаков, при накоплении большого числа крахмальных зерен в строме пропластиды и лейкопласты дифференцируются в амилопласты. Хлоропласты, лейкопласты и амилопласты могут необратимо превращаться в окрашенные в желто-красные цвета хромопласты. При этом мембранные структуры органоида деградируют, хлорофилл и крахмал исчезают, а в строме образуются пластоглобулы – липидные капли с растворенными в них пигментами – каротиноидами.
Глава 2. Структура и функции хлоропластов.
Хлоропласты – это тельца овальной формы шириной 2-4 мкм и длиной 4-10 мкм. Они имеют две мембраны толщиной по 7 нм с межмембранным пространством шириной около 30 нм. Как и у митохондрий, наружная и внутренняя мембраны хлоропласта отличаются проницаемостью и другими физико-химическими свойствами. Внутренняя мембрана хлоропластов образует протяженные складки – ламеллы. На ламеллах располагаются плоские мембранные цистерны дисковидной формы – тилакоиды, имеющие полость шириной 25 нм. Они собраны в комплексы наподобие столбика монет – граны. Тилакоиды уложены в гране таким образом, что между соседними мембранами остается пространство шириной 2 нм. Число тилакоидов в гране может достигать несколько десятков.
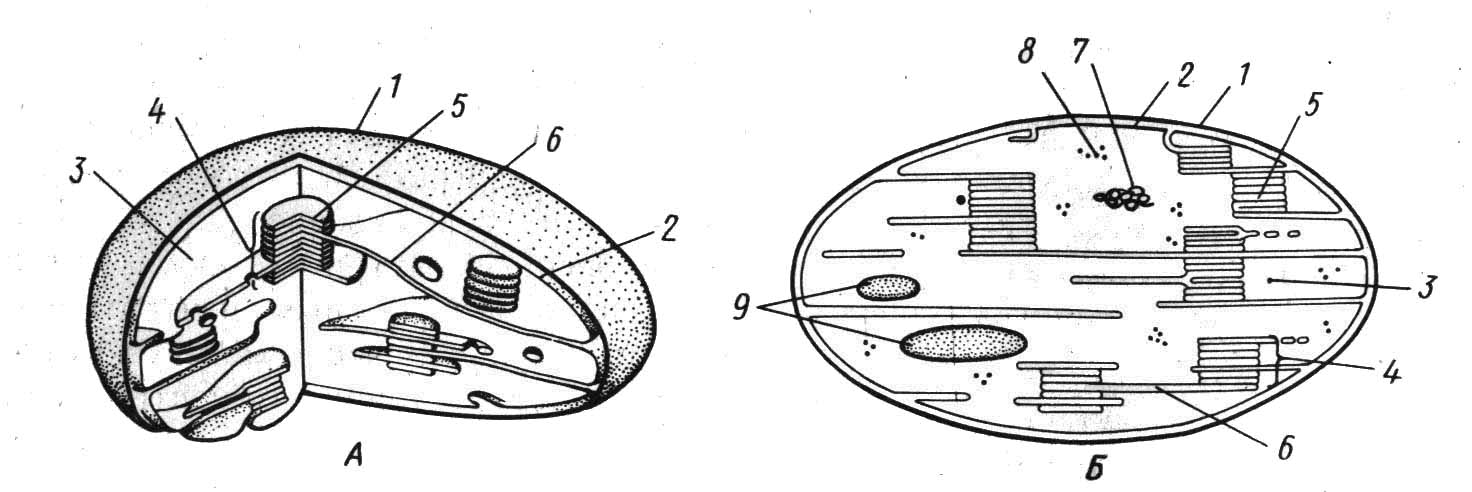 Внутри
хлоропласта между мембранными структурами
содержится мелкодисперсное вещество,
формирующее матрикс, или строму. У
некоторых хлоропластов и других пластид
в строме обнаруживаются включения –
пластоглобулы, крахмальные зерна
и кристаллы белка.
1.Наружняя мембрана, 2-внутренняя мембрана, 3-строма, 4-грана, 5-тилакоиды граны, 6-тилакоиды стромы, 7-нить днк, 8-рибосомы, 9-крахмальные зерна.
Рисунок 2.1. – Хлоропласт (А-трехмерная модель, Б-срез)
Фотосинтез – основная и главная функция хлоропластов. В хлоропластах осуществляется фотосинтез, в результате которого из углекислого газа и воды с использованием энергии света образуется органическое вещество и выделяется кислород. Процесс фотосинтеза подразделяется на световую и темновую фазы.
Световые реакции. Преобразование
энергии света в энергию химических
связей начинается в реакционных центрах,
входящих в состав мембран тилакоидов.
В составе реакционных центров
обнаруживаются разнообразные сочетания
пигментов: хлорофиллы а и b, каротиноиды
и другие. Кроме указанных пигментов
в мембранах обнаруживаются разнообразные
вещества – переносчики электронов и
протонов. Основные сочетания пигментов
и переносчиков называются 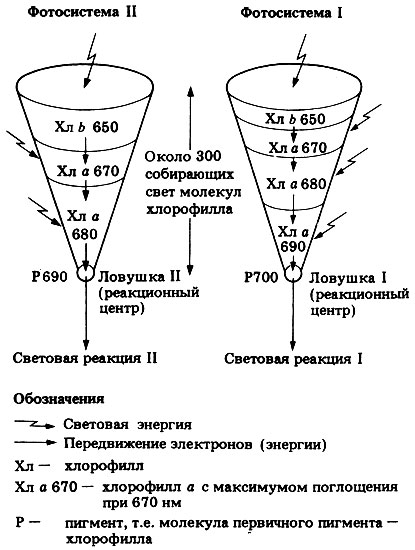 фотосистемы:
фотосистема I и фотосистема II.
Рисунок 2.2. – Схематическое представление об энергетических ловушках в фотосистемах I и II.
Универсальным способом образования АТФ является механизм нециклического фотофосфорилирования. Энергия света, поглощенная пигментами, преобразуется в энергию электронов. Свободные электроны образуются при фотолизе (фотоокислении) воды – расщеплении молекулы Н2О с затратой световой энергии. При фотолизе воды выделяется молекулярный кислород. Энергия электронов используется для создания протонных резервуаров внутри тилакоидов и формирования электрохимических потенциалов на мембранах тилакоидов. В свою очередь, энергия электрохимического потенциала используется для синтеза АТФ. Электроны, потерявшие энергию, используются для восстановления НАДФ. В действительности световые реакции протекают более сложно.
Фотосистема II поглощает высокоэнергетические кванты света. Электроны хлорофилла переходят в возбужденное состояние, а затем молекула хлорофилла теряет один возбужденный электрон с избытком энергии. Окисленный хлорофилл отщепляет один электрон от молекулы воды. Вода разлагается на протон Н+ и свободный радикал НО. Два радикала НО- объединяются в молекулу Н2О2, которая разлагается каталазой на Н2О и О2.
Процесс расщепления воды под воздействием света называется фотолиз. При фотолизе выделяется молекулярный кислород как побочный продукт световых реакций фотосинтеза:
4 Н2О → 4 Н+ + 4 НО· + 4 ē; 4 НО· → 2 Н2О2 → 2 Н2О + О2↑
Высокоэнергетические электроны от молекул хлорофилла присоединяются к хинонам, образуя восстановленные хиноны (KoQ 2–). Восстановленные хиноны диффундируют на внешнюю сторону мембраны тилакоида (к строме). Здесь к хинонам присоединяются протоны, которые всегда присутствуют в водных растворах вследствие электролитической диссоциации воды. Хиноны вместе с протонами диффундируют на внутреннюю сторону мембраны (к матриксу тилакоида). Под воздействием цитохромов b протоны отщепляются от хинонов и переходят в матрикс тилакоида. Затем хиноны вновь диффундируют к строме, где вновь присоединяют протоны. Таким образом, строма служит источником протонов, а матрикс тилакоидов – протонным резервуаром. Электроны, частично израсходовавшие энергию на перенос протонов, отщепляются от хинонов и поступают на промежуточный переносчик – цитохром f.
Фотосистема I поглощает низкоэнергетические кванты света. Электроны хлорофилла фотосистемы I переходят в возбужденное состояние, а затем молекула хлорофилла теряет один возбужденный электрон. Потерю электронов молекулы хлорофилла восполняют, забирая электроны от цитохромов f. Электроны от фотосистемы I через промежуточные мембранные переносчики (ферредоксин и другие) используются для восстановления немембранного переносчика электронов и протонов НАДФ:
НАДФ+ + 2 ē + 2 Н+ → НАДФ·Н+Н+.
Избыток протонов из матрикса переходит через канал АТФазы в строму. Энергия электрохимического потенциала используется для фотофосфорилирования – синтеза АТФ из АДФ и неорганического фосфата. В итоге энергия света расходуется на синтез АТФ и на восстановление НАДФ.
Темновые реакции. АТФ и НАДФ·Н+Н+, образовавшиеся в ходе световых реакций, используются для восстановления СО2 и образования глюкозы. Образовавшаяся глюкоза превращается в первичный крахмал. Первичный крахмал в дальнейшем гидролизуется с образованием глюкозы. Эта глюкоза транспортируется за пределы хлоропласта: в остальные клетки и органы растения. Здесь она превращается во вторичный крахмал, используется для дыхания и для биосинтеза кислот, аминокислот и других веществ. Суммарное уравнение фотосинтеза записывается следующим образом:
6 СО2 + 6 Н2О + световая энергия → С6Н12О6 + 6 О2 + тепло
Существует несколько механизмов темновых реакций. Универсальным способом фиксации СО2 является цикл Кальвина. Пятиуглеродный сахар рибулозодифосфат с помощью РДФ-карбоксилазы присоединяет одну молекулу СО2. Образуется неустойчивое шестиуглеродное соединение, которое разлагается на две молекулы фосфоглицериновой кислоты (ФГК). С помощью АТФ и НАДФ·Н+Н+ каждая молекула ФГК восстанавливается до фосфоглицеринового альдегида (ФГА). Одна шестая часть молекул ФГА в ходе реакций изомеризации и димеризации образуют фруктозу, которая превращается в глюкозу. Большая часть ФГА (5/6) используется на образование рибулозодифосфата.
Глава 3. Геном хлоропластов.
Подобно митохондриям, хлоропласты имеют собственную генетическую систему, обеспечивающую синтез ряда белков внутри самих пластид. В матриксе хлоропластов обнаруживаются ДНК, разные РНК и рибосомы. Оказалось, что ДНК хлоропластов резко отличается от ДНК ядра. Она представлена циклическими молекулами длиной до 40-60 мкм, имеющими молекулярный вес 0,8-1,3х108 дальтон. В одном хлоропласте может быть множество копий ДНК. Так, в индивидуальном хлоропласте кукурузы присутствует 20-40 копий молекул ДНК.
Длительность цикла и скорость репликации ядерной и хлоропластной ДНК, как было показано на клетках зеленых водорослей, не совпадают. ДНК хлоропластов не состоит в комплексе с гистонами. Все эти характеристики ДНК хлоропластов лизки к характеристикам ДНК прокариотических клеток. Более того, сходство ДНК хлоропластов и бактерий подкрепляется еще и тем, что основные регуляторные последовательности транскрипции (промоторы, терминаторы) у них одинаковы. На ДНК хлоропластов синтезируются все виды РНК (информационная, трансферная, рибосомная). ДНК хлоропластов кодирует рРНК, входящую в состав рибосом этих пластид, которые относятся к прокариотическому 70S типу (содержат 16S и 23S рРНК). Рибосомы хлоропластов чувствительны к антибиотику хлорамфениколу, подавляющему синтез белка у прокариотических клеток. Так же как в случае хлоропластов мы вновь сталкиваемся с существованием особой системы синтеза белка, отличной от таковой в клетке.
Эти открытия вновь пробудили интерес к теории симбиотического происхождения хлоропластов. Идея о том, что хлоропласты возникли за счет объединения клеток-гетеротрофов с прокариотическими синезелеными водорослями, высказанная на рубеже XIX и XX вв. (А.С. Фоминцин, К.С.Мережковский) вновь находит свое подтверждение. В пользу этой теории говорит удивительное сходство в строении хлоропластов и синезеленых водорослей, 6 сходство с основными их функциональными особенностями, и в первую очередь со способностью к фотосинтетическим процессам.
Список использованных источников
Верещагина, В.А. Основы общей цитологии: учебное пособие / В.А. Верещагина. - 2-е изд., испр. и доп. - М.: Академия, 2007. - 176 с.
Верещагина, В.А. Цитология : учебник для студентов учреждений высшего профессионального образования / В. А. Верещагина. - М. : Академия, 2012. - 176 с.
Ченцов, Ю.С. Введение в клеточную биологию. / Ю.С. Ченцов - 4-е изд., перераб. и доп. - М.: ИКЦ ”Академкнига“, 2004. - 495 с.