Курсовая работа (т): Влияние степени окисления элементов на их биологическую роль
Влияние степени окисления элементов на их биологическую роль
Белорусский государственный университет
Химический факультет
Кафедра неорганической химии
Курсовая работа
Влияние степени окисления элементов на их биологическую роль
Студентки 1 курса
группы
химического факультета БГУ
Новожиловой Марии Юрьевны
Руководитель:
Доцент кафедры неорганической химии
Лесникович Юлия Анатольевна
Минск, 2015
Введение
Основное место в живых организмах занимают сложные органические молекулы, однако их предназначение не может быть реализовано без определенного содействия ряда низкомолекулярных веществ. Это так называемые металлы жизни: Na, K, Ca, Mg, Zn, Fe, Mn, Cu, Co, Mo. Видно, что основная масса биологически активных металлов относится к переходным элементам.
В данной работе будет рассмотрено биологическое действие пяти металлов жизни: железа, меди, марганца, кобальта и молибдена. Целью данной работы является изучение биологической роли каждого из вышеперечисленных металлов, а также выявление общих закономерностей для всех d-металлов, имеющих переменную валентность.
Для достижения цели работы были поставлены следующие задачи:
. Провести обзор научной литературы, статей и рефератов, соответствующих теме курсовой работы.
. Выделить наиболее значимую информацию.
. На основе исследования выявить характерные особенности биологической роли d-металлов с переменной валентностью.
. Обобщить собранный материал по данной теме.
Переходные металлы участвуют в жизненно важных
процессах организма, поэтому изучение их свойств и биологической роли является
важной задачей для современной биохимии, фармакологии и медицины.
Общие сведения о свойствах d-элементов. Степени окисления
окисление биологический железо медь
Важным свойством d-элементов является переменная валентность и, как следствие, разнообразие степеней окисления. Эта связано с незавершенностью предвнешнего электронного слоя (кроме элементов IB и IIB групп). Возможность существования d-металлов в разных степенях окисления определяет их широкий диапазон окислительно-восстановительных свойств.
Скорее всего в ходе биологической эволюции отбирались соединения элементов в промежуточных степенях окисления с мягкими окислительно-восстановительными свойствами, так как они способствуют плавному протеканию биохимических реакций. Известно, что ионы Мn2+, Fе2+, Со2+, Cu2+ при физиологических условиях практически не проявляют в организме восстановительных свойств, а Mo5+ и Mo6+ проявляют слабые окислительные свойства. Тонкая регулировка биологических процессов обеспечивает выигрыш по энергии. Из-за этого функционирование организма становится менее энергоемким и уменьшается потребление пищевых продуктов [5].
Дополнительное снижение реакционной способности происходит при взаимодействии этих ионов с биоорганическими лигандами.
Комплексообразование
Комплексообразующая способность у d-металлов достаточно высокая, обычно значительно выше, чем у s- и p-элементов. Это прежде всего объясняется возможностями d-элементов быть как донорами, так и акцепторами электронной пары при образовании комплексных соединений.
В биохимических реакциях d-элементы часто проявляют себя как металлы-комплексообразователи. Лигандами при этом выступают биологические молекулы или анионы неорганических кислот. Ион металла взаимодействует с электроотрицательными атомами, входящими в различные функциональные группы: гидроксильные, сульфгидрильные, карбоксильные и аминогруппы.
Важно отметить, что различные окислительные состояния d-металлов стабилизируются соответствующими лигандами.
Металлопорфирины
Для живых организмов очень важны комплексные
соединения металлов, в которых четыре координационных места занимает частица,
называемая порфином. Она содержит четыре пирролоподобных цикла, соединенных
=CH-группами:
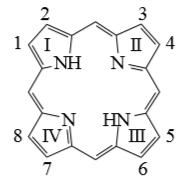
Рисунок
1. Порфин
Ион металла замещает атомы водорода двух пиррольных колец и одновременно связывается координационными связями с третичными атомами азота. Благодаря эффекту резонанса связи металла с четырьмя атомами азота пиррольных колец рассматриваются как одинаковые.
Производными порфина являются порфирины. К ним в настоящее время относятся представители многочисленного класса циклических ароматических соединений. Основной каркас молекулы сохраняется во многих важнейших веществах: гемоглобине, цитохромах, витамине В12.
Важнейшим свойством порфиринов является наличие в
молекуле координационной полости, ограниченной атомами азота, N4,
имеющей радиус около 2 Å и способной координировать ионы металлов М2+,
М3+, М4+. В результате комплексообразования образуются
так называемые металлопорфирины, обладающие многообразными структурными и химическими
особенностями, высокой биологической и каталитической активностью. При этом
металл либо занимает центр полости N4, образуя плоский
координационный узел из атомов MN4, либо оказывается приподнятым над
плоскостью, в которой лежат атомы азота, и образует координационные узлы
различной геометрической структуры - от тетрагональной пирамиды (L)MN4
и октаэдра (L1)(L2)MN4 до более сложных
геометрических фигур [9].
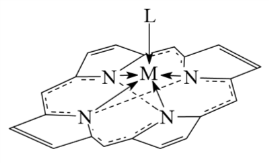
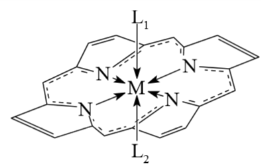
Рисунок
2. (L)MN4 Рисунок 3. (L1)(L2)MN4
Возможности молекул металлопорфиринов выступать в биологических процессах в качестве ферментов значительно расширяются в связи с необычайным строением порфиринов и их комплексов.
Металлопорфирины являются макроциклическими комплексами, и это накладывает отпечаток на их строение и свойства. Однако они отличаются от бесчисленного множества других групп макроциклических комплексов тем, что являются ароматическими макроциклами с уникальной сопряженной π-системой. Ароматичность порфиринов определяет их электронодонорные свойства, то есть способность к снижению локальных положительных и отрицательных зарядов путем их распределения по ароматическим орбиталям. Вследствие этого стабилизируются катион- и анионрадикальные формы, а также различные степени окисления металлов, возникающие в процессе функционирования биологически активных соединений на основе металлопорфиринов.
Общие сведения о биологической роли d-элементов
Большинство d-металлов служит в качестве простетических групп ферментов. Металлоферменты d-элементов - жизненно необходимы. Их биологическая роль зависит от прочности образуемого комплекса. Причем с повышением устойчивости металлофермента, повышается специфичность его действия.
К биологическим соединениям с невысокими значениями констант устойчивости можно отнести соединения, которые стабилизируют сложные структуры. Например, образование комплексов стабилизирует двойную спираль ДНК. Комплексы с ДНК образуют ионы Mn2+, Co2+, Fe2+ и они взаимозаменяемы.
В организме присутствуют и менее прочные комплексы, которые образуются только для выполнения определенных функций, после чего распадаются: например, образование между ионом металла и ферментом комплексного соединения в период осуществления катализа. Активаторами часто выступают ионы металла, в частности Mn2+. Большинство таких ферментов обладают каталитической активностью, однако без иона металла она ниже. Специфичность металлов в этих комплексах не выражена. Он может быть заменен на другой ион металла без потери физиологической активности.
Некоторые соединения настолько прочные, что постоянно находятся в организме и выполняют определенную функцию. Роль металла в таких комплексах высокоспецифична: замена его даже на близкий по свойствам элемент приводит к значительной или полной утрате физиологической активности. Например, гемоглобин и витамин В12.
Промежуточное положение между этими группами
биокомплексов занимают диссоциирующие металлоферменты. Ионы металлов в этих
комплексах выполняют функции кофактора [5].
Биологическая роль железа
Железо - важнейший биометалл. Среди биоэлементов оно играет доминирующую роль, так как является активатором многих каталитических процессов в организме, участвует в транспортировке газов кровью и работе электрон-транспортных цепей. Степень окисления железа зависит от выполняемой роли.
Основой миоглобина и гемоглобина, определяющей их
биологические роли и характерный красно-коричневый цвет, служит гем. Он
представляет собой протопорфирин, связанный с атом двухвалентного железа. Атом
железа имеет шесть координационных связей, четыре из которых участвуют в
образовании комплекса железа с плоской молекулой порфирина, а две другие
направлены перпендикулярно кольцу. В миоглобине и гемоглобине одна из этих
связей занята атомом азота, принадлежащим остатку гистидина. Другая связь
свободна и служит для связывания молекулы кислорода.
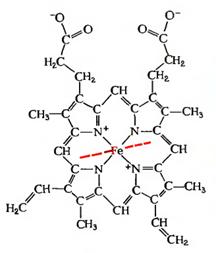
Рисунок 4. Структура гема
В миоглобине и гемоглобине за эту свободную связь помимо молекулы O2 может конкурировать молекула СО, которая образует с атомом железа в 200 раз более прочную связь, чем кислород. При отравлении угарным газом значительная часть гемоглобина переходит в форму карбоксигемоглобина, препятствуя переносу кислорода из легких в ткани [4].
Кислород транспортируется гемоглобином эритроцитов от
легких к мышцам и удерживается в мышцах миоглобином. Основная масса железа в
организме сконцентрирована в гемоглобине. Одна его молекула состоит из четырех
глобул и содержит четыре гема и, следовательно, четыре атома железа. Так как
кислород фиксируется непосредственно железом, то гемоглобин может присоединить
четыре молекулы O2.
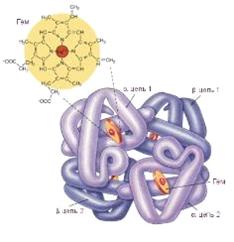
Рисунок 5. Молекула гемоглобина
Молекула О2 связывается с Fe2+
за счет дативной π-связи. Железо поставляет пару электронов, находящуюся
на его d-орбитали, на вакантную p-орбиталь кислорода. Образованию связи
благоприятствует высокая электронодонорная способность порфириновой π-системы и проксимального имидазола.
Атом железа после присоединения кислорода входит в координационную полость
порфирина и располагается центросимметрично [9].
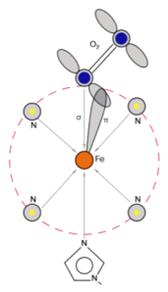
Рисунок 6. Схема координации в оксигенированном
гемоглобине
Кроме переноса кислорода от легких к тканям, гемоглобин осуществляет перенос конечных продуктов клеточного дыхания, Н+ и СО2, которые потом доставляются из тканей к легким и почкам - органам, обеспечивавшим выделение этих продуктов.
В клетках тканей питательные вещества окисляются в митохондриях с использованием кислорода, доставляемого гемоглобином из легких, при этом в качестве продуктов образуются в основном углекислый газ и вода. Образование СО2 приводит к повышению в тканях концентрации ионов Н+, т. е. к понижению рН из-за диссоциации угольной кислоты. На связывание кислорода гемоглобином очень сильное влияние оказывает pH и концентрация углекислого газа: связывание СO2 и ионов Н+ снижает способность гемоглобина связывать O2. В тканях с относительно низким значением рН и высокой концентрацией СО2 сродство гемоглобина к кислороду. И наоборот, в легочных капиллярах выделение СО2 и сопутствующее ему повышение рН крови приводит к увеличению сродства гемоглобина к кислороду. Этот механизм лежит в основе внешнего дыхания [4]. Важным производным гемоглобина является метгемоглобин, в молекуле которого атом железа находится в степени окисления 3+. Метгемоглобин не связывает молекулярный кислород. Он образуется при воздействии на гемоглобин окислителей. Образование метгемоглобина в крови уменьшает в ней количество функционально важного оксигемоглобина и нарушает доставку кислорода к тканям.
Миоглобин - кислородрод-связывающий белок,
присутствующий в мышечных клетках. Его функция состоит в том, что он запасает
связанный кислород и способствует его переносу в митохондрии, которые
потребляют кислород в процессе окисления питательных веществ. В молекуле
миоглобина полипептидная цепь координирована железом так же как в гемоглобине.
Но в отличие от молекулы гемоглобина, миоглобин состоит из одной глобулы и
содержит одну гемовую единицу.
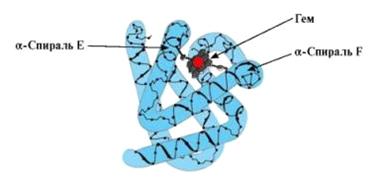
Рисунок 6. Молекула миоглобина
Комплексы железа с порфиринами участвуют не только в транспорте кислорода, но и выполняют множество других функций. Среди них процесс переноса электронов.
Важным этапом обмена вещества является отщепление от питательных веществ водорода. Атомы водорода при этом переходят в ионное состояние, а освободившиеся электроны поступают в дыхательную цепь. В этой цепи, переходя от одного соединения к другому, они отдают свою энергию на образование АТФ, а сами присоединяются к молекуле кислорода. Получившийся ион кислорода O2- образует с ионами водорода молекулы воды. Перенос электрона осуществляют железопорфириновые комплексы. Перенос электрона осуществляется за счет изменения степени окисления железа. Переходы
3+ + e- → Fe2+
Fe2+ − e- → Fe3+
создают возможность передавать электроны от одного цитохрома к другому.
Цитохромы - железосодержащие белки. Они принадлежат к классу гемопротеинов, молекулы которых содержат железо, входящее в состав железопорфириновой группы. Цитохромы обычно делят на три класса: a, b и c. Действуя в определенной последовательности, они переносят электроны от убихинона на молекулярный кислород. Цитохромы дыхательной цепи расположены в последовательности: b - c1 - c - aa3.
Лучше всех изучен цитохром с. Это небольшой белок с железопорфириновой группой, присоединенный ковалентной связью к единственной полипептидной цепи. В этом соединении порфириновое кольцо, содержащее железо (II) в центре, связано с белком за счет ковалентных связей атомов кольца с остатком цистеина в молекуле белка. С кислородом цитохром c не реагирует, так как у него шестое координационное место занято аминокислотным остатком метионина.
Цитохром аа3 отличается от других
цитохромов. В его состав входят две молекулы гема А, отличающегoся от протогема
гемоглобина наличием у его порфиринового кольца длинной углеводородной боковой
цепи. Кроме того, в нем имеются также два атома меди.
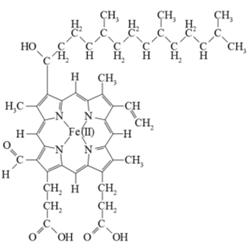
Рисунок 7. Структура гема А
Присоединив электроны, поступившие от цитохрома с, и перейдя таким образом в восстановленную Fe2+ форму, компонент а цитохрома аа3 передает затем эти электроны цитохрому а3. Восстановленный цитохром а3 в свою очередь передает электроны на молекулярный кислород. В этом процессе вместе с двумя железопорфириновыми группами участвуют два атома меди, что сопровождается обратимым изменением их валентности [Cu(I) - Сu(II)]. Этот процесс является важным, поскольку на этом этапе четыре электрона должны быть переданы почти одновременно на O2 для того, чтобы образовались две молекулы Н2O (четыре Н+-иона, которые тоже для этого необходимы, поступают из водной среды). Из всех переносчиков цепи только цитохром аа3 способен вступать непосредственно в реакцию с кислородом [9].