Курсовая работа (т): Водный обмен растений
Корневая система поверхностная, мало развитая, рассчитана на поглощение воды из верхних слоев почвы, увлажненных редко выпадающими дождями. В засуху корни могут отмирать, но после дождей быстро (за 2-4 дня) отрастают новые. Суккуленты приурочены главным образом к засушливым зонам Центральной Америки, Южной Африки, Средиземноморья.
Мезофиты - занимают промежуточное положение между гигрофитами и ксерофитами. Они распространены в умеренно влажных зонах с умеренно теплым режимом и достаточно хорошей обеспеченностью минеральным питанием. К мезофитам относятся растения лугов, травянистого покрова лесов, лиственные деревья и кустарники из областей умеренно влажного климата, а также большинство культурных растений и сорняки. Для мезофитов характерна высокая экологическая пластичность, позволяющая им адаптироваться к меняющимся условиям внешней среды.[3]
Специфичные пути регуляции водообмена позволили растениям занять самые различные по экологическим условиям участки суши. Многообразие способов приспособления лежит, таким образом, в основе распространения растений на Земле, где дефицит влаги является одной из главных проблем экологической адаптации.[5]
В естественных условиях в солнечные дни растение расходует воды больше, чем получает. В полдень содержание воды в листьях может быть на 25% меньше, чем утром. Такой водный дефицит является нормальным и неопасным для растения. Так как ночью транспирация сокращается, при нормальном поливе к утру листья снова насыщаются водой. Если растениям влаги в почве не хватает, к утру листья влагу не восстанавливают, появляется остаточный утренний водный дефицит. Если снабжение водой не улучшается, недостаток воды будет все более нарастать. Растение утрачивает тургор и начинает завядать. Первые фазы завядания (циторриза) сходны с первыми фазами плазмолиза (это явление, обратное тургору): объем клетки уменьшается из-за уменьшения содержания воды. Затем процессы завядания (циторриза) и плазмолиза проходят различно. При плазмолизе цитоплазма отстает от клеточной оболочки, при завядании же цитоплазма, которая сокращается из-за потери воды, тянет за собой оболочку, оболочка теряет свою форму. Завядание не означает гибели растения. При поступлении воды тургор восстанавливается, растение продолжает жить, но с большими или меньшими повреждениями. [9]
Различают два типа завядания. Причиной временного завядания чаще всего бывает атмосферная засуха, когда доступная вода в почве есть, однако низкая влажность воздуха и высокая температура настолько увеличивают транспирацию, что поступление воды не успевает за ее расходованием. При временном завядании в основном теряют тургор листья. Чаще всего это наблюдается в полуденные часы. В ночные часы растения оправляются и к утру тургор восстанавливается. Временное завядание не проходит без последствий: при потере тургора устьица закрываются, фотосинтез резко замедляется, растение не накапливает полезных веществ, а только тратит их. И все же, временное завядание сравнительно легко переносится растением.
Глубокое завядание наступает тогда, когда в почве почти не остается доступной для растения воды. В этих условиях даже небольшая транспирация вызывает все возрастающий водный дефицит и глубокое завядание, при котором происходит общее иссушение всего растительного организма. Растущие молодые листья оттягивают воду от стебля и корневой системы. Последствия такого завядания могут быть необратимыми и губительными. Вместе с тем непродолжительное завядание может рассматриваться как один из способов защиты растения от гибельного обезвоживания. Так при завядании, благодаря устьичным и внеустьичным регулирующим механизмам, транспирация резко сокращается, что позволяет растению в течение определенного промежутка времени сохранить воду и не погибнуть от полного высыхания. Водный дефицит и завядание вызывают сдвиг в физиологической деятельности растения. Эти изменения могут быть более или менее сильными, обратимыми и необратимыми, в зависимости от длительности обезвоживания и от вида растения.
Биохимические процессы, проходящие в растении под воздействием водного стресса, многообразны. Прежде всего, в клетках понижается содержание свободной воды, одновременно возрастает концентрация клеточного сока. Происходят глубокие изменения в цитоплазме, увеличивается ее вязкость. Возрастает проницаемость мембран. Листья, подвергшиеся завяданию, при помещении в воду выделяют значительное количество солей и других растворимых соединений. Усиленный выход солей (экзоосмос) наблюдается также из клеток корня, подвергнутых завяданию. Одновременно эти клетки теряют способность к поглощению питательных веществ. Изменения связаны с нарушениями в структуре мембран, которые наблюдаются при снижении содержания воды ниже 20% от массы. В результате нарушения гидратных оболочек меняется конфигурация белков-ферментов и, как следствие, их активность. Особенно резко падает активность ферментов, катализирующих процессы синтеза. Вместе с тем активность ферментов, катализирующих процессы распада, возрастает. Завядание приводит к увеличению активности ферментов, катализирующих распад белков (протеолиз). Содержание белкового азота резко падает, а небелкового - возрастает. Распад белков при обезвоживании может быть настолько глубоким, что наступает гибель растений.[10]
В условиях водного стресса происходят заметные изменения и в гормональной системе. Это прежде всего выражается в накоплении таких фитогормонов, как абсцизовая кислота и этилен. Абсцизовая кислота вызывает уменьшение транспирации при одновременном усилении поглощения воды корневой системой. В этой связи проявляется ее ведущая роль в процессах водного обмена. Вместе с этим уменьшается содержание таких фитогормонов, как ауксины и гиббереллины. Изменение соотношения фитогоромонов приводит к торможению роста, что также может рассматриваться как защитная реакция.
Недостаток воды изменяет и такие основные физиологические процессы, как фотосинтез и дыхание. При обезвоживании устьица закрываются, это резко снижает поступление диоксида углерода (углекислого газа) в лист и, как следствие, интенсивность фотосинтеза падает. Обезвоживание нарушает структуру хлоропластов, а также уменьшает активность ферментов, участвующих в фотосинтезе.[6]
Замечено, что при водном стрессе отдельные органы растения страдают в разной степени и в определенной последовательности. При начинающемся водном дефиците в растении наблюдается перераспределение воды. Молодые листья оттягивают воду от более старых, а также от корневой системы. Отмирают корневые волоски. Усиливаются процессы опробковения корней. Эти изменения приводят к значительному сокращению зоны, участвующей в поглощении воды, к снижению проницаемости клеток корня для воды. Именно это является причиной того, что после длительного завядания растения оправляются медленно. Более того, способность корневой системы к поглощению воды после завядания полностью не восстанавливается. После достижения растением полного тургора процессы обмена также восстанавливаются не сразу, так как водный стресс вызывает нарушения в системах регуляции.
Отмечается также, что растения наиболее чувствительны к недостатку воды в периоды наибольшего роста.[7]
водный поглощение растение транспирация
Заключение
Из всего выше перечисленного можно вывести общее заключение, что при дефиците влаги растения могут адаптироваться т.е. образование корневой системы, которая достигает влажных зон почвы; ограничение расхода воды на транспирацию; запасание воды в тканях растений.
Так как вода является основной составной частью растительных организмов. Вода- это та среда, в которой протекает все процессы обмена веществ.
Водный ток обеспечивает связь между отдельными органами растений. Питательные вещества передвигаются по растению в растворенном виде. Насыщенность водой (тургор) обеспечивает прочность тканей, сохранение структуры травянистых растений, определенную ориентировку организмов растений в пространстве. Рост клеток в фазе растяжения идет главным образом за счет накопления воды в вакуоли.
Таким образом, вода обеспечивает протекание процессов обмена, коррелятивные взаимодействия, связь организма со средой. Для нормальной жизнедеятельности клетка должна быть насыщенна водой.
Основным источником влаги является вода, находящаяся в почве, и основным органном поглощения воды является корневая система. Роль этого органа прежде всего заключается в том, что благодаря огромной поверхности обеспечивается поступление воды в растения из возможно большого объема почвы. Сформировавшаяся корневая система представляет собой сложный орган с хорошо дифференцированной внешней и внутренней структурой.
Литература
1.Якушкина Н.И. Физиология растений. М., Просвещение, 2009г. 433с.
.Козловский Водный обмен растений. М., Колос. 2009г.
.Сказкин Ф.Д. Критический период у растений к недостаточному водоснабжению. М., Наука. 2008г.276 с.
.Радкевич В.А. Экология. Мин., Высшая школа. 2003г. 370с.
.Генкель П.А. Физиология устойчивости растительных организмов. М., Изд-во МГУ. 2007г. т.3.
. Жданов В.С. Аквариумные растения. / Под. ред. Коровина. -
М.: Лесн. пром-ть , 2011г. 400 с.
. Горышина Т.К. Экология растений. - М.: Высшая школа, 2009г. 377 с.
. Кравченко М.А. Материалы для изучения курса общей экологии. М., Просвещение, 2009г. 263 с.
. Маврищев В.В. Основы экологии. -М., МГУ 2007 г. 297 с.
. Ильиных И.А., Малков П.Ю. Экология. - М., Наука. 2011г. 385 с.
. Березина Н.А., Афанасьева Н.Б. Экология растений. 2009г. с. 400
. Горелов А.А. Экология. Конспект лекций. 2008г. 192с.
. Новиков Ю.В. Экология, окружающая среда и человек, 2009г. 394с.
. Жмылев П.Ю., Алексеев Ю.Е. Биоморфология растений: иллюстрированный словарь. - Москва, МГУ, 2010г. 256 с.
. Барыкина Р.П., Чубатова Н.В. Большой практикум по ботанике. - Москва. 2009г. 77 с.
. Сукачев В.Н. Растительные сообщества 4 изд. доп. - Москва 2011 г. 232 с.
. Миркин Б.М., Наумова Л.Г., Соломещ А.И. Современная наука о растительности. - Москва, «Логос» 2009г. 264 с.
. Миркин Б.М., Наумова Л.Г., Мулдашев А.А. Высшие растения: краткий курс систематики с основами науки о растительности. - Москва, «Логос»
г. 242 с.
. Пехов А.П. Биология с основами экологии. СПб.: Лань, 2010. - 672 с.
. Горкин А. П. Биология. Современная иллюстрированная энциклопедия. - М.: Росмэн-Пресс, 2006. - 560 с.
. Судакова К.В. Физиология. Основы и функциональные системы. Курс лекций. М.: 2011. - 784 с.
. Андреева И.И., Родман Л.С. Ботаника. 2-е изд., перераб. и доп. - М.: КолосС, 2002. - 488 с.
. Камелин Р. В. Лекции по систематике растений. Главы теоретической систематики растений. 2009.- 226 с.
. Паутов А. А. Морфология и анатомия вегетативных органов растений. - Спб.: СПБГУ, 2012.- 336 с.
Приложение
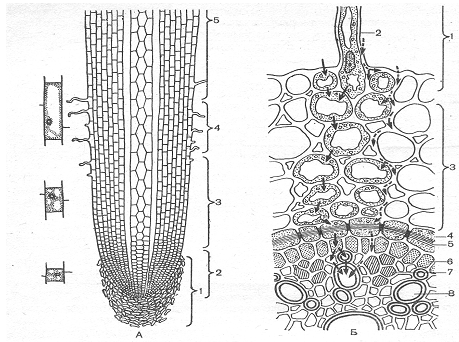
Рис.1.Схема строения корня
Рис.2. Путь воды в растении.
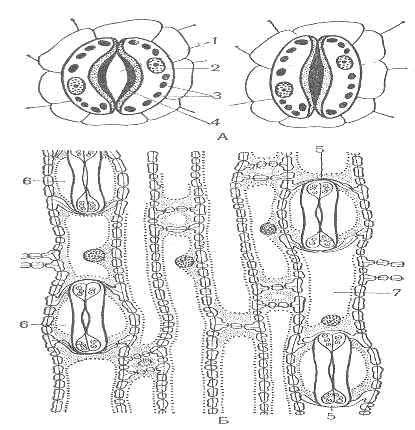
Рис.3 Структура устьиц у двудольных и однодольных растений.