Материал: Інформаційні міжклітинні взаємодії. Клітинні рецептори та їхня участь у процесах міжклітинної сигналізації
· Фактори росту.
Клас невеликих природних пептидів та білків, що беруть участь в сигнальних системах організму еукаріотів, зв'язуючись із рецепторами на поверхні клітин із головною метою стимулювання їх росту та диференціації. Важливі для регулювання різноманітності клітинних процесів. Конкретний ефект на клітину та тип клітин, на які діє фактор росту, залежить від конкретного фактору. Наприклад, білок морфогенезу кісток стимулює диференціацію клітин кісток, тоді як фактор росту фібробластів і васкулоендотеліальний фактор росту стимулюють диференціювання кровоносних судин (ангіогенез). [7] На відміну від гормонів, фактори росту секретуються локально та мають обмежену область дії, тоді як гормони переносяться кровотоком і мають ефект на дуже віддаленні тканини організму.
Вторинні посередники
У відповідь на приєднання ліганду чи фізичний стимул багато мембранних рецепторів ініціюють синтез або деградацію внутрішньоклітинних малих молекул, що зв'язуються із цитоплазматичними рецепторами. Внутрішньоклітинні ліганди називають вторинними посередниками або месенджерами (на відміну від первинних посередників - позаклітинних).
Внутрішньоклітинні сигнальні молекули передають сигнал від мембранних рецепторів на ефектори (виконавчі молекули), що опосередковують відповідь клітини на сигнал. До других (внутрішньоклітинних) посередникам свідносяться циклічні нуклеотиди (цАМФ і цГМФ), ІТФ, диацилглицерол, Ca2+, а також продукти окислення арахідонової кислоти. [3]
Циклічні нуклеотиди (цАМФ, цГМФ)
Ланцюг реакцій, ключовою ланкою в якій служить цАМФ, виглядає так: гормон - рецептор - активатор (Gs) аденілатциклази - активність аденілатциклази - [цАМФ] Т - активація цАМФ-залежної протеїнкінази A - фосфорилювання різних білків (переважно ферментів) - каскад ферментативного реакцій - фізіологічний відповідь клітини. Фундаментальна властивість цієї та інших систем других посередників полягає в тому, що сигнал багаторазово посилюється (феномен мультиплікації). [3] Наприклад, достатньо кількох молекул аденілатциклази, щоб активувати багато молекул інших ферментів і пустити в хід наростаючий каскад ферментних реакцій. Таким шляхом навіть невелика кількість молекул ліганда може викликати потужний фізіологічний відповідь клітини-мішені.
Іони Ca2 +
Іони Ca2 + - поширений другий посередник, що регулює безліч процесів. Функціонування іонів Ca2 + в якості других посередників можливо лише при підтримці нормальної [Ca2 +] в цитозолі у вкрай низьких межах (<100 нмоль / л), що підтримується Ca2 + -АТФазою плазмолемми і внутрішньоклітинними депо кальцію (наприклад, ендоплазматичний ретикулум). [3]
G-білки
Основним класом мембранних білків є рецептори,
зв'язані з G-білками. G-білки активують або пригнічують роботу аденілатциклази,
гуанілатциклази та фосфоліпази C, впливаючи на синтез вторинних посередників:
цАМФ, цГМФ, інозитол-3-фосфату (І3Ф), діацилгліцеролу (ДАГ). [4]
Рис. 2.3. Активація G-білка (приклад вторинного месенджера)
2.2 Рецептори
Рецептори в клітині-мішені - білки
(в ряді випадків гліко- і лі ліпопротеїни), в кожній клітині-мішені їх
налічуються тисячі і десятки тисяч. Кількість рецепторів в клітинах-мішенях не
залишається постійною: рецептори інактивуються або руйнуються в процесі їх
функціонування, реактивуються і постійно синтезуються. Ліганд, взаємодіючи з
його рецептором, утворює лігандрецепторний комплекс, що найсерйознішим чином
змінює функціональні можливості рецептора і є поштовхом до прояву
фізіологічного ефекту. Рецептори (залежно від їх розташування в клітині-мішені)
поділяються на мембранні (вбудовані в плазматичну мембрану) і
внутрішньоклітинні - цитозольні і ядерні. Деякі рецептори вбудовані в мембрани
внутрішньоклітинних органел (наприклад, в мембранах ендоплазматичної сітки
знаходяться рецептори ріанодина і інозітолтріфосфату - ІТФ).[2]
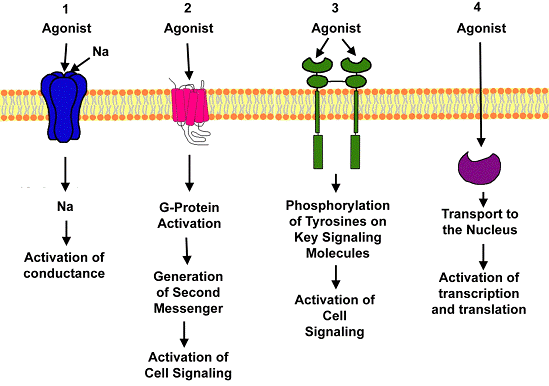
Рис. 2.4. Приклади рецепторів
Мембранні рецептори
Мембранні рецептори реєструють наявність ліганда і передають сигнал вторинним месенджерам. Вони класифікуються наступним чином:
• Каталітичні рецептори - трансмембранні білки, зовнішня частина яких містить зв'язуючу ліганд ділянку, а цитоплазматична частина або сама функціонує як активний центр ферменту, або тісно пов'язана з молекулою ферменту.
• Рецептори, пов'язані з іонними каналами, впливають на проникність іонних каналів через другі посередники. До них відносяться адренорецептори, мускаринові холінорецептори, рецептори серотоніну, дофаміну. Рецептори цього типу - метаботропні рецептори, вони активуються в клітині-мішені в результаті різних метаболічних процесів, що відбуваються після утворення комплексу «ліганд-рецептор». [4]
• Керовані лігандами іонні канали - інтегровані мембранні білки - поєднують властивості рецептора і іонного каналу і вбудовані в постсинаптичну мембрану нервових клітин, а також в постсинаптичну мембрану нервово-м'язових синапсів між розгалуженнями аксонів мотонейронів і скелетними м'язовими волокнами. [4] Іншими словами, деякі рецептори нейромедіаторів самі по собі є іонними каналами - іонотропні рецептори (зв'язування ліганда з рецептором регулює трансмембранну проникність за рахунок іонного каналу в складі рецептора).
• Рецептори, пов'язані з G-білком, - поліпептидні ланцюжки, розташовані в плазматичної мембрані клітини-мішені таким чином, що поліпептид пронизує мембрану сім раз, утворюючи при цьому по три назовні і досередини від мембрани петлі. Позаклітинний N-кінець поліпептида містить зв'язуючий ліганд ділянку, внутрішньоклітинний C-кінець розташований в цитозолі, а одна зі звернених всередину клітини петель пов'язує G-білок. [2]
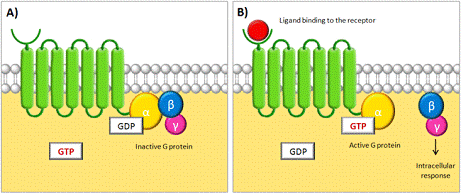
Рис. 2.5. Рецептор G-былка.
• Рецептори, що звільняють фактори транскрипції, - трансмембранні білки, вбудовані в плазмолему і в мембрани ЕПР. Після активації цього типу рецепторів протеолітичні ферменти відщіплюють від рецепторів звернений в цитозоль фрагмент, що надходить в ядро клітини і специфічно зв'язується з промоторними послідовностями ДНК, що запускає транскрипцію відповідного гена. Ці рецептори і звільнені ними фактори транскрипції регулюють процеси диференціювання (спеціалізації) клітин, внутрішньоклітинний вміст холестеролу, а також метаболізм амілоїду. [4]
Ядерні рецептори
Ядерні рецептори - білки-рецептори стероїдних гормонів (мінерало- і глюкокортикоїди, естрогени, прогестини, тестостерон), ретиноїдів, тиреоїдних гормонів, жовчних кислот, вітаміну D3. Кожен рецептор має область зв'язування ліганда і ділянку, що взаємодіє зі специфічними послідовностями ДНК. Іншими словами, ядерні рецептори - фактори транскрипції, що активуються лігандом. В геномі людини є більше 30 ядерних рецепторів, ліганди яких знаходяться в стадії ідентифікації (сирітські рецептори). [3]
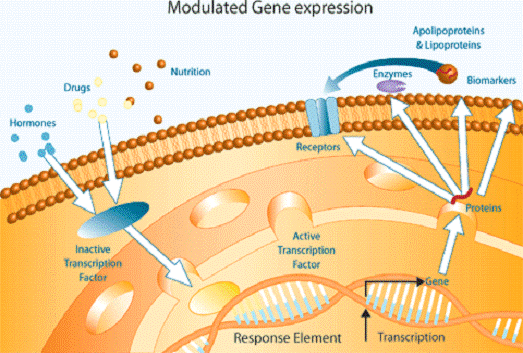
Рис. 2.7. Вплив біоактивних речовин
на експресію генів
2.3 Характеристика молекулярних рецепторів і різних трансмітерів
· Ацетилхолінові рецептори
Ацетилхолін як нейромедіатор периферичної та центральної нервової системи взаємодіє з двома видами холінорецепторів: мускариновими (m-холінорецепторами) метаботропними і нікотиновими (n-холінорецепторами) іонотропними. Ці підтипи рецепторів відрізняються по специфічності взаємодії з низкою агоністів і антагоністів ацетилхоліну. Так, м-ХР вибірково збуджуються мускарином, а н-ХР відповідають на вплив нікотину. Фізіологічно важливою відмінністю між м-ХР і н-ХР є швидкість відповіді на сигнал, що надходить. Вважають, що н-ХР забезпечують швидкі й нетривалі ефекти, тоді як м-ХР реагує більш повільно і тривало. [9]
o Нікотинові холінорецептори
Н-ХР виявилися більш вивченими біохімічно завдяки існуванню двох факторів: наявність специфічного нейротоксина, здатного блокувати функцію рецептора, і виявленню великої кількості цього рецептора в електричних органах риб. Н-ХР містить 5 субодиниць: дві а-субодиниці з М до 40 кД, одну р-субодиницю - М 49 кД, одну γ-субодиницю - 60 кД і одну 5-субодиницю - М 67 кД. Катіонні групи двох молекул ацетилхоліну зв'язуються з аніонними ділянками ct-субодиниць. Канал, що відкривається при контакті з АХ на кілька мілісекун, встигає пропустити до 5 іонів К + та Na +. АХ, що дисоціювали з рецептором, або "надлишковий" АХ в синаптичній щілині швидко розщеплюється ферментом ацетилхолінестеразою, розташованим на постсинаптичні мембрані в безпосередній близькості від рецептора. Ацетилхолінестераза є одним з найбільш швидкодіючих, високооборотних ферментів. Таким чином, сигнал обмежений у часі. Холін, що утворився, захоплюється білками-транспортерами пресинаптичної мембрани і служить далі для ресинтезу АХ в терміналі.
Активність рецептора може модулюватися з боку клітини фосфорилюванням окремих амінокислотних залишків ділянок, звернених всередину клітини. Рухливість рецептора обмежена зв'язком з цитоскелетними білками через білок 43К. [9]
Здатність різних сполук взаємодіяти з цими рецепторами має не тільки теоретичне, а й велике практичне значення. Оскільки порушення холінергічної медіації лежить в основі ряду патогенетичних механізмів захворювань нервової, ендокринної, імунної систем, то пошук лікарських речовин, що безпосередньо впливають на пострецепторні механізми, є перспективним. Як показала практика, багато використовувані в клініці н-холінергічні фармпрепарати мають точкою свого прикладання периферичні моторні синапси, ганглії і деякі хемочутливі структури вісцеральних систем. Часто в клініці застосовують блокатори н-ХР, серед яких виділяють гангліоблокатори і міорелаксанти. [6]
o Мускаринові рецептори ацетилхоліну
Ця категорія рецепторів ацетилхоліну відноситься до категорії метаботропних. Загальні їх характеристики вже описані. Пептидний ланцюг, що утворює основу м-ХР, складається з 800-950 амінокислотних залишків і пов'язаний з вуглеводними компонентами. Існує велике число підтипів м-ХР, пов'язаних з різними фізіологічними ефектами. [9]
Мускаринові рецептори АХ пов'язані з психоемоційним сприйняттям, секрецією слинних і шлункових залоз, функцією серцево-судинної системи тощо. Антагоністи м-ХР застосовуються в клініці в якості виразкозагоюючих, спазмолітичних препаратів, а також використовуються для симптоматичного лікування паркінсонізму. В якості заспокійливих засобів, транквілізаторів, знаходять застосування в терапії амізил і метамізіл - центральні блокатори м-ХР. [6]
· ГАМК-рецептори
Успіхи в ідентифікації різних типів ГАМК-рецепторів, їх біологічних і фармакологічних характеристик тісно пов'язані зі створенням специфічних аго-ністів і антагоністів. За локалізацією ГАМК-рецептори поділяються на центральні і периферичні, пре- і постсинаптичні. Розрізняють два типи рецепторів ГАМК: бікукулін-чутливі і баклофен-чутливі. Найбільш вивченим є перший тип рецепторів, який чутливий також до антагоніста пікротоксиніну. Виявлено, що цей тип рецепторів є швидкодіючим і пов'язаний з іонними каналами. Інший тип ГАМК-рецепторів відноситься до повільнодіючих рецепторам, і вважають, що він через G-білок асоційований з каналами для іонів К + та Са +. Дослідження фізико-хімічних властивостей очищеного ГАМКд-білка показали, що він представляє собою пентамер глікопротеїдної природи, який утворює канали для іонів хлору.
Особливістю ГАМКА-рецепторів є те, що вони містять специфічні ділянки зв'язування не тільки самої ГАМК, а й інших фізіологічно активних сполук. Найбільш цікавими і вивченими серед них є лікарські сполуки, об'єднані під назвою бензодіазепіни, а також ендогенні регулятори пептидної природи - ендозепіни. [9]
Важливою особливістю функціонування ГАМК-ергічної трансмісії є система видалення надлишкового ліганда з синаптичної щілини. На відміну від багатьох інших синаптичних систем ГАМК переважно зазнає зворотного захоплення і повертається в нервові закінчення за допомогою білків-транспортерів.
Місця специфічного зв'язування бензодіазепінів знаходяться на молекулах білка, що входить в структуру рецептора ГАМК. Активація ГАМК-рецепторів призводить до відкриття іонного каналу для хлору, а бензодіазепіни при цьому подовжують тривалість існування відкритих іонних каналів, не впливаючи на їх число і швидкість транспорту хлору.
Ділянка зв'язування бензодіазепінів взаємодіє також з ендогенними пептидними регуляторами. Останні володіють фізіологічними ефектами, протилежними бензодіазепінам - викликаютю збудження, тривожність і проконфліктну поведінку тварин. Таким чином, бензодіазепіни екзогенними антагоністами ендогенних антагоністів ГАМК. [9]
· Гліцинові рецептори
Найбільша щільність гліцинових рецепторів виявлена в області ядер під'язичного і трійчастого нервів, локалізованих в довгастому мозку. Ділянки зв'язування стрихніну знайдені також в ретикулярних ядрах довгастого мозку, моста і середнього мозку, сірії речовині спинного мозку як в передніх, так і в задніх рогах.