Материал: Ekzamen_po_fiziologii_2020
Электрографические признаки. На экране осциллографа на большой развертке биоток имеет вид многокомпонентного графика, в котором выделяют:
-изоэлектрическую линию (изолиния);
-предспайк;
-спайк (восходящая и нисходящая части, или передний и задний фронты); -отрицательный и положительный следовые потенциалы.
Электрохимические признаки. На протяжении одиночного цикла возбуждения мембрана последовательно меняет свое электрохимическое состояние. Длительность его колеблется в различных клетках от 1—2 до нескольких десятков мс.
Выделяют:
а) статическую поляризацию – предшествующее собственно возбуждению состояния покоя; б) деполяризацию;
в) реполяризацию;
г) гипероляризацию.
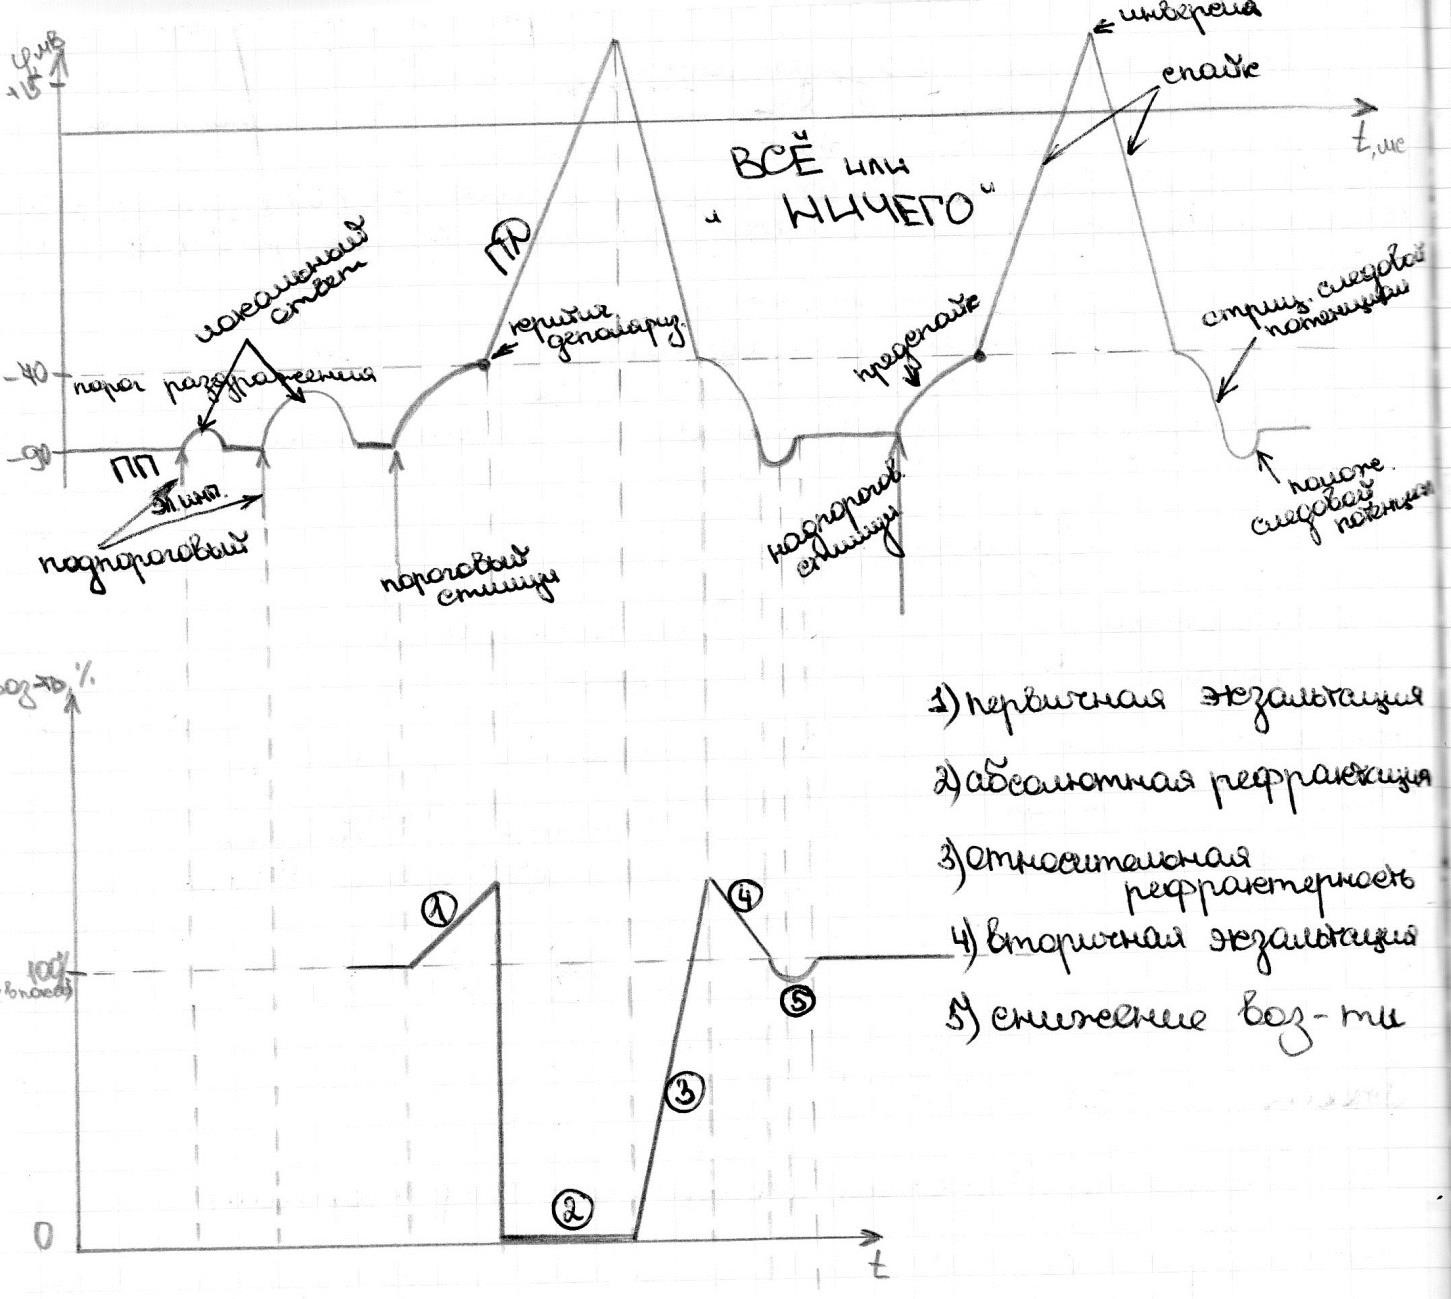
Степени возбудимости в разные фазы потенциала действия. Если принять уровень возбудимости в условиях физиологического покоя за норму, то в ходе развития одиночного цикла возбуждения можно наблюдать ее циклические колебания. Периоду статической поляризации соответствует исходная, фоновая возбудимость. В период развития начальной деполяризации на очень короткое время возбудимость незначительно повышается по сравнению с исходной (фаза экзальтации). Во время развития полной деполяризации и инверсии заряда возбудимость падает до нуля. Время, в течение которого отсутствует возбудимость, называется периодом абсолютной рефрактерности: ни один, даже очень сильный раздражитель не может дополнительно вызвать возбуждение ткани. В фазе восстановления мембранного потенциала, т.е. с началом быстрой реполяризации, возбудимость начинает восстанавливаться, но она еще ниже исходного уровня. Время восстановления ее от нуля до исходной величины называется периодом относительной рефрактерности: ткань может ответить возбуждением, но только на сильные, надпороговые раздражения. Вслед за периодом относительной рефрактерности, т.е. с началом фазы медленной реполяризации, наступает короткий период супернормальной— повышенной (по сравнению с исходной) возбудимости.
Заключительный этап одиночного цикла возбуждения — повторное снижение возбудимости ниже исходного уровня (но не до нуля), называемое периодом субнормальной возбудимости, совпадает с развитием гиперполяризации мембраны.
После завершения указанных процессов возбудимость восстанавливается, и клетка готова к осуществлению следующего цикла.
В потенциале действия различают следующие фазы:
Предспайк – процесс медленной деполяризации мембраны до критического уровня деполяризации (местное возбуждение, локальный ответ).
Пиковый потенциал или спайк, состоящий из восходящей части (деполяризация мембраны) и нисходящей части (реполяризация мембраны).
Отрицательный следовой потенциал – от критического уровня деполяризации до исходного уровня поляризации мембраны (следовая деполяризация).
Положительный следовой потенциал – увеличение мембранного потенциала и постепенное возвращение его к исходной величине (следовая гиперполяризация).
Ионные механизмы возбуждения.
Изменение знака заряда на клеточной мембране при возбуждении состоит из деполяризации, инверсии, реполяризации и гиперполяризации. Деполяризация и инверсия связаны с вхождением ионов Nа+ в клетку. Реполяризация связана с выходом ионов К+, гиперполяризация – с выходом ионов К+ и входом ионов Сl+.
Ионные каналы клеточной мембраны образованы мембранными белками. Каждый канал имеет форму трубочки в молекуле белка. Отверстие канала перекрыто выростами этого белка, называемыми воротами канала. Натриевый канал имеет m- и h-ворота. В состоянии покоя m- ворота закрыты и ионы Nа+ не проникают в канал. При этом h-ворота открыты. Ворота калиевых каналов также закрыты. При этом калий выходит из клетки только через другие каналы утечки.
Раздражение возбудимой клетки изменяет форму белка натриевых каналов, и m-ворота открываются сначала частично, а за тем полностью. Ионы Na+ входят в клетку пассивно за счет разности их концентрации. Входящие в клетку ионы Na+ действуют на электрочувствительную область ворот h и они закрываются. Одновременно положительный заряд на внутренней поверхности мембраны вызывает открытие ворот электрозависимых каналов для ионов К+. Ионы К+ выходят пассивно из клетки, вызывая реполяризацию мембраны. МП возвращается к уровню ПП. Последующее перераспределение ионов Na+, К+-АТФ-азой приводит к закрытию m-ворот и открытию h-ворот в натриевых каналах и закрытию ворот в калиевых каналах.
Дайте сравнительную характеристику понятий «возбуждение» и «возбудимость». Проанализируйте закономерности изменение возбудимости при возбуждении. Дайте оценку роли рефрактерности и экзальтации в функциях возбудимых тканей
Возбуждение – процесс, характеризующийся изменением заряда клеточных мембран при действии определенной силы раздражения.
Возбудимость – свойство возбудимой ткани возбуждаться при действии раздражения.
Характеризуют величиной порога раздражения, продолжительностью латентного периода раздражения, хронаксией (время, в течение которого ток, равный удвоенной реобазе, вызывает возбуждение ткани), функциональной лабильностью и скоростью аккомадации Основная мера – порог раздражения
Изменение возбудимости при возбуждении. При предспайке разница между уровнем заряда мембраны и уровнем критической деполяризации мембраны уменьшается, порог раздражения уменьшается и возбуждение можно вызвать дополнительным подпороговым раздражением. При этом возбудимость тканей становится супернормальной. При спайке потенциала действия возникает абсолютный рефрактерный период и возбуждение нельзя вызвать дополнительным раздражением любой величины. При этом открыты все натриевые каналы и порог раздражения возрастает до бесконечности. При реполяризации натриевые каналы постепенно закрываются и уровень критической деполяризации возвращается из бесконечности к уровню состояния покоя. Наступает относительный рефрактерный период, при котором возбуждение можно вызвать надпороговым раздражением. При отрицательном следовом потенциале разница между уровнем заряда мембраны и уровнем критической деполяризации мембраны меньше, чем в состоянии покоя. Это дает возможность вызвать повторное возбуждение подпороговым раздражением. Возбудимость вновь повышается и этот период называется экзальтацией. При положительном следовом потенциале разница между уровнем заряда мембраны и уровнем критической деполяризации мембраны увеличивается, порог раздражения увеличивается и возбудимость становится субнормальной.
Роль фазы экзальтации заключается в готовности ткани к ответу на повторное раздражение
Объясните механизм мышечного сокращения. Опишите разные виды мышечных сокращений. Проанализируйте условия возникновения оптимума и пессимума.
Механизм мышечного сокращения скелетных мышц по теории скользящих нитей:
ПД приходит по волокну мотонейронов
Открываются кальциевые каналы Т-трубочек
Открываются кальциевые каналы L-трубочек, и кальций выходит в цитоплазму
Кальций связывается с тропонином С тропонинотропомиозинового комплекса
Нить тропомиозинового комплекса отодвигается и освобождает активный центр
Головка миозина хватает активный центр актина и делает гребковое движение. Z-диски приближаются друг к другу. Таким образом, происходит укорочение саркомеров
Для расслабления мышцы молекула АТФ связывается с головкой миозина. Он отпускает актин, и нити расходятся
Различают два основных вида мышечных сокращений:
-одиночные
-тетанические (возникают при ритмическом раздражении)
Одиночное сокращение возникает при действии на мышцу порогового раздражения. Реакция мышцы (генерация ПД и сокращение) начинается не сразу, а через 2–2,5 мс –
латентный период (время от нанесения раздражения до начала генерации ПД). ПД скелетной мышцы длится 3–5 мс, и на фоне его развития начинается мышечное сокращение. Одиночный двигательный акт (одиночное сокращение) состоит из
фазы сокращения (укорочения), которая продолжается около 50 мс, и
фазы расслабления, которая длится более 50 мс. Возбудимость мышцы во время одиночного сокращения изменяется. В начале сокращения (во время развития ПД) возникает фаза абсолютной рефрактерности (длительность 3–5 мс), затем фаза относительной рефрактерности, а после нее фаза повышенной возбудимости.
Тетанус – длительное сокращение (напряжение) мышцы, возникающее в ответ на ритмическое раздражение двигательного нерва или мышцы. При этом происходит слияние (суммация) и наложение (суперпозиция) одиночных сокращений (напряжений). Если каждый последующий импульс возбуждения поступает к мышце в тот период, когда она находится в фазе укорочения, то возникает гладкий тетанус, а если в фазу расслабления – зубчатый тетанус.
Оптимум – частота раздражения, когда каждое последующее раздражение осуществляется в фазу повышенной возбудимости, в результате возникает гладкий тетанус максимальной амплитуды.
Пессимум – частота раздражения, когда каждое последующее раздражение осуществляется в фазу пониженной возбудимости, в результате возникает тетанус с минимальной амплитудой.
Охарактеризуйте свойства гладких мышц по сравнению со свойствами скелетных мышц. Оцените значение этих свойств в моторных функциях внутренних органов и скелетной мускулатуры.
Свойства скелетных мышц:
Структурно-функциональная единица – мышечное волокно, которое представляет собой симпласт.
Выше скорость распространения возбуждения и скорость сокращения
Адекватным раздражителем является нервный импульс
Быстро утомляется
Рецепторы на мембране волокон, раздражение которых происходит посредством выделяющихся в синапсах медиаторов
Источник кальция – внутриклеточные депо в L-трубочках
Са2+ -связывающий белок – тропонин
Длинные цилиндрические клетки, многоядерные, поперечно исчерченные
Сокращаются произвольно.
Неспособны к автоматии.
Способны к суммации
При увеличении частоты раздражения возникает слитное или тетаническое сокращение мышцы
(зубчатый тетанус → гладкий тетанус → оптимум → пессимум)
Не подчиняются закону «все или ничего» (чем больше сила воздействия, тем большее кол-во волокон вступает в сокращение).
Эластична – способность сохранять первоначальное состояние. 14. Короткий рефрактерный период
15. Высокий ПД.
Свойства гладких мышц: СФЕ – клетка миоцит
Режим сокращения тонический (длительный). Сокращаются медленно Обладает высокой пластичностью
Адекватным раздражителем является растяжение(мочевой пузырь)
Обладает автоматией – способность возбуждаться без внешних воздействий
Имеет запирательную функцию (может долго находится в сокращенном состоянии и не утомляться, нр, сфинктер)
Обладает высокой чувствительностью к химическим веществам (большое количество внесинаптических рецепторов)
Источник кальция – внеклеточный
Са2+ -связывающий белок – кальмодулин
Веретенообразные клетки, одноядерные, не исчерчены, миозиновые и актиновые волокна расположены нерегулярно.
Отдельные волокна подчиняются закону «все или ничего».
Способны к тетанусу.
Пластична.
Длинный рефрактерный период.
Низкий ПД.
В гладкой мускулатуре имеются водители ритма, которые периодически формируют микропотенциалы (Пейсмекерные). Они деполяризуют гладкомышечные клетки и обуславливают автоматизм их сокращения.
Возбуждение между мышечными клетками распространяется с помощью нексусов
Опишите механизмы проведения возбуждения по нервным волокнам. Проанализируйте законы проведения возбуждения в нервах
Проведение возбуждения по нервным волокнам.
Механизм проведения возбуждения по нервным волокнам зависит от их типа. Существуют два типа нервных волокон: миелиновые и безмиелиновые.
Скорость проведения возбуждения в нервных волокнах зависит от наличия или отсутствия миелина и от диаметра нервного волокна. Миелиновые волокна проводят возбуждение быстрее, чем безмиелиновые, и толстые – быстрее, чем тонкие
Безмиелиновые волокна на всем протяжении имеют одинаковую электропроводность и сопротивление. Волна деполяризации идет последовательно, не имея возможности миновать ни один из невозбужденных участков волокна.
Миелиновые волокна имеют изолирующий слой, резко уменьшающий емкость мембраны нервного волокна и практически полностью предотвращающий утечку тока из него. Перехваты Ранвье, лишенные миелина, в отличие от миелиновых участков, имеют очень низкое сопротивление и поэтому являются центрами электрической активности. Практически все натриевые каналы сосредоточены в области перехватов — до нескольких тысяч на 1 мкм2, тогда как в миелиновых участках их вообще нет.
Так как волокно находится в токопроводящей среде, генерируемый в одном перехвате потенциал действия путем пассивного проведения «перескакивает» через миелинизированный участок к соседнему невозбужденному перехвату. В результате этого в нем появляется регенераторный потенциал действия, т.е. процесс деполяризации быстро распространяется. Такой механизм проведения возбуждения называется сальтаторный.
-A (альфа) – волокна – 100 м/с (афферентные соматические нервы)
-A (бета) – волокна – 60 м/с (механо-рецепторы кожных покровов)
-A (гамма) – волокна – 20 м/с (припроиорецепторы мышц)
-A (дельта) – волокна – 5 м/с (термо- и болевые рецепторы)
-В-волокна – 10 м/с (преганглионарные волокна ЦНС)
-С-волокна, тонкие безмиелиновые, низкоскоростные (постганглионарные волокна ВНС) – 1 м/с Законы проведения возбуждения по нервным стволам.
-Закон морфологической и функциональной непрерывности — возбуждение может распространяться по нерву только при сохранении его морфологической и функциональной целостности. Травматическое повреждение нерва нарушают или полностью прекращают проведение возбуждения.
-Закон изолированного проведения возбуждения в нервах — нервные волокна, входящие в нерв, изолированы друг от друга за счет миелиновых и соединительнотканных оболочек, и возбуждение не распространяется между нервными волокнами располагающимися рядом
-Закон двустороннего проведения возбуждения в нервах — при нанесении раздражения возбуждение в нерве распространяется в обе стороны
-Закон относительной неутомляемости нервов – способность нервов длительное время проводить возбуждение при их ритмическом раздражении.
Рассмотрите механизмы проведения возбуждения в синапсах. Опишите особенности функционирования возбуждающих и тормозных синапсов. Объясните свойства синапсов.
Синапс — это контакты между клетками, в которых возбуждение проводится с помощью химических веществ, называемых медиаторами. С помощью синапсов осуществляется взаимодействие разнородных по функциям тканей организма, например, нервной и мышечной, нервной и секреторной.
Структура синапса.
Пресинаптическое окончание аксона нейрона при подходе к иннервируемой клетке теряет миелиновую оболочку, что несколько снижает скорость распространения волны возбуждения. Небольшое утолщение на конце волокна, называемое синаптической бляшкой, содержит синаптические пузырьки размером 20—60 нм с медиатором — веществом, способствующим передаче возбуждения в синапсе.
Синаптическая щель — пространство между пресинаптическим окончанием и участком мембраны эффекторной клетки является непосредственным продолжением межклеточного пространства.
Постсинаптическая мембрана — участок эффекторной клетки, контактирующий с пресинаптической мембраной через синаптическую щель.