Материал: Ekzamen_po_fiziologii_2020
Бета 13-30 Гц, амплитуда 14-40 мкВ, эмоциональное возбуждение, умственная и физическая деятельность, при нанесении раздражения.
Альфа 8-13 Гц, амплитуда до 100 мкВ состояние умственного и физического покоя, с закрытыми глазами.
Тета 4-8 Гц, амплитуда от 40 до 300 мкВ, промежуточная фаза сна, эмоциональное напряжение.
Дельта 1 – 4 Гц, амплитуда до 300 мкВ, глубокий сон, наркоз, гипоксия.
Основным и наиболее характерным ритмом является альфа-ритм. В состоянии относительного покоя альфаритм наиболее выражен в затылочных, затылочно-височных и затылочно-теменных областях головного мозга. При кратковременном действии раздражителей, например света или звука, появляется бета-ритм. Бета- и гамма-ритмы отражают активированное состояние структур головного мозга, тета-ритм чаще связан с эмоциональным состоянием организма. Дельта-ритм указывает на снижение функционального уровня коры большого мозга, связанное, например, с состоянием легкого сна или утомлением. Локальное появление дельта-ритма в какой-либо области коры мозга указывает на наличие в ней патологического очага.
Исследование импульсной активности нейронов с помощью микроэлектродной техники.
Электроды для регистрации клеточной активности часто изготавливаются из металла . В ходе операции под наркозом электроды вживляются в исследуемые структуры мозга и фиксируются к черепу животного. При регистрации импульсной активности животное осуществляет целенаправленное поведение . Анализ активности нервных клеток позволяет выявить особенности импульсации, характерной для того или иного поведения или состояния животного.
Исследование импульсной активности нейронов при микроионофорезе к нейронам биологически активных веществ.
Микроионофорез БАВ используется для изучения химической чувствительности мембран нервных клеток головного мозга. Регистрация осуществляется через центральный канал многоствольного стеклянного микроэлектрода. Биологически активные вещества в заряженном состоянии выводятся из боковых каналов электродов положительным или отрицательным током. Животное при этом может находится в свободном состоянии и осуществлять целенаправленное поведение.
Объясните характер взаимодействия нейронов сегментов спинного мозга и проприорецепторов опорнодвигательного аппарата в механизмах поддержания мышечного тонуса
Интегративная деятельность спинного мозга связана со структурной организацией его сегментов. Каждый сегмент спинного мозга получает афферентную импульсацию через задние (чувствительные) корешки и посылает возбуждение к эффекторам через передние (двигательные) корешки. Таким образом, уже в пределах каждого сегмента спинного мозга возможна интеграция простейших двигательных реакций. Миотатический рефлекс — одна из простых реакций на растяжение мышцы, осуществляемая на уровне спинного мозга по самому короткому пути — от проприорецепторов до мотонейронов и далее к двигательным мышечным волокнам.
Реакция растяжения является основой регуляции длины мышцы, изменение которой возникает при поднятии груза или при сокращении мышцы-антагониста.
Скелетные мышцы всегда находятся в состоянии некоторого напряжения. Постоянное незначительное напряжение мышц, не сопровождающееся признаками утомления, называется мышечным тонусом. Односторонняя перерезка у спинальной лягушки, подвешенной на крючке штатива, чувствительных (задних) корешков спинного мозга, в которых проходят афферентные нервные волокна, иннервирующие соответствующую заднюю лапку, приводит к исчезновению мышечного тонуса этой лапки и она распрямляется. К аналогичному эффекту приводит перерезка передних (двигательных) корешков или разрушение спинного мозга. Эти опыты свидетельствуют о том, что при разрушении основных звеньев рефлекторного кольца (афферентных и эфферентных путей, нервных центров) мышечный тонус исчезает. Следовательно, мышечный тонус имеет рефлекторную природу.
Источником возбуждений, поддерживающих мышечный тонус, являются проприорецепторы. В скелетных мышцах имеются три вида проприорецепторов:
мышечные веретена, расположенные среди мышечных волокон;
сухожильные рецепторы Гольджи, расположенные в сухожилиях;
суставные рецепторы -- пачиниевы тельца, расположенные в фасциях, сухожилиях, связках.
О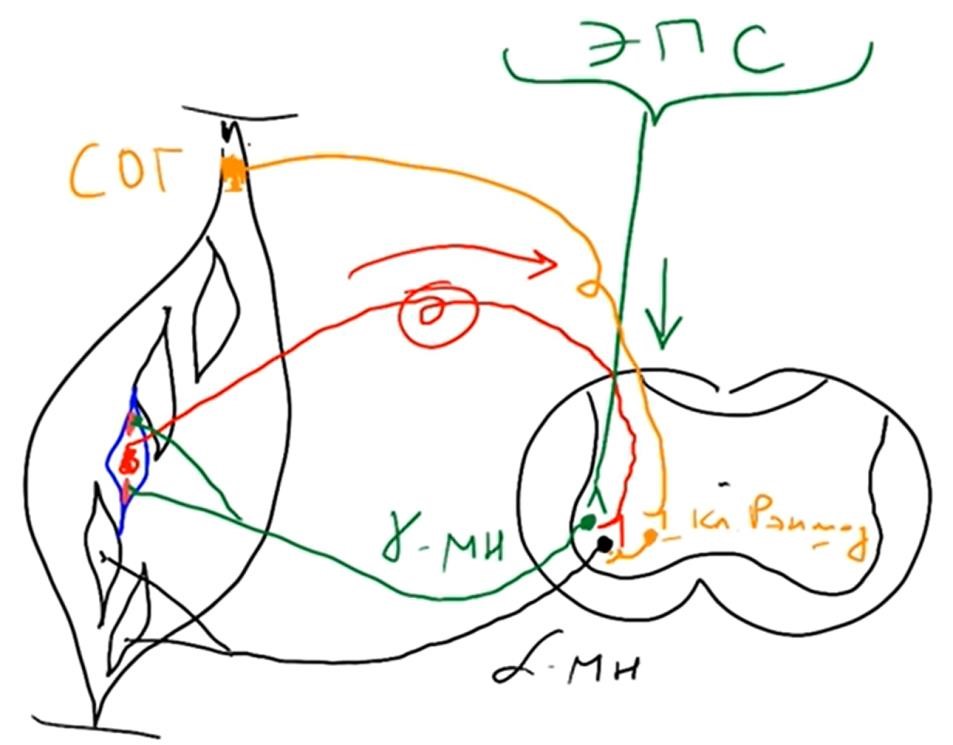 собое
значение в регуляции мышечного тонуса
имеют мышечные веретена
и сухожильные рецепторы
Гольджи.
Мышечные веретена представляют собой небольшие продолговатые образования, напоминающие своим внешним видом прядильные капсулы. Внутри мышечного веретена находится пучок мышечных волокон, которые называются интрафузальными, т. к. они расположены внутри веретена в отличие от обычных мышечных волокон, которые называются экстрафузальными. Каждое интрафузальное волокно состоит из трех частей:
его центральная часть называется ядерной сумкой, в которой находятся ядра мышечной клетки;
два периферических участка, которые имеют поперечную исчерченность и обладают способностью сокращаться;
миотрубки, расположенные между ядерной сумкой и периферическими участками.
Ядерную сумку в виде спирали окружают нервные волокна чувствительного нейрона-первичные рецепторные окончания. В области миотрубок нервные окончания афферентных нейронов гроздевидно ветвятся, образуя вторичные рецепторные окончания.
В мышце мышечное веретено одним концом прикрепляется к экстрафузальному мышечному волокну, а другим - к сухожилию этого волокна. Таким образом, мышечное веретено расположено в мышце параллельно экстрафузальным мышечным волокнам.
При снижении тонуса экстрафузального волокна увеличивается его длина, что приводит к растяжению и раздражению первичных и вторичных рецепторных окончаний, для которых растяжение является адекватным раздражителем.
Возбуждение от рецепторных окончаний по афферентным волокнам поступает в спинной мозг к мотонейронам, расположенным в передних рогах. Мотонейроны спинного мозга принято подразделять на альфа- и гамма-мотонейроны (так как их аксоны относятся к А-альфа и А-гамма нервным волокнам). Возбуждение от альфа-мотонейронов поступает к экстрафузальным мышечным волокнам, вызывая их сокращение - тонус восстанавливается. Избыточное сокращение экстрафузальных мышечных волокон приводит к растяжению сухожильных рецепторов Гольджи, так как они прикрепляются к мышце последовательно. В них возникает возбуждение, которое поступает по чувствительному нейрону к тормозным вставочным нейронам спинного мозга (клеткам Рэншоу, в аксоне которых происходит выделение тормозного медиатора – глицина), далее от них к альфа-мотонейронам. Активность альфа-мотонейронов при этом снижается, уменьшается импульсация, идущая от них к экстрафузальным мышечным волокнам, тонус несколько снижается.
Рассмотренные выше механизмы поддержания мышечного тонуса осуществляются на уровне спинного мозга, поэтому такой тонус называется спинальным или простейшим. Спинальный тонус характеризуется очень слабой выраженностью тонического напряжения. Такой тонус не может обеспечить поддержание позы животного и акт ходьбы, но он достаточен для осуществления простейших спинальных рефлексов.
Большое значение в регуляции мышечного тонуса имеют базальные ядра - бледный шар и полосатое тело, которые образуют стриопаллидарную систему. Эти структуры регулируют активность всех нижележащих отделов ЦНС, участвующих в регуляции мышечного тонуса, обеспечивая адекватное перераспределение тонуса мышц при различных видах деятельности. При поражении экстрапирамидной системы (которая передает информацию в задние рога спинного мозга и регулирует по гамма-мотонейронам сокращение интрафузальных мышечных волокон) , составной частью которой являются базальные ядра, возникают нарушения регуляций тонуса мускулатуры, что приводит к развитию так называемых дрожательных параличей.
Главную роль в приспособительной регуляции мышечного тонуса выполняет кора головного мозга. С ее участием и участием других структур, регулирующих мышечный тонус, формируется нормальный или корковый тонус.
Регуляция тонуса скелетной мускулатуры осуществляется экстрапирамидной системой головного мозга, которая включает в себя красное ядро, базальные ганглии, черную субстанцию, ретикулярную формацию, ядра ретикулярного комплекс, мозжечок и некоторые области коры. Быстрые (фазные) движения обеспечиваются активностью пирамидной системы.
Центры, управляющие мышечным тонусом:
продолговатый мозг. Вестибулярное ядро Дейтерса (центр разгибателей), ретикулоспинальный латеральный тракт, начало вестибулоспинального тракта
мост. Ретикулоспинальный медиальный тракт
средний мозг. Красные ядра и черная субстанция (центр сгибателей)
Если перерезать НС ниже продолговатого мозга, то развивается атония, отсутствие нервных рефлексов; а если перерезать между продолговатым и средним мозгом, то происходит гипертонус разгибателей – децеребрационная ригидность (собака прогнута в спине, выпрямлены конечности).
Объясните характер взаимосодействия различных отделов цнс в процессах формирования позы
В стволе мозга (продолговатый, мост, средний) заложены цельные движения (в отличие от спинальных элементов движений) - стереотипные, врожденные, позные.
Позные рефлексы направлены на 1. перемену и сохранение позы, 2. восстановление естественной позы при ее нарушении, 3. удержание позы при внезапных воздействиях, например, резком ускорении.
Классификация позных рефлексов:
Статические рефлексы: 1. позно-тонические - перемена и сохранение позы (наклон головы вправо приводит к повышению тонуса разгибателей правых конечностей), 2. выпрямительные - восстановление позы (переворот на конечности из положения лежа на спине).
Статокинетические - удержание позы и равновесия при внезапных воздействиях (лифтный рефлекс - увеличение тонуса разгибателей при движении вверх, перераспределение мышечного тонуса при резком ускорении, например, в вагоне метро).
Основные рефлексогенные зоны, с которых вызываются эти рефлексы - вестибулярный аппарат и проприорецепторы шеи, поэтому особо выделяют лабиринтные и шейные рефлексы. Однако они могут вызываться и с проприорецепторов туловища и конечностей, кожных рецепторов и т.д.
Через спинной мозг или черепные нервы ствол мозга получает всю чувствительность, кроме обонятельной. Непосредственно (через черепные нервы) или через спинной мозг ствол мозга управляет всеми структурами организма.
Ядра ретикулярной формации и ретикулоспинальный путь: сохранение вертикального положения; вестибулярное ядро Дейтериса (разгибатели и вестибулоспинальный путь (вест. аппарат, проприорецепторы мм. шеи) - система равновесия; красное ядро и руброспинальный путь - система стереотипных движений, четверохолмие и тектоспинальный путь - система настораживания.
Основные входы ствола мозга: от коры (префронтальная извилина - моторная зона) - запускает стволовые движения, от мозжечка - корректирует стволовые движения.
Объясните характер взаимосодействия различных отделов цнс при выполнении произвольного движения.
Произвольные движения обеспечиваются высшим корковым уровнем в пятом слое коры гигантские пирамидные клетки Беца (пирамидные пути). Начинается пирамидный путь (кортикоспинальный) в прецентральной извилине головного мозга.
Отделы коры головного мозга: 1. моторная зона (прецентральная извилина) - управляет отдельными группами мышц, непосредственно или через стволовые ядра (каждому отделу моторной коры соотв. своя группа мышц), 2. премоторная зона и дополнительная моторная зона (хранят программы наиболее частых автоматизированных приобретенных движений - мимики, речи, письма, бытовых навыков..), 3. префронтальная кора (замысел и планирование цельных поведенческих актов).
После планирования двигательного акта сигналы идут к стволовым ядрам (особенно красному ядру, если движения стереотипные врожденные), или к вторичным двигательным зонам (например, произнесение слова), а далее к соотв. зонам моторной зоны.
Красное ядро и руброспинальный путь - система стереотипных движений, четверохолмие и тектоспинальный путь - система настораживания.
Основные входы ствола мозга: от коры (префронтальная извилина - моторная зона) - запускает стволовые движения, от мозжечка - корректирует стволовые движения.
Объясните явление функциональной асимметрии мозга человека и оцените ее значение при формировании поведения
Первичные моторные, соматосенсорные и зрительные зоны обслуживают только одну противоположенную зону тела, тогда как сложные поведенческие акты требуют участия всего организма в целом. Т.е., хотя вторичные (первичная зона - всегда получение инфы, вторичная зона - обработка) и ассоциативные (объединение нескольких типов информации и зон мозга) зоны имеются в каждом полушарии, одна половина подчиняет другую в отдельный момент времени.
У большинства ведущее полушарие - левое, т.к. деятельность в основном связана с обработкой вербальных функций, в т.ч. абстрактно-логического мышления. В соотв. зонах правого полушария развиваются функции, отсутствующие в левом: интерпретация мимики, жестов и интонаций, восприятие образов и музыки. Оба полушария постоянно обмениваются информацией, а ведущую роль попеременно берет то одно, то другое.
Модель лево- и правополушарной деятельности
-
ЛП
ПП
Логическое
Аналоговое
Линейное
Хаотическое
Временное
Ориентированное
Основано реальности
на
Основано на фантазии
Вербальное
Интуитивное
Дискретное
Невременное
Последовательное
Невербальное
Сравнительная характеристика полушарного доминирования
-
ЛП
ПП
Видит знаки (буквы, символы)
Видит конкретные объекты
Необходимы конкретные письменные инструкции
Отвлекаемость, высокая способность к саморазвлечению
Повторяет фактическую информацию
Отвечает на личностные отношения, а не на авторитарные
Испытывает дискомфорт при получении незавершенных творческих инструкций
Любит разрешение на самостоятельный выбор, включающий креативность
Любит проверять работу. Полагается использует инструкцию
и
Контроль неприятен
Любит информацию в письменной форме
Любит информацию в виде демонстраций, графиков, карт
Анализ от части к целому
Анализ от целого к части
Переживает жизнь после чтения
Переживает реальность до чтения
Любит смотреть фильм после чтения
Любит смотреть фильм до чтения