Материал: Ekzamen_po_fiziologii_2020
*При глубоком форсированном дыхании участвуют доп м-ы вдоха :трапециевидные,передн лестничные т грудино-ключично-сосцевидные м-ы.
3)диафрагма опускается→↑вертикального размера и объема грудн полости
4)Расширение легких(за счет отриц давления в плевральной полости)
5)Р в легких становиться ниже Ратм (Р ↓ в легких) 6)поступление воздуха по воздухоносным путям в легкие Механизм выдоха.
1)раздражение механорец альвеол(рецепторы растяжения легких) →импульсы по афферентным волокнам блуждающего нерва поступают в дыхательный центр→→тормозится активность инспираторных нейронов продолговатого мозга→прекращается вдох,начинается выдох,при кот рецепторы растяжения не активны 2)При пассивном выдохе:расслабление инспираторных м-ц
При активном выдохе(рвоте,кашле):сокращение экспираторных м-ц(внутр межреберные,м-ы брюшной стенки)
3)диафрагма↑ →V грудной клетки ↓
4)сжатие легких (за счет обратной тяги легких)
5)Р воздуха в легких становиться выше Ратм (Р ↑ в легких)
6)воздух по воздухоносным путям устраняется наружу
Плевральная полость
Внутри грудное пространство , в котором находятся легкие , герметично замкнуто и с внешней средой не сообщается.Лекгме окружены листками плевры : париетальный листок плотно спаян со стенками грудной клетки ,диафрагмы, а висцеральный – с наружной поверхностью ткани легкого.Листки плевры увлажнены небольшим кол-ов серозной жидкости , играющей роль своеобразной смазки , облегчающей трение- скольжение листков при дыхательных движениях.
Внутриплевральное давление , или давление в герметично замкнутой плевральной полости между висцеральными и париетальными листками плевры , в норме явл-ся отрицательным относительно атмосферного.
Внутриплевральное давление обусловлено эластической тягой легких или стремлением легких ↓ свой объем. При обычном спокойном дыхании внутриплевральное давление ниже атмосферного : в инспирацию-на 6-8 мм.рт.ст. , а в экспирацию- на 4-5 мм.рт.ст. Внутриплевральное давление в апикальных частях легких ниже , чем в прилегающих к диафрагме базальных отделах легких.
Пневмоторакс-поступление воздуха в межплевральное пространство , возникающее при проникающих ранениях грудной клетки ,нарушающих герметичность плевральной полости. При этом легкие сжимаются под давлением вошедшего воздуха вследствие эластичности ткани легких, поверхностного натяжения альвеол. В результате во время дыхательных движений легкие не способны следовать за грудной клеткой, при этом газообмен в них уменьшается или полностью прекращается.
При одностороннем пневмотораксе дыхание только одним легким на неповрежденной стороне может обеспечить дыхательную потребность при отсутствии физической нагрузки. Двусторонний пневмоторакс делает невозможным естественное дыхание, в этом случае единственным способом сохранения жизни является искусственное дыхание.
Объясните механизм газообмена между альвеолярным воздухом и кровью капилляров малого круга кровообращения при нормальном и пониженном атмосферном давлении
Важнейшая функция легких — обеспечение газообмена между воздухом легочных альвеол и кровью капилляров малого круга. Для понимания механизмов газообмена необходимо знать газовый состав обменивающихся между собой сред, свойства альвеолокапиллярных структур, через которые идет газообмен, и учитывать особенности легочного кровотока и вентиляции.
Состав альвеолярного и выдыхаемого воздуха
Состав атмосферного, альвеолярного (содержащегося в легочных альвеолах) и выдыхаемого воздуха представлен в табл. 1.
Таблица 1. Содержание основных газов в атмосферном, альвеолярном и выдыхаемом воздухе
-
Состав воздуха, %
О2
СО2,
N2
Н20. пары
Атмосферный
20,93
0,03
78,5
0,5
Альвеолярный
14-15
5-6,5
74,5
5,6
Выдыхаемый
16-17
4-5
74,7
5,5
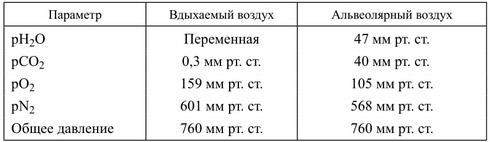
На основе определения процентного содержания газов в альвеолярном воздухе рассчитывают их парциальное давление. При расчетах давление водяного пара в альвеолярном газе принимают равным 47 мм рт. ст. Например, если содержание кислорода в альвеолярном газе равно 14,4%, а атмосферное давление 740 мм рт. ст., то парциальное давление кислорода (р02) составит: р02 = [(740-47)/100] • 14,4 = 99,8 мм рт. ст. В условиях покоя парциальное давление кислорода в альвеолярном газе колеблется около 100 мм рт. ст., а парциальное давление углекислого газа около 40 мм рт. ст.
Несмотря на чередование вдоха и выдоха при спокойном дыхании состав альвеолярного газа изменяется лишь на 0,2- 0,4%, поддерживается относительное постоянство состава альвеолярного воздуха и газообмен между ним и кровью идет непрерывно. Постоянство состава альвеолярного воздуха поддерживается благодаря малой величине коэффициента вентиляции легких (КВЛ). Этот коэффициент показывает, какая часть функциональной остаточной емкости обменивается на атмосферный воздух за 1 дыхательный цикл. В норме КВЛ равен 0,13-0,17 (т.е. при спокойном вдохе обменивается приблизительно 1/7 часть ФОЕ). Состав альвеолярного газа по содержанию кислорода и углекислого газа на 5-6% отличается от атмосферного. Таблица. 2. Газовый состав вдыхаемого и альвеолярного воздуха
Диффузия газов между альвеолами и кровью
Диффузия газов между альвеолярным воздухом и кровью подчиняется общему закону диффузии, согласно которому се движущей силой является разность парциальных давлений (напряжений) газа между альвеолами и кровью (рис. 3).
Газы, находящиеся в растворенном состоянии в плазме крови, притекающей к легким, создают их напряжение в крови, которое выражают в тех же единицах (мм рт. ст.), чтои парциальное давление в воздухе. Средняя величина напряжения кислорода (рО2) в крови капилляров малого круга равна 40 мм рт. ст., а его парциальное давление в альвеолярном воздухе — 100 мм рт. ст. Градиент давления кислорода между альвеолярным воздухом и кровью составляет 60 мм рт. ст. Напряжение углекислого газа в притекающей венозной крови — 46 мм рт. ст., в альвеолах — 40 мм рт. ст. и градиент давления углекислого газа составляет 6 мм рт. ст. Эти градиенты и являются движущей силой газообмена между альвеолярным воздухом и кровью. Следует учитывать, что указанные величины градиентов имеются лишь в начале капилляров, но мере продвижения крови по капилляру разность между парциальным давлением в альвеолярном газе и напряжением в крови уменьшается.
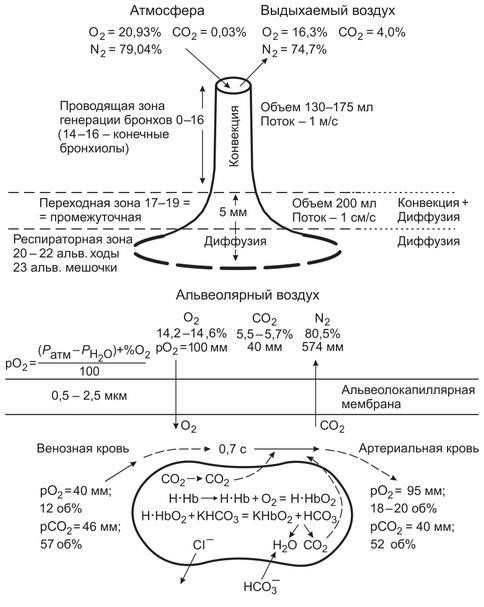
Рис. 3. Физико-химические и морфологические условия газообмена между альвеолярным воздухом и кровью На скорость обмена кислорода между альвеолярным воздухом и кровью влияют как свойства среды, через которую идет диффузия, так и время (около 0,2 с), в течение которого происходит связывание перешедшей порции кислорода с гемоглобином.
Для перехода из альвеолярного воздуха в эритроцит и связи с гемоглобином молекула кислорода должна продиффундировать через:
слой сурфактанта, выстилающий альвеолу;
альвеолярный эпителий;
базальные мембраны и интерстициальное пространство между эпителием и эндотелием; эндотелий капилляра;
слой плазмы крови между эндотелием и эритроцитом;
мембрану эртроцита;
слой цитоплазмы в эритроците.
Суммарное расстояние этого диффузионного пространства составляет от 0,5 до 2 мкм.
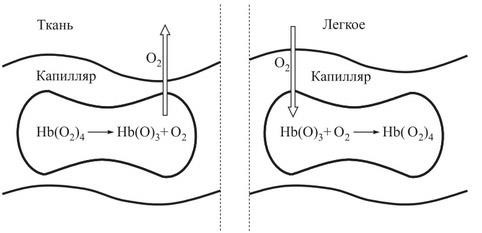
Рис. 4. Газообмен в капиллярах большого и малого круга кровообращения
В условиях высокогорья
У горцев:↑ содержание СО2 и ↓ содежание О2 в крови на фоне снижения чувствительности периферических хеморецепторов к гипоксии , увеличение плотности капилляров и относительно высокого уровня утилизации тканями О2 из крови, возрастают диффузионная способность легких и кислородная емкость крови за счет роста концентрации Hb
Объясните механизмы транспорта кислорода кровью. Охарактеризуйте кривую диссоциации оксигемоглобина и факторы, влияющие на сродство гемоглобина к кислороду.
Обогащенная кислородом кровь направляется по сосудам с током крови из легких в ткани организма. Кислород транспортируется кровью двумя способами: в связанном с гемоглобином виде — в форме оксигемоглобина и за счет физического растворения газа в плазме крови.
Физическое растворение. Все газы, в том числе и кислород, в соответствии со своим парциальным давлением могут физически растворяться в жидкости. Так, в артериальной крови содержание физически растворимого кислорода составляет 0,003 мл в 1 мл крови.
И хотя доля кислорода, переносимого за счет физического растворения невелика, этот процесс имеет огромное значение для жизнедеятельности.
Химическое соединение. Большая часть кислорода переносится кровью в виде химических соединений с гемоглобином. Один моль гемоглобина может связать до четырех молей кислорода и в среднем 1 г гемоглобина способен связать 1,34—1,36 мл кислорода. Исходя из этого, можно определить кислородную емкость крови, характеризующую количество кислорода, содержащееся в 1 л крови. Принимая во внимание, что в норме в 1 л крови присутствует 150 г гемоглобина, можно рассчитать, что в 1 л крови содержится 0,2 л кислорода.
Характеристика кривой диссоциации оксигемоглобина.
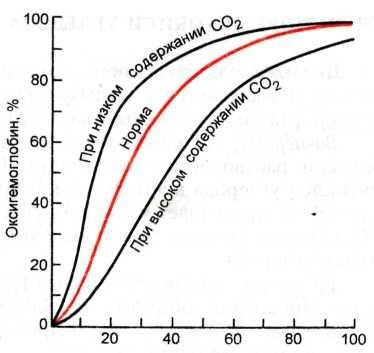
Связывание кислорода с гемоглобином и высвобождение его зависят от парциального давления кислорода. Соотношение количества гемоглобина и оксигемоглобина в крови иллюстрирует кривая диссоциации оксигемоглобина.
Чем выше парциальное давление кислорода, тем больше содержание оксигемоглобина; при парциальном давлении 80 мм рт.ст. практически весь гемоглобин насыщается кислородом, за исключением незначительного количества (1—2 %), «занятого» двуокисью углерода.
Факторы, влияющие на сродство гемоглобина к кислороду.
1)Н+ (↓ рН-сдвиг вправо) ,↑ рН –сдвиг влево)
2)рСО2
*влияние рН и рСо2 на кривую диссоциации оксигемоглобина наз-ся эффектом Бора 3)температура
↑ температуры→↑ скорости распада Hb →↓ сродства Hb к О2
*связывание О2 Hb-ом ↑ сродство его аминогрупп к СО2 –эффект Холдена
Кривая диссоциации оксигемоглобина имеет важное биологическое значение для переноса кислорода кровью. Участок кривой, соответствующий низким парциальным значениям кислорода, характеризует содержание оксигемоглобина в капиллярах тканей, а фрагмент кривой, лежащий в области высокого парциального давления кислорода 80—100 мм рт.ст., соответствует крови в легочных капиллярах.
Эффективность транспорта кислорода к тканям определяют два фактора: количество оксигемоглобина, образовавшегося в легких, и количество кислорода, отдаваемого тканям, что зависит от степени распада оксигемоглобина в восстановленный гемоглобин. Процесс наиболее эффективного переноса кислорода к тканям соответствует S-образной форме кривой диссоциации оксигемоглобина. В области высокого парциального давления кислорода кривая близка к насыщению кислородом крови, а в области низких значений парциального давления кислорода в тканях значительная часть оксигемоглобина отдает кислород и превращается в восстановленную форму.
Эффект Бора. Огромное биологическое значение для транспорта кислорода и двуокиси углерода имеет эффект Бора.
При увеличении парциального давления двуокиси углерода в тканях кривая диссоциации оксигемоглобина, сдвигаясь вправо, отражает повышение способности оксигемоглобина отдавать кислород тканям и тем самым высвобождаться для дополнительного связывания двуокиси углерода и переноса ее избытка из тканей в легкие.
Напротив, при снижении парциального давления двуокиси углерода и смещении рН крови в основную сторону (алкалоз) сдвиг кривой диссоциации оксигемоглобина влево означает снижение способности оксигемоглобина отдавать кислород тканям и поглощать двуокись углерода для транспорта ее к легким. Сдвиг кривой диссоциации оксигемоглобина иллюстрирует взаимосвязь транспорта кислорода и двуокиси углерода в крови и сродство гемоглобина к этим газам.
Объясните механизмы транспорта углекислого газа кровью, раскройте роль карбоангидразы. Проанализируйте роль дыхания в регуляции рН крови
Перенос углекислого газа. Двуокись углерода, образующаяся в тканях, переносится с кровью к легким и выделяется с выдыхаемым воздухом в атмосферу. В отличие от транспорта кислорода она транспортируется кровью тремя способами.
Формы транспорта углекислого газа.
СО2 в венозной крови содержится всего 580 мл. Находится СО2 в крови в 3-ех фракциях:
1)физически растворенный 25 мл
2)химически связанный в виде бикарбонатов 510 мл(плазма: бикарбонат натрия-340 мл ,эритроциты: бикарбонаты калия -170 мл)
*СО2→в эритроцит→фермент карбоангидраза→угольная кислота(Н2СО3) →переносится к легким Механизм переноса двуокиси углерода. Перенос двуокиси углерода из тканей в легкие осуществляется следующим образом. Наибольшее парциальное давление двуокиси углерода в клетках тканей и в тканевой жидкости — 60 мм рт.ст.; в притекающей артериальной крови оно составляет 40 мм рт.ст. Благодаря этому градиенту двуокись углерода движется из тканей в капилляры. В результате ее парциальное давление возрастает, достигая в венозной крови 46—48 мм рт.ст. Под влиянием высокого парциального давления часть двуокиси углерода физически растворяется в плазме крови.
Роль карбоангидразы. \
*СО2→в эритроцит→ фермент карбоангидраза→ угольная кислота(Н2СО3) → бикарбонат→переносится к легким :
бикарбонаты плазмы крови→в эритроцит→карбоангидраза→СО2
В целом 1 л венозной крови фиксирует около 2 ммоль двуокиси углерода. Из этого количества 10 % находится в виде карбоаминовой связи с гемоглобином, 35 % составляют ионы гидрокарбоната в эритроцитах, и оставшиеся 55 % представлены угольной кислотой в плазме.
Роль дыхания в регуляции рН крови.
Содержание двуокиси углерода и кислорода в крови и тканях активно влияет на рН. Избыток двуокиси углерода ведет к увеличению содержания угольной кислоты и повышению концентрации водородных ионов.
Снижение двуокиси углерода вызывает обратную реакцию — развитие защелачивания (алкалоз). При недостатке кислорода (гипоксия) усиливается доля гликолитических реакций в метаболизме, что проявляется в избытке недоокисленных продуктов, молочной, а-кетоглютаровой и пировиноградной кислот.
При выраженной гипоксии наблюдается сдвиг рН в кислую сторону (ацидоз).
Кривая диссоциации двуокиси углерода.
Содержание двуокиси углерода в крови зависит от ее парциального давления; зависимость описывается кривой диссоциации двуокиси углерода.
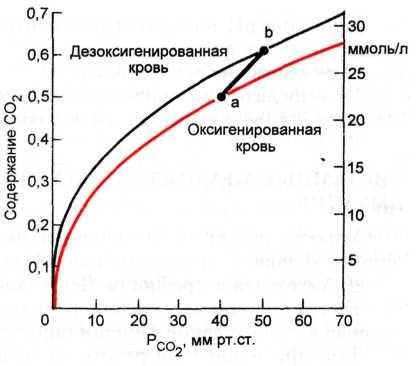
По своему характеру эта кривая принципиально не отличается от кривой диссоциации оксигемоглобина. Однако содержание двуокиси углерода в крови не сводится только к диссоциации карбогемоглобина и описывает все способы транспорта. На рисунке ниже приведены кривые связывания двуокиси углерода для оксигенированной (артериальной) и дезоксигенированной (венозной) крови.
Общая закономерность проявляется в увеличении содержания двуокиси углерода в крови при возрастании ее парциального давления.
Охарактеризуйте дыхательный центр (в узком и широком смысле слова), современные представления о его структуре, локализации и участии отделов в регуляции дыхания. Объясните роль блуждающего нерва в регуляции дыхания
Дыхательный центр
А)ЦНС 1)кора средн мозга(моторная зона) |
1)контроль произвольного дыхания 2контроль за составом газа 3)поддержание гомеостатических параметров в дыхательной системе |
2)Промежуточный мозг Ядра Гипоталамуса |
Координация работы систем дыхания и кровообращения |
3)Средн мозг |
Тонус дыхательной мускулатуры |
4)Варолиев мост |
|
А)Пневмотоксический центр(верхн часть моста)
Б)Апнестический центр |
1)регуляция вдоха и выдоха 2)↑частоты и глубины дыхания
1)активация инспираторного отдела 2)↓частоты и глубины дыхания(удлинение вдоха) |
5)Продолговатый мозг Бульбарный отдел А)дорсальная часть
Б)вентральная |
1)инспираторные нейроны :ранние , полные ,поздние :регуляция вдоха 2)инспираторные→экспираторные :переход от вдоха к выдоху
Экспраторные : ранние ,поздние:регуляция выдоха |
6)Спинной мозг Мотонейроны в передних рогах А)шейн отдел :С3-С5(диафрагмальный нерв) Б)грудной отдел *Th2-Th6
*Th8-Th10 |
Регуляция работы диафрагмф
Регуляция инспираторных(наружн межреберн) м-ц
Регуляция работы экспираторных(внутр межреберн)м-ц |
Б)ВНС 1)Симпатический отдел |
1расширение бронхов(расслабление гладкой мускулатуры) 2угнетение работы ж-з(слизист) |
2)Парасимпатический отдел |
1сужение бронхов(сокращ-е гладк мускулатуры) 2)усиление работы ж-з |