Материал: Ekzamen_po_fiziologii_2020
Na и
секрецию ионов К
,
уменьшая диурез.
Нервная регуляция мочеобразования выражена слабее, чем гуморальная, и осуществляется как условнорефлекторным, так и безусловно-рефлекторным путем. В основном она происходит благодаря рефлекторным изменениям просвета почечных сосудов под влиянием различных воздействий на организм. Это ведет к сдвигам почечного кровотока и, следовательно, процесса мочеобразования. Условно-рефлекторное повышение диуреза на индифферентный раздражитель, подкрепленное повышенным потребление воды, свидетельствует об участии коры больших полушарий в регуляции мочеобразования. Следует иметь в виду, что почки обладают высокой способностью к саморегуляции. Выключение высших корковых и подкорковых центров регуляции не приводит к прекращению мочеобразования.
Объясните механизмы формирования жажды
В основе появления чувства жажды – это возбуждение центра жажды гипоталамуса (переднебоковой отдел преоптического ядра).
1.Гипогидратация – обезвоживание
При ней увеличивается осмотическое давление крови(гиперосмия), такое состояние вызывает возбуждение центра жажды гипоталамуса(это переднебоковой отдел преоптического ядра, имеющего осморецепторы), в результате чего человек испытывает жажду и потребляет воду.
2.Гиповолемия(уменьшение ОЦК)
Уменьшения объёма циркулирущей крови возбуждает рецепторы гипоталамуса, в результате чего синтезируется АДГ(для задержки воды в организме) и возбуждается центр жажды, в результате человек испытывает жажду, ищет воду(ну и пьёт когда найдет).
Мотивация жажды:
Возбуждение в нейронах супраоптических и паравентрикулярных ядер гипоталамуса гиперосмолярной кровью формирует ощущение и мотивацию жажды.
Осморецепторы определяют обратную афферентацию в гипоталамические центры по блуждающим нервам от ЖКТ. При гиперосмолярном состоянии афферентация усиливается.
Гидратация и дегидратация соединительной ткани приводит к тому, что из нее в кровь поступают специальные молекулы – олигопептиды, простагландины, которые несут информацию об осмотической потребности.
Гиперосмолярная кровь. При гиперосмолярной крови сигнализация от осморецепторов, адресуясь в конечном счете к нейронам супраоптическич и паравентрикулярных ядер, усиливает образование в них вазопрессина. Вазопрессин, поступая в нейрогипофиз и в кровь, достигает своих органов-мишеней — восходящих частей петли нефронов и собирательных трубок. Происходит задержка воды в организме, что противодействует росту осмо-лярности. Дополнительно к этому за счет снижения секреции АКТГ и альдостерона усиливается выделение натрия из организма. Под влиянием вазопрессина в мозге нарастает содержание ангиотензина II. Формируется мотивация жажды и на ее основе — питьевое повеление, приводящее к нормализации осмотического давления.
Охарактеризуйте узловые механизмы функциональной системы, поддерживающей оптимальный для метаболизма уровень осмотического давления
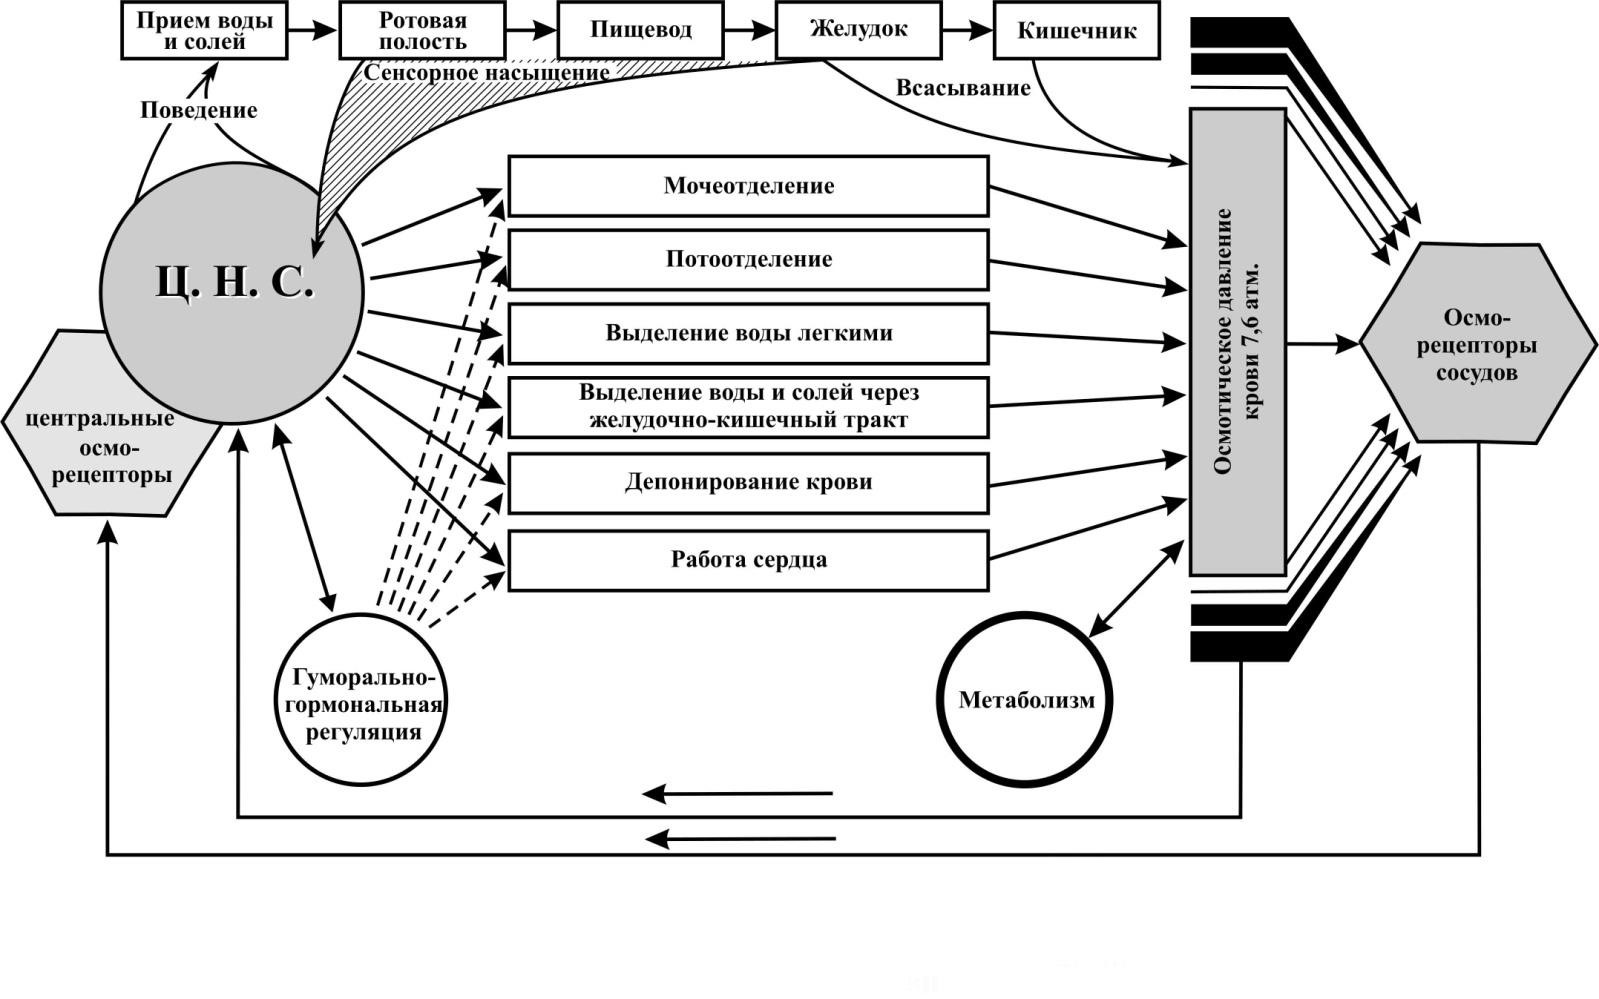
Полезный приспособительный результат(ППР), ради которого работает данная функциональная система,— оптимальный для метаболизма уровень осмотичсекого давления крови(7.6атм).
Рецепция результата осуществляется осморецепторами(в первую очередь рецепторами мембран тканей). Центральные осморецепторы – нейроны супраоптического и паравентрикулярного ядер переднего гипоталамуса. Осморецепторы ЮГА – клетки плотного пятна.
Нейроны гипоталамуса связаны своими отростками с другими нейронами нейронами лимбических отделов мозга(в частности с центром жажды гипоталамуса). В результате возникает возбуждение, широко распространяющееся по структурам головного мозга => формируется чувство жажды(при гиперосмолярности) или поиск и употребление соли(при гипоосмолярности), то есть формируется определённое ПОВЕДЕНИЕ и другие механизмы(см столбец посередине на рисунке) для достижения ППР.
Сенсорное насыщение – это поступающая обратная афферентация о результате деятельности ФУС от органов ЖКТ(по блуждающему нерву главным образом) в центры гипоталамуса.
Оптимальный для метаболизма уровень осмотического давления определяется различным соотношением воды и ионов в организме. Оптимальным для метаболизма тканей осмотическим состоянием считается нормоосмолярное (нормоосмотическое). Преобладание солей и, наоборот, снижение воды в организме формируют гиперосмолярное (гиперосмотическое) состояние. Уменьшение содержания солей или, наоборот, при нормальном количестве солей увеличение содержания воды в организме формирует гипоосмолярное (гипоосмотическое) состояние.
Предконечный результат. Функциональная система, определяющая уровень осмотического давления, имеет предконечный результат, тесно связанный с показателями осмотического давления в тканях — осмотическое давление крови. Этот предконечный результат выступает в предупредительной роли, демпфируя резкие перепады осмотического давления в тканях. Этому результату в свою очередь предшествуют другие — величина осмотического давления в разных отделах желудочно-кишечного тракта, а также специфические эмоциональные чувства жажды и солевой мотивации.
Анализаторы Рассмотрите общие принципы строения и функции анализаторов. Охарактеризуйте строение и функции периферического, проводникового и коркового отделов слухового анализатора
Анализатор– совокупность возбудимых структур центральной и периферической нервной системы, осуществляющих восприятие и анализ воздействий окружающей среды и воздействий, исходящих от самого организма.
Классические представления Павлова об анализаторе включают в его состав три части: периферический отдел, проводниковый отдел и центральный конец.
Периферический отдел анализатороввключает, как правило, рецепторы, хотя в некоторых анализаторах, например зрительном, в этот отдел могут быть включены и первичные афферентные нейроны.
Периферический отдел анализатора является составной частью любого органа чувств, который, помимо рецепторов, включает специальные вспомогательные образования для наилучшего восприятия действующего раздражителя. Например, глаз как орган зрения, помимо сетчатки (фоторецепторы), включает глазное яблоко, его мышцы, веки и др.
Проводниковый отдел анализаторов включает не только нервные волокна, непосредственно отходящие от рецепторов, но и все афферентные нейроны, обеспечивающие первичный анализ и передачу возбуждений в центральный отдел анализатора. Возникающие в рецепторах импульсы возбуждения распространяются по проводящим путям в виде электрических потенциалов. Во всех нервных волокнах потенциалы являются однотипными по внешнему виду, но в потоке импульсов возбуждения в их своеобразном рисунке — паттерне — закодирована специфическая информация о параметрах действующего раздражителя. Анализ этой информации начинается как на уровне первичных афферентных нервных клеток, так и в последующих спинальных, стволовых и подкорковых ядрах.
Центральный отдел анализаторов. Различные проводящие афферентные пути через возбуждение соответствующих подкорковых структур в конечном счете приносят импульсы возбуждения в
соответствующие области коры большого мозга, которые считаются высшим центральным конечным звеном любого анализатора. Вместе со специфическим афферентным возбуждением в кору поступает и неспецифическое восходящее возбуждение, которое формируется на уровне подкорковых активирующих структур мозга — ретикулярной формации, гипоталамуса и др.
Передача импульсов от рецепторов по проводящим путям к коре большого мозга осуществляется по цепям нейронов в различных ядрах, расположенных на разных уровнях ЦНС. За счет конвергенции и дивергенции возбуждений в нейронных цепях в этих нервных центрах осуществляются передача и обработка информации.
Слуховой анализатор
Слуховой анализатор состоит из трех отделов:
Периферический отдел включающий наружнее, среднее и внутреннее ухо
Проводниковый отдел - аксоны биполярных клеток - улитковый нерв - ядра продолговатого мозга - внутреннее коленчатое тело – слуховая область коры больших полушарий
Центральный отдел – височная доля Строение уха
Наружнее ухо включает ушную раковину и наружный слуховой проход. Его функция состоит в улавливании звуковых колебаний.
Среднее ухо.
Среднее ухо отделено от наружного барабанной перепонкой, а от внутреннего — костной перегородкой с двумя отверстиями. Одно из них называется овальным окном или окном преддверия. К его краям при помощи эластичной кольцевой связки прикреплено основание стремени, Другое отверстие — круглое окно, или окно улитки,— затянуто тонкой соединительнотканной мембраной. Внутри барабанной полости находятся три слуховые косточки — молоточек, наковальня и стремя, соединенные между собой суставами. Воздушные звуковые волны, попадая в слуховой проход, вызывают колебания барабанной перепонки, которые через систему слуховых косточек, а также через воздух, находящийся в среднем ухе, передаются перилимфе внутреннего уха. Сочлененные между собой слуховые косточки можно рассматривать как рычаг первого рода, длинное плечо которого соединено с барабанной перепонкой, а короткое укреплено в овальном окне. При передаче движения с длинного на короткое плечо происходит уменьшение размаха (амплитуды) за счет увеличения развиваемой силы. Значительное увеличение силы звуковых колебаний происходит еще и потому, что поверхность основания стремени во много раз меньше поверхности барабанной перепонки. В целом сила звуковых колебаний увеличивается по крайней мере в 30—40 раз.
При мощных звуках вследствие сокращения мышц барабанной полости увеличивается напряжение барабанной перепонки и уменьшается подвижность основания стремени, что ведет к понижению силы передаваемых колебаний.
Внутреннее ухо.
Внутреннее ухо представляет собой сложную систему каналов, находящихся в пирамиде височной кости и получивших название костного лабиринта. Расположенные в нем улитка и вестибулярный аппарат образуют перепончатый лабиринт (рис. 2). Пространство между стенками костного и перепончатого лабиринтов заполнено жидкостью — перилимфой. К слуховому анализатору относится только передняя часть перепончатого лабиринта, которая расположена внутри костного канала улитки и вместе с ним образует два с половиной оборота вокруг костного стержня (рис. 3). От костного стержня внутрь канала отходит отросток в виде винтообразной спиральной пластинки, широкой у основания улитки и постепенно суживающейся к ее вершине. Эта пластинка не доходит до противоположной, наружной стенки канала. Между пластин кой и наружной стенкой расположена улитковая часть перепончатого лабиринта, вследствие чего весь канал оказывается разделенным на два этажа, или прохода.
Один из них сообщается с преддверием костного лабиринта и называется лестницей преддверия, другой начинается от окна улитки, граничащего с барабанной полостью, и называется лестницей барабана. Оба прохода сообщаются только в верхнем, узком конце улитки.
На поперечном разрезе улитковая часть перепончатого лабиринта имеет форму вытянутого треугольника. Его нижняя сторона, граничащая с лестницей барабана, образована основной пластинкой, которая состоит из погруженных в гомогенную массу тончайших эластических соединительнотканных волокон, натянутых между свободным краем спиральной костной пластинки и наружной стенкой канала улитки. Верхняя сторона треугольника граничит с лестницей преддверия, отходя под острым углом от верхней поверхности спиральной костной пластинки и направляясь, как и основная пластинка, к наружной стенке канала улитки. Третья, самая короткая сторона треугольника состоит из соединительной ткани, плотно сращенной с наружной стенкой костного канала. Функция кортиева органа. Рецепторный аппарат слухового анализатора, или спиральный кортиев орган, расположен внутри улитковой части перепончатого лабиринта на верхней поверхности основной пластинки (рис. 4). Вдоль внутренней части основной пластинки, на некотором расстоянии друг от друга, расположены два ряда столбовых клеток, которые, соприкасаясь своими верхними концами, отграничивают свободное треугольное пространство, или тоннель. По обе стороны от него находятся чувствительные к звуковым колебаниям см/ховые, или волосковые, клетки, каждая из которых на своей верхней свободной поверхности имеет 15—20 небольших тончайших волосков. Концы вслосков погружены в покровную пластинку, она укреплена на костной-спиральной пластинке и свободным концом покрывает кортиев орган. Волосковые клетки расположены кнутри от тоннеля в один ряд, а кнаружи—в три ряда. От основной пластинки они отделены опорными клетками.
К основаниям волосковых клеток подходят конечные разветвления волокон биполярных нервных клеток, тела которых расположены в центральном канале костного стержня улитки, где они образуют так называемый спиральный узел, гомологичный межпозвоночному узлу спинномозговых нервов. Каждая из трех с половиной тысяч внутренних волосковых клеток связана с одной, а иногда и с двумя отдельными нервными клетками. Наружные волосковые клетки, количество которых достигает 15—20 тысяч, могут быть соединены и с несколькими нервными клетками, но при этом каждое нервное волокно дает ответвления только к волоско-вым клеткам одного и того же ряда.
Перилимфа, окружающая перепончатый аппарат улитки, испытывает давление, которое и меняется соответственно частоте, силе и форме звуковых колебаний. Изменения давления вызывают колебания основной пластинки вместе с расположенными на ней клетками, волоски которых испытывают при этом изменения давления со стороны покровной пластинки. Это, по-видимому, и ведет к возникновению возбуждения в волосковых клетках, которое передается на конечные разветвления нервных волокон.
Рассмотрите важнейшие физиологические свойства рецепторов. Дайте классификацию рецепторов
Функциональное назначение рецепторов заключается в выявлении и различении раздражителей с разной модальности. Поскольку раздражители внешней или внутренней среды имеют различную природу, а нервные центры «понимают только один язык», т.е. нервный импульс (ПД), то к вышеперечисленным функциям рецептора предстоит еще и преобразования разной модальности раздражения в ПД.
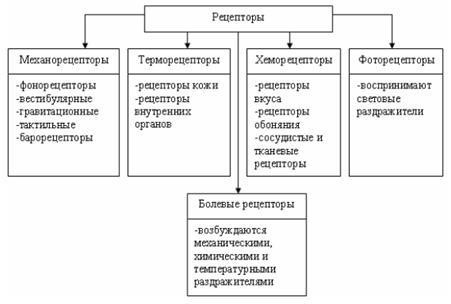
Классификация:
I.По характеру действия раздражителя:
Экстерорецепторы (рецепторы органов чувств).Как правило, высокоспецифичны к определенному раздражителю – мономодальные (закон специфической нервной энергии Мюллера).
Интерорецепторы (рецепторы внутренних органов). Могут быть мономодальные (например, хеморецепторы в стенке аорты чувствительны к СО2, рН, О2). Но большинство интерорецепторов полимодальные, т.е. могут реагировать на широкий диапазон раздражителей.
Проприорецепторы (рецепторы мышц, связок, суставов), полимодальные.
II. По модальности:
Механорецепторы – располагаются в периферических отделах соматической (скелетно-мышечной), слуховой и вестибулярной систем.
Терморецепторы – располагаются в коже, внутренних органах и центральных термочувствительных нейронах, делятся на тепловые и холодовые.
Хеморецепторы. У наземных животных находятся в периферических отделах обонятельной и вкусовой сенсорных систем, а также в сосудах и тканях (информация о химическом составе внутренней среды).
Фоторецепторы – в глазу.
Электрорецепторы – в боковой линии рыб, у некоторых амфибий и т.д.
Болевые (ноцицептивные) рецепторы – во всех органах.
III. По механизмам образования нервного импульса:
Первично-чувствующие рецепторы:раздражитель действует на дендрит сенсорного нейрона, изменяется проницаемость клеточной мембраны к ионам (в основном к Na+), образуется локальный электрический потенциал (рецепторный потенциал), который электротонически распространяется вдоль мембраны к аксону (таблица 1). На мембране аксона образуется потенциал действия, передаваемый далее в ЦНС.
Сенсорный нейрон с первично-чувствующим рецептором представляет собой биполярный нейрон, на одном полюсе которого располагается дендрит с ресничкой, а на другом – аксон, передающий возбуждение в ЦНС.
Примеры: проприорецепторы, терморецепторы, обонятельные клетки.
Вторично-чувствующие рецепторы: в них раздражитель действует на рецепторную клетку, в ней возникает возбуждение (рецепторный потенциал). На мембране аксона рецепторный потенциал активирует выделение нейромедиатора в синапс, в результате чего на постсинаптической мембране второго нейрона (чаще всего биполярного) образуется генераторный потенциал, который и приводит к образованию потенциала действия на соседних участках постсинаптической мембраны (таблица 1). Далее этот потенциал действия передается в ЦНС. Примеры: волосковые клетки уха, вкусовые
IV.По дальности расположения воспринимаемого стимула рецепторы являются
дистантными (слух, зрение),
контактными (осязание, обоняние, вкус).
интероцепторами — это рецепторы, воспринимающие раздражители из внутренней среды организма, (рецепторы сосудов, внутренних органов, а также рецепторы двигательного аппарата, называемые проприоцепторами). Свойства рецепторов.
Высокая возбудимость. Так, для возбуждения фоторецептора сетчатки достаточно одного кванта света, для обонятельного рецептора - одной молекулы пахучего вещества.
Адаптация - уменьшение возбудимости рецепторов при длительном действии раздражителя (только темновая адаптация фоторецепторов приводит к повышению их возбудимости). Адаптация рецепторов выражается в снижении амплитуды РП и, как следствие, в уменьшении частоты импульсации в афферентном волокне.
Спонтанная активность, т.е. способность возбуждаться без действия раздражителя, присуща проприорецепторам, фоно-, фото-, вестибуло-, термо-, хеморецепторам. Эта способность связана со спонтанным колебанием проницаемости клеточной мембраны, перемещением ионов и периодической деполяризацией рецептора, которая, достигая критического уровня, приводит к генерации потенциала действия в афферентном нейроне.