Материал: Makeev-monograph-2012
Страница184
Global Soil Change…, 1990; Retallack, 2001; Добровольский, 2006 и др.,
Добровольский, Макеев, 2009). Начало палеозоя ознаменовалось появлением большого разнообразия новых форм жизни, получившее название «кембрийский взрыв». Первые многоклеточные морские организмы датированы возрастом 510 Ma. У живых организмов стали формироваться минеральные скелеты, что определило улучшение палеонтологической записи. Однако эти изменения касались жизни в океане. Наземная жизнь на суше (во всяком случае, в нижнем кембрии) была по-прежнему представлена только микроорганизмами.
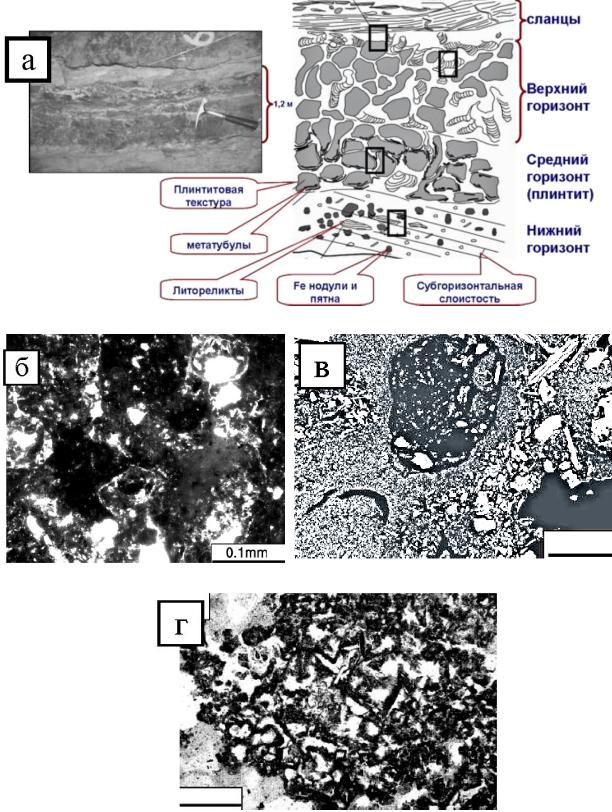
Принципиальные факты, раскрывающие роль сообществ микроорганизмов в почвообразовании, получены при исследовании палеопочв, формировавшихся в условиях субтропического переменновлажного семиаридного климата в нижнекембрийское время в северной Испании в чередующихся пойменных и дельтовых отложениях эстуариев (Alvaro еt al., 2003). При динамичной смене условий осадконакопления глинистые палеопочвы (аргиллитовая фация пойменных отложений) формировались в непродолжительные отрезки времени (по расчетам авторов порядка 102 лет). Профили мощностью 120 см отвечают всем критериям современных почв - sulfidic Ustifluvents (по Soil Survey Staff, 1998) и подразделяются на три горизонта (рис. 3). Сезонная контрастность (чередование сухих и влажных периодов) проявилась в верхнем горизонте, где представлены признаки набухания-усыхания почвенной массы. Ниже залегает плинтиковый горизонт с обильными железистыми конкрециями и метатубулами. Нижний пятнистый горизонт отражает уровень периодического стояния верховодки. Детальный микроморфологический, геохимический и минералогический анализ позволил выявить следы деятельности микробных колоний в формировании всех горизонтов профиля. Так, в верхнем горизонте представлены железисто-марганцевые пятна и диффузные железистые хлопья на аржилланах бактериальной природы. Особенно ярко участие микроорганизмов проявилось в формировании железистых конкреций и метатубул, нодулярных скоплений гетита, а также биогенной пористости в среднем горизонте. Тубулярные текстуры гидроокислов железа, возможно, указывают на участие в их формировании цианобактерий. Биогенные признаки в нижнекембрийских палеопочвах оказались идентичными аналогичным признакам в почвах эстуариев неоген-четвертичного времени в южной Бретани, Франция. Рассматриваемые, а также приведенные нами ранее данные позволяют выполнить переоценку роли микроорганизмов в почвообразовании. Еще до появления высших растений микроорганизмы формировали сложные сообщества, распространяя свое влияние в почвах на рыхлых породах фактически в пределах всей вадозной зоны, и определяли заметные преобразования почвенной массы и свойств горизонтов даже при незначительной длительности почвообразования.
Страница185
Рис. 3. Профиль нижнекембрийской пойменной палеопочвы (sulfidic Ustifluvents, Alvaro et al., 2003). а. Строение профиля; б. гетитовая конкреция, средний горизонт; в. заполнение глиной биогенной поры, средний горизонт; г. биогенная микроагрегация плазмы, средний горизонт.
Страница186
Подведем итоги рассмотрения основных закономерностей почвообразования в условиях бактериальной биосферы. Этот период охватывает докембрий и нижний палеозой. Формирование почвенного покрова, погребение почв, а также снос и переотложение разрушенных почв - постоянное звено геологического круговорота начиная с докембрия. Уже в самые начальные этапы, вслед за образованием земной коры и формированием прото-континентов (кратонов) мы обнаруживаем древнейшие континентальные осадочные и метаморфические породы с признаками влияния жизни. Рыхлых пород без признаков обитания практически не обнаружено. Это означает, что обитание и обитаемость на суше возникли практически одновременно. Древнейшие докембрийские палеопочвы на рыхлых осадочных породах и корах выветривания обладали мощным профилем. Почвы обладали породной и климатической сенсорностью. Докембрийские палеопочвы характеризуются глубоким выветриванием первичных минералов и стадийными преобразованиями вторичных минералов (оглиниванием), проходившими с участием микроорганизмов. Почвы имеют горизонтное строение профиля с развитой структурой и наличием кутан. Изотопный анализ, а также микроскопические исследования обнаруживают признаки накопления органического вещества. При близости свойств докембрийских палеопочв и их современных аналогов, они близки и по экологическим функциям. Древние почвы формировались как компоненты существовавшего тогда биогеоценоза (сложно построенного сообщества микроорганизмов). Хотя возможно, в отсутствие сложных органо-минеральных комплексов почвы не могли обладать высокой буферностью. Очевидно, что эти почвы не могли определять и современный гидрологический цикл с вовлечением подпочвенных вод, что стало характерным для биогеоценозов при появлении древесной растительности, а также травянистой растительности с развитой корневой системой.
Подчеркнем, что все эти свойства сформировались при участии только микроорганизмов в отсутствие высших растений. Было ли это почвообразование в «классическом» виде? С прокариотами (бактериальной биосферой) связывается наличие только абиогенных и слабо биогенных кор выветривания (Заварзин, Рожнов, 2010). Возникновение собственно почв связывается с появлением сосудистых растений в конце силура - девоне, когда стало возможным формирование сложных гумусовых соединений (Заварзина, 2010).
Согласно другим подходам, коры выветривания, в том числе и абиогенные, часто рассматриваются как почвы (Retallack, 2001). В последнее время приходит понимание, что докучаевская парадигма во многом приложима к более широкому набору объектов, чем собственно почвы - экзонам (Таргульян, 1983; Targulian et al., 2010). Так, экзоны, наряду с почвами включают в себя и абиогенные коры выветривания, в
Страница187
том числе и на других планетах. Получаемые в последнее время материалы показывают, что все же докембрийские почвы сильнее отличаются от экзонов Марса, Венеры, Луны, чем от современных почвенных аналогов.
Формирование мощных профилей в условиях бактериальной биосферы определяет необходимость пересмотра понятия «бактериальные пленки». В этом смысле интересен подход, согласно которому почвенные пленки (soil crusts) представляют собой сложные экосистемы (Grazhdankin, 2007). Сообщества древнейших микроорганизмов обладали сложными функциональными связями (Заварзин, 2003). Выше описана сложная структура микробных матов, реконструированная для почв,
формировавшихся 2,7-2,6 Ga в Южной Африке (Watanabe, et al., 2000,
2004). Признаки охвата сообществами микроорганизмов верхних горизонтов почвенного профиля установлены уже для почв палеопротерозоя (например, описанные выше железисто-марганцевые пленки в почве Waterval Onder). К сожалению, признаки, обусловленные деятельностью микроорганизмов (структурные особенности, микробиотурбации, новообразования и т.п.) в палеопочвах плохо сохраняются, а иногда просто не замечаются. До настоящего времени отсутствуют и четкие критерии для их диагностики. При дальнейшем изучении параэлювиальных кор выветривания как палеопедолитосфер, мы, повидимому, получим более определенный ответ о функциональных возможностях древнейших микробных сообществ.
Отдельный вопрос о том, как осуществлялось глубокое преобразование минеральной матрицы. В современных почвах при совместном воздействии различных агентов (микроорганизмы, корневые выделения, гумусовые кислоты) возникает синергетический эффект, усиливающий преобразование минеральной матрицы (Соколова, 2011). Однако изучение палеопочв бактериальной биосферы показывает, что и сами микроорганизмы способны приводить к существенным изменениям минеральной матрицы почвенных горизонтов. Примитивные микробные сообщества могли способствовать образованию филосиликатных глинистых минералов в докембрии, а также в раннем палеозое (Álvaro et al., 2003).
Основным агентом выветривания в докембрии была углекислота. При повышении содержания в атмосфере СО2 активизировались процессы выветривания. Можно указать еще на одну важную особенность докембрийских палеопочв, сближающих их с почвами более поздних эпох, формировавшихся под воздействием высших растений – зависимость накопления почвенных карбонатов от содержания СО2 в атмосфере и участие сообществ микроорганизмов и дыхания почвы в бикарбонатном метаболизме. Карбонатное осадконакопление на суше связывается с высоким давлением углекислого газа (pCO2). Считается, что формирование таких условий в почвах было невозможно до появления сосудистых
Страница188
растений. В то же время накопление карбонатов документировано уже в почвах архея, протерозоя, кембрия, ордовика и силура. Таким образом, изучение палеопочв показывает, что сообщества микроорганизмов даже в отсутствие высших растений могли регулировать в зависимости от климатических параметров и содержания СО2 в атмосфере, накопление карбонатных горизонтов почв и карбонатных отложений на суше. При этом петрографические характеристики карбонатных новообразований последевонских почв, образованных в богатых органикой почвах при участии высших растений, отличаются от таковых до-девонских почв
(Brasier, 2011).
Нам представляется, что новые данные о палеопочвах бактериальной биосферы позволяют внести коррективы и в выделение главного стратиграфического рубежа – границы протерозоя и палеозоя. Важнейшие изменения в эволюции наземной жизни и палеопочв приурочены к последующим этапам – силуру и девону и связаны с появлением высших растений.
Впалеозое экосистемы не только отражают глобальные климатические циклы, но могут в значительной степени определять их. Ранний палеозой был периодом с мягким климатом без выраженной сезонной контрастности и невыраженной климатической поясностью.
Уровень содержания СО2 в атмосфере кембрия был выше современного. «Кембрийский взрыв» вызвал заметное снижение уровня содержания СО2.
Вордовике концентрация СО2 уменьшилась до 4400 ppm, что привело к снижению парникового эффекта и развитию оледенений.
Вордовикском периоде, так же как и в кембрии,
господствовали бактерии. Продолжали развиваться сине-зелѐные водоросли. К среднему ордовику (450 Ма) относят и появление первых наземных многоклеточных организмов. К ордовикскому периоду относятся свидетельства о существовании наземной растительности: остатки спор и редкие находки отпечатков стеблей, вероятно, принадлежавших сосудистым растениям. С большой достоверностью можно полагать, что в ордовике - силуре лишайники колонизировали сушу
(488–416 Ма).
Палеопочвы в палеозое также дают наиболее определенные ответы на главные вопросы эволюции биогеосферных циклов. Так, именно палеопочвы сохранили древнейшие свидетельства существования наземных животных. Известно, что животные (причем только обитатели морей) появились в силуре. Однако уже в позднеордовикских палеопочвах центральной Пенсильвании обнаружены следы вертикальных норок, прорытых какими-то достаточно крупными животными. Ходы размером от 2 до 21 мм в диаметре оставлены животными с твердой оболочкой (видимо, членистоногими или олигохетами) 438-448 Ма. В этих почвах нет следов корней, но есть своеобразные трубчатые тельца, которые