Дипломная (вкр): Биологические эффекты воздействия низкоинтенсивного излучения на водные растворы ДНК
Флюоресценция характеризуется четырьмя основными свойствами:
1) спектром поглощения и флюоресценции;
2) выходом флюоресценции;
) длительностью флюоресценции;
) поляризацией флюоресцентного излучения.
Одной из важных характеристик люминесценции
является ее выход. Различают выход люминесценции энергетический Вэн, равный
отношению излучаемой энергии к поглощенной и квантовый Вкв, равный отношению
числа квантов излучаемых к числу поглощенных квантов светового потока:
 , (12)
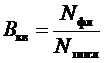 . (13)
Исходя из закона Стокса - Ломмеля, можно сделать
заключение, что интенсивность флюоресценции Iфл пропорциональна числу квантов
Nфл вторичного излучения:
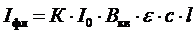 , (15)
где I0 - интенсивность входящего пучка,
Bкв - квантовый выход флюоресцении
ε - показатель поглощения
c - концентрация растворенного вещества
l - толщина слоя излучающего вещества
К - концентрация излучающего вещества
При достаточно малых концентрациях вещества в растворе, когда квантовый выход В кв постоянный, и при стандартных условиях анализа (I0, ε, l = const) получаем, что интенсивность люминесценции пропорциональна концентрации флюоресцирующего вещества.
2. Экспериментальная часть
.1 Материалы и методы исследования
Для обработки плазмы крови ЭМП НЧ, была использована следующая установка, блок-схема которой представлена на рис. 9. Она состояла из генератора ГЗ - 118, катушки индуктивности, имеющей 1200 витков и экранированной камеры. Интенсивность магнитной индукции ЭМП, создаваемого катушкой, составляет 4,8 млТл, удельное сопротивление катушки 320 Ом, и напряжение на катушке равно 14 В. Катушка индуктивности находилась в экранированной камере, и была подключена к генератору ГЗ - 118, на котором и выставлялась необходимая частота подачи сигнала на катушку индуктивности.
Генератор ГЗ - 118 низкочастотных
сигналов представляет собой источник синусоидального сигнала прецизионной формы
волны и предназначен для исследования, настройки и испытаний систем и приборов.
Отличительной чертой этого генератора является - очень низкий коэффициент
нелинейных искажений.
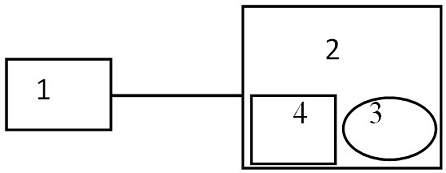
- генератор ГЗ - 118, 2 - экранированная камера, 3 - катушка индуктивности, 4 - исследуемый образец
Рисунок 9 - Блок - схема установки для воздействия ЭМП НЧ на плазму крови клетки (ДНК).
Толщина слоя при снятии ИК - спектров 5мм, при получении спектров флуоресценции 9мм. Время обработки от 3 до 15мин и амплитуда 80мкТл являются константами в ходе работы.
Для получения ИК спектров использовался Фурье ИК - спектрометр Tensor 27 Bruker (Германия). Спектральный диапазон 370 - 7500 см-1, разрешение 1 см-1, скорость сканирования 6 мм/с, соотношение сигнал-шум (пик к пику) 8,000 : 1 (5 сек, разрешение 4 см-1).
Для получения Спектров флуоресценции использовался Спектрофотометр FL - 2700 FL. Спектральный диапазон испускания 220 - 740 нм, длина волны возбуждения 300 нм, скорость сканирования 1500 нм/ с, ширина шили испускания и поглощения 10 нм.
Аминокислота триптофан является
химически чистой. Взвешивание происходило при помощи весов Ohaus Pioneer
PA214C, которые по ГОСТ 24104-2001 имеют I, специальный класс точности.
.2 Объекты исследования
Объектом исследования были водные растворы плазмы ДНК, c концентрацией 30 мг/л. Растворы плазмы крови готовились с использованием в качестве растворителя дистиллированной воды, так как данный растворитель создает в пространстве вокруг молекулы среду схожую с условиями существования ДНК в биологических системах.
Кроме того были отдельно обработаны две аминокислоты составляющих структуру ДНК, а именно триптофан (C11 H12 N2 O2), и глицин c концентрацией 0,01 М. Растворы аминокислот готовились с использованием в качестве растворителя 0,1 М NaCl.
На ИК - спектрах водных растворов
ДНК, выделенных из цельной крови человека, после их облучения ЭМП НЧ наблюдали
появление новых пиков в спектральной области 460 - 450 см-1(1 - й пик) и 1100 -
1000 см-1 (2 - й пик), величины которых зависели от частоты применяемого для
облучения ЭМП НЧ (рисунки 10 - 11).
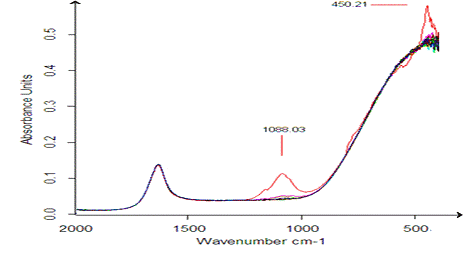
Рисунок 10 - ИК - спектры
водных растворов ДНК, выделенной из цельной крови человека, облученные ЭМП НЧ,
при 4 °С
Как видно из рисунка 7, величины пиков поглощения ДНК, выделенной из цельной крови человека, находятся на частотах 450 см-1 (1 пик) и 1088 см-1 (2 пик), что соответствует областям крутильных и деформационных колебаний молекул воды.
Следует отметить, что величины пиков поглощения
зависят не только от частоты облучения ЭМП, но также и от температуры. При
комнатных температурах наблюдается большая дестабилизация водных растворов ДНК.
Поэтому эффект зависимости адсорбции исследуемого образца от частоты ЭМП
выражен не так отчетливо. На рисунке 8 представлены ИК -
спектры водных растворов ДНК, выделенной из цельной крови человека и
обработанные на частотах от 7 до 9,2 Гц, с шагом 0,2 Гц, при 23 °С.
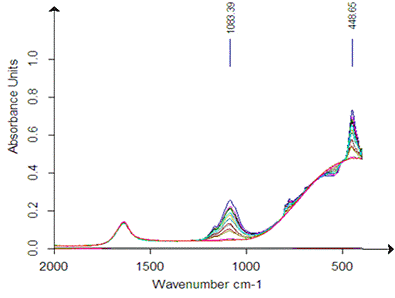
Рисунок 11 - ИК - спектры
водных растворов ДНК, выделенной из цельной крови человека, облученные ЭМП
(красным цветом без облучения) на частотах от 7 до 9,2 Гц.
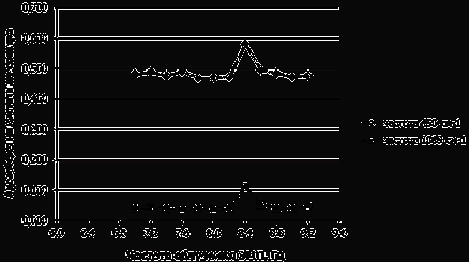
Рисунок 12 - Зависимость величин адсорбции пиков ИК-спектра раствора ДНК, выделенной из цельной крови человека, от частоты ЭМП
На рисунке 11 построены зависимости высот данных пиков при частоте облучения 450 см-1 и частоте 1088 см-1 растворов ДНК, выделенной из цельной крови человека от частоты воздействующего ЭМП.
Из рисунка 11 видно, что наибольшее влияние на растворы ДНК, выделенные из цельной крови человека, оказывает ЭМП с частотой 8,4 Гц.
В ходе анализа ИК - спектров растворов
триптофана с концентрацией 0,01М, взятых при различных температурах, и
облученных ЭМП НЧ (рис. 10) с B
= 80 мкТл и v = 8,4 Гц, была
получена зависимость (рис. 11) . Из полученной зависимости видно, что
интенсивность адсорбции увеличивается с ростом температуры.
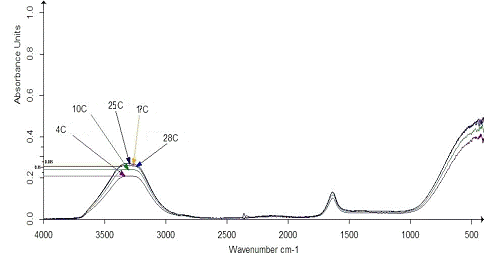
Рисунок 13 - ИК - спектр растворов триптофана (С
= 0,01 М) в растворе 0,1 М Na
Cl, полученный после
облучения ЭМП НЧ (B = 80 мкТл, v
= 8,4 Гц).
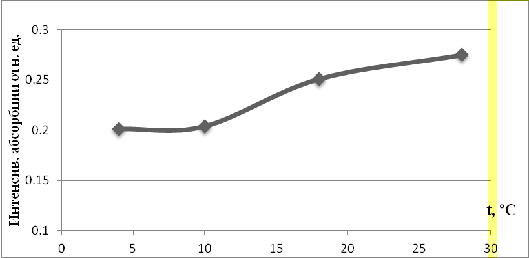
Рисунок 14 - Зависимость
интенсивности полосы поглощения с максимумом при 3300 см-1 от температуры при
действии ЭМП НЧ на раствор триптофана
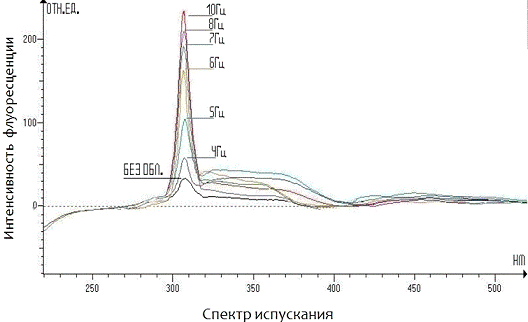
Рисунок 15 - Интенсивность
флуоресценции растворов ДНК, после обработки ЭМП различной частоты λвозб
= 300 нм
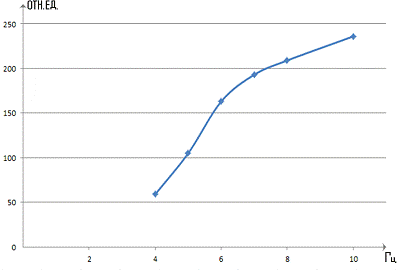
Рисунок 16 - График
зависимости интенсивности флуоресценции (λ
возб = 300нм) от частоты ЭМП
.4 Обсуждение результатов
В ходе проведенных исследований выяснено, что на ИК-спектрах растворов триптофана с концентрацией 0.01 M, полученных после облучения ЭМП НЧ наблюдается изменение полос поглощения в интервалах от 3000 до 3625, от 1575 до 1625, и от 500 до 800, что может быть связано с изменением состояния молекул аминокислоты в растворе.
При облучении ЭМП различной частоты раствора глицина с концентрацией, не влияло на вид ИК-спектров, что свидетельствует о невосприимчивости растворов глицина к данным параметрам МП. Механизмы действия слабых МП на аминокислоты в настоящее время мало изучены. Предложенная кластерная гипотеза механизма действия слабых ЭМП в водных растворах аминокислот предусматривает вероятность реализации динамических состояний типа «кластерного взрыва». Выброс энергии в диссипативной системе раствора, наступающий при согласованной потери устойчивости полиионных кластеров, может являться следствием резонансного действия слабого переменного поля. В этих условиях вероятность преобразования электрической энергии, аккумулированной в кластерах, в энергию устойчивых межмолекулярных связей.
Время обработки растворов было в диапазоне от 3 до 15 мин в результате было обнаружено что ярко выраженные пики появляются при времени обработки от 7 до 11 мин этот факт говорит в пользу теории об образовании полиионных кластеров в структуре растворителя. Эти кластеры имеют неустойчивую структуру и распадаются в течении небольшого промежутка времени тем самым создавая огромное количество свободных радикалов, которые в дальнейшем благодаря неспаренному электрону способны вступать во взаимодействие с молекулой ДНК и вследствие чего разрушать ее как было показано в работах ранее. В экспериментах при анализе изменений в растворах ДНК с помощью спектрофотометра были получены несколько спектров флюоресценции при частотах облучения растворов от 4 до 10 Гц наблюдался почти прямолинейный рост интенсивности флуоресценции от температуры, однако дальнейшее увеличение частоты приводило к потери прямолинейной зависимости.
Длина волны испускания 310 нм отличалась от длины волны возбуждения что вполне ожидаемо так как основным очагом флуоресцентных процессов является дистиллированная вода, а ее длина волны испускания равна 310 нм при длине волны возбуждения 300 нм. Таким образом методом флюоресценции с раствором ДНК начали происходить излучательные процессы максимум интенсивности которых наблюдался при частоте облучения раствора 10 Гц. Можно предположить, что пик интенсивности появляется в результате возбуждения уровней электронных орбиталей ДНК и появлении резонанса на частоте 10 Гц.
На ИК - спектрах растворов ДНК облученных на частотах от 7 до 9,2 Гц с шагом 0,2 Гц при температуре 4 °С можно наблюдать только два сильно выраженных пика в на частотах 450 см-1 и 1088 см-1, что соответствует областям крутильных и деформационных колебаний молекул воды. Кроме того оба пика были получены при спектроскопии раствора облученного на частоте 8,4 Гц. Ранее в самых первых работах в области изучения действия СМП на аминокислоты Новиковым, Либовым и д.р. была предложена модель ионноциклотронного резонанса в своих экспериментах они установили частоту ионноциклотронного резонанса. Для аминокислот эта частота была 8,4 Гц. Тот же основной пик при частоте 8,4 Гц можно наблюдать и при температуре в 23 °С, но уже с большей интенсивностью. Также уширение пиков на всех остальных частотах.
Заключение
Основные результаты дипломной работы состоят в следующем:
1 Изучены достоинства и недостатки ИК - спектроскопии и флюоресценции при анализе биологических объектов. При ИК - спектроскопии происходят тепловые колебания молекул (вращательные деформационные и крутильные), при флуоресцентном анализе происходит переизлучательные с атомных орбиталей.
Изучены четыре основные теории влияния ЭМП НЧ на объекты белковых структур и ДНК, а именно: формирование водных кластеров, ионно-циклотронный резонанс, образование свободных радикалов или перекиси водорода, образование активных форм кислорода.
Исследованы зависимости отклика водных растворов
ДНК на действие электромагнитного поля с различными заданными параметрами
облучения (частота, амплитуда). Получены ИК - спектры доказывающие
существование резонансной ионноциклотронной частоты в растворах ДНК. На
спектрах флуоресценции растворов обработанных ЭМП НЧ наблюдается почти линейная
зависимость с максимумом при частоте 10 Гц, что связано скорее всего связано с
накопление энергии в кластерных полиионных образований в структуре
растворителя.
Список использованных источников
1 Молекулярная биология клетки в 3 - х томах / Б. Альбертс, Д. Брей, Дж. Льюис и др. - М.: Мир, 1994. - 517 c.
DNA waves and water / L. Montagnier, J. Aissa, E. Del Giudice etc. // Journal of Physics: Conference Series. - 2011. - Vol. 306. - P. 1 - 10.
Electromagnetic Signals Are Produced by Aqueous Nanostructures Derived from Bacterial DNA Sequences / L. Montagnier, J. Aissa, S. Ferris etc. // Interdiscip Sci Comput Life Sci. - 2009. - Vol. 1. - P. 81 - 90.
4 Новиков В. В. Конденсация аминокислот в водных растворах при действии слабых электромагнитных полей / В. В. Новиков, А. С. Лисицын // Биофизика. - 1996. - Т. 41. - № 6. - С. 1163 - 1167.
Новиков В. В. Комбинированное действие слабых постоянного и переменного низкочастотного магнитных полей на ионные токи в водных растворах аминокислот / В. В. Новиков, М. Н. Жадин // Биофизика. - 1994. - Т. 39. - № 1. - С. 49 - 50.
Новиков В. В. Индуцирующее действие слабых магнитных полей на образование межмолекулярных связей в водных растворах аминокислот / В. В. Новиков // Биофизика. - 1994. - Т. 39. - № 5. - С. 825-830.
Влияние слабых магнитных полей на свойство ряда белков и полиаминокислот образовывать комплексы с ДНК / В. В Новиков, В. В. Кувичкин, Н. И. Новиков и др.// Биофизика. - 2000. - Т. 45. - № 2. - С. 240 - 244.
Молекулярные механизмы биологического действия слабых магнитных полей. II. Выделение и характеристика ингибирующего ДНКАЗУ I белка хроматина мозга крыс / Ю. П. Щвецов, Г. Н. Смирнова, В. В. Новиков и др. // Биофизика. - 1997. - Т. 42. - № 3. - 738 - 741.
Молекулярные механизмы биологического действия слабых магнитных полей. I. Устойчивость хроматина клеток асцитной карциномы Эрлиха и мозга мышей к ДНКазе 1 при комбинированном действии на организм слабых постоянного и низкочастотного переменного магнитных полей, настроенных на циклотронный резонанс ионов полярных аминокислот / В. В. Новиков, Ю. П. Швецов, Е. Е. Фесенко и др. // Биофизика. - 1997. - Т. 42. - № 3. - С. 733 - 737.
10 Novikov V. V. Mechanism of action of week electromagnetic field on ionic currents in aqueous solution of amino acids / V. V. Novikov, A. V. Karnaoukhov // Bioelectromagnetics. - 1997. - Vol. 18. - P. 25 - 27.
11 Влияние когерентного электромагнитного излучения миллиметрового диапазона на некоторые свойства растворов ДНК / Ю. С. Бабаян, А. А. Тадевосян, Г. Л. Канарян и др. // Биомедицинская радиоэлектроника. - 2009. - № 2. - С. 52 - 56.
Некоторые физико - химические свойства ДНК, облученной низкоэнергетическими миллиметровыми когерентными электромагнитными волнами / Ю. С. Бабаян, С. Н. Акопян, Р. С. Казарян и др. // Биомедицинские технологии и радиоэлектроника. - 2006. - № 11. - С. 64 - 68.
Воздействие низкоэнергетического миллиметрового электро- магнитного излучения на стабильность молекул ДНК в растворе / Ю. С. Бабаян, А. Ш. Маркарян, В. П. Калантарян и др. // Биофизика. - 2007. - Т. 52. - № 2. - С. 382 - 384.
Взаимодействие оснований ДНК с молекулами воды. Сравнение результатов расчетов методами молекулярной механики и квантовой механики с экспериментальными данными / Э. Гонсалес, Х. Лино, А. Дерябина и др. // Биофизика. - 2013. - Т. 58. - № 5. - С. 748 - 757.
15 DNA fragmentation in human fibroblasts under extremely low frequency electromagnetic field exposure / F. Focke, D. Schuermann, N. Kuster etc. // Mutat Res. - 2010. - Vol. 683. - P. 74 - 83.
Evaluation of genitoxoc effect of low level 50 Hz magnetic fields on human blood cells using different cytogenetic assays. / A. Testa, E. Codelli, L. Stronati etc. // Bioelectromagnetics. - 2004. - Vol. 25. - № 8. - P. 613 - 619.
Chromosomal aberrations in human amniotic cells after intermittent exposure to fifty hertz magnetic fields. / I. Nordenson, K. Mild, G. Anderson etc. // Bioelectromagnetics. - 1994. - Vol. 15. - P. 293 - 301.
Hardell L. Biological effects from electromagnetic field exposure and public exposure standards. / L. Hardell, C. Sage. // Biomed Pharmacotherapy. - 2008. - Vol. 62. - P. 104 - 109.
Effects of high ELF magnetic fields on enzyme catalyzed DNA and RNA synthesis in vitro and on a cell- free DNA mismatch repairs. / S. Harada, S. Yamada, O. Kuramata etc. // Bioelectromagnetics. - 2001. - Vol. 22. - P. 260 - 266.
Effects of environmental level magnetic field exposures on transcription of CMV immediate early promoter DNA in a cell free in vitro transcription system. / H. Miki, M. Ohmori, E. Hrakawa etc. // Bioelectromagnetics. - 1999. - Vol. 20.
- P. 519 - 521.
Новиков В.В. Влияние слабых комбинированных постоянного переменного низкочастотного магнитных полей на собственную флуоресценцию ряда белков в водных растворах / В.В. Новиков, В.В. Кувичкин, Е.Е. Фесенко // Биофизика. - 1999. - Т. 44. - В. 2. - С. 224 - 230.
Лобышев В.И. Спонтанные и индуцированные внешними электромагнитными полями долговременные переходные процессы в разбавленных водных растворах глицилтриптофана и воде / В.И. Лобышев, Б.Д. Рыжков, Р.Э. Шихлинская // Биофизика. - 1998. - T. 43. - В. 4. - С. 710 - 716.
Novikov V.V. Биологические эффекты и возможные мехнизмы биологического действия слабых и сверх слабых магнитных полей / V. V. Novikov, I. M. Sheiman, and E. E. Fesenko // Bioelectromagnetics. - 2008 - Т. 29. - В. 5. - Р. 387 - 393.