Материал: ДНК наномеханические роботы и вычислительные устройства (Попов), 2008, c.210
понимание того, что все генетические соединения получены из них и свойства генетического материала зависят только от них, позволило рассуждать по модулю нуклеотидов и аминокислот, не вдаваясь в их химическое устройство. Соответственно появление наноузлов дает возможность вести рассуждения по модулю этих новых структур.
В работах [57] – [59] описаны исследования по наноузлам и нанорешеткам, не сохраняющим геометрическую форму. Благодаря исследованиям [60] – [70] удалось синтезировать нанорешетки, которые могут сохранять геометрическую структуру.
Исследования [71] – [78] направлены на построение нанорешеток с сложной топологической структурой и разработку технологий, позволяющих из одинаковых нуклеотидных последовательностей получать нанорешетки с различной топологией.
В частности, в рамках исследований, связанных с изменением топологической структуры последовательностей ДНК и РНК, обнаружены молекулы DNA topoisomerase, которые позволяют осуществлять такие изменения формы нанорешеток,
которые невозможно осуществить без разрыва уже существующих связей (см. [74], [75]). К сожалению, на сегодняшний день нет какого-либо общего критерия, который позволял бы говорить о том, является ли та или иная последовательность ДНК топоизомеразой и если является, то какие топологические изменения она может стимулировать. Поэтому опираться в этом вопросе можно пока только на экспериментальные данные.
Известно, что одни и те же молекулы DNA topoisomerase могут осуществлять топологические преобразования в несколько различных топологических форм. В
частности, все взаимные преобразования между молекулами, представленные на рисунке 1, осуществляются при помощи Type I DNA topoisomerase [74].
31
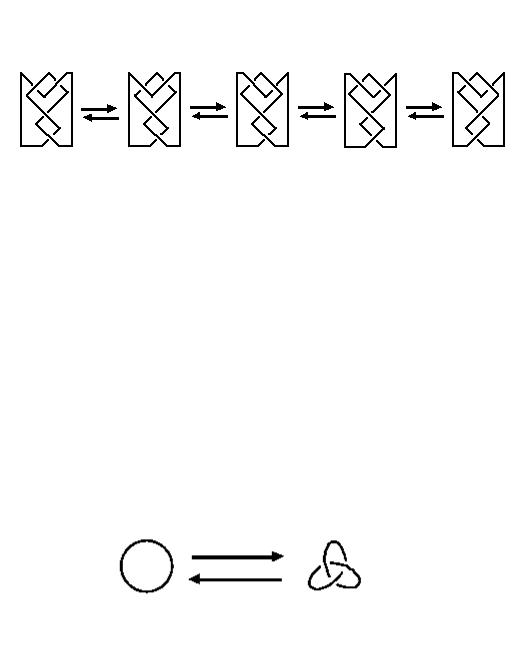
Рис.1. Взаимные преобразования между молекулами, осуществляющиеся при помощи Type I DNA topoisomerase [74].
В одной и той же молекуле может быть несколько различных видов DNA topoisomerase. При этом некоторые из топологических преобразований могут быть выполнены только молекулами фиксированного типа. Например, преобразование,
представленное на рисунке 2, может быть осуществлено при помощи E. coli DNA
Topoisomerase III, но его нельзя выполнить при помощи E. coli DNA Topoisomerase I
(см. [75]).
Рис.2. Топологическое преобразование, которое может быть осуществлено при помощи E. coli DNA Topoisomerase III, но нельзя выполнить при помощи E. coli DNA
Topoisomerase I (см. [75]).
Следует отметить, что, хотя многие свойства биологических последовательностей можно получить из их линейной структуры посредством изучения
32
отдельных участков и получения свойств отдельных генов, имеются примеры,
указывающие на то, что это не всегда так. Весьма близкие последовательности могут выполнять совершенно разные функции (см., например, [79] – [83]). В то же время принципиально различные последовательности могут выполнять одинаковые функции
(см., например, [84] – [88]). Одной из основных причин этого является то, что линейная структура биологических последовательностей не отражает их трехмерных свойств,
которые несут достаточно важную смысловую нагрузку: на уровне трехмерных структур могут наблюдаться мутации (см., например, [89] – [91]); трехмерные структуры имеют непосредственное отношение к склонности и сопротивляемости болезням, в частности, это справедливо по отношению к болезни Альцгеймера [92].
Таким образом, исследования по использованию молекул DNA topoisomerase
представляют интерес не только с точки зрения конструирования нанорешеток с заданными свойствами, но и для конструирования различных медицинских нанороботов. Кроме того, для нанотехнологий молекулы DNA topoisomerase
представляют интерес как инструмент, позволяющий разрывать связи между нуклеотидами. В частности, это можно использовать при проектировании наноустройств на основе принципа свободной энергии.
Серия работ [93] – [104] направлена на создание хорошо масштабируемых нанорешеток с периодически повторяющимися свойствами. Для отдельных типов масштабируемых решеток с периодически повторяющимися свойствами [105]
предложена технология, позволяющая произвольным образом модифицировать их базовую структуру [106]. В исследованиях [39], [107], [108] акцент сделан на создании нанорешеток со сложной нерегулярной структурой. В [109] проводились исследования по созданию нанорешеток, сохраняющих не только взаимное расположение нуклеотидов, но и заданную трехмерную форму, а также, по разработке технологий,
позволяющих регистрировать трехмерную форму нанорешеток.
Другим важным строительным материалом для создания наномеханических устройств являются искусственно синтезированные молекулы, отдельные части которых обладают физическими свойствами различных молекул, что позволяет получить молекулу, способную проявлять свойства нескольких молекул одновременно
(см., в частности, [110] – [116]). В частности, в [52] предложено устройство,
33
конструктивными элементами которого являются и нанорешетки, и молекулы,
проявляющие одновременно свойства ДНК и РНК.
Еще одно направление в области создания материалов для наномеханических устройств связано с использованием модифицированных нуклеотидов и аминокислот.
У этого пути есть очевидное преимущество, заключающееся в расширении спектра доступных материалов и получении материалов с новыми свойствами, и не менее очевидный недостаток – мы не знаем новых свойств новых материалов. До некоторой степени с получением модифицированных или новых нуклеотидов и аминокислот помогает сама Природа. Хорошо устоявшуюся формулу, согласно которой в ДНК используются четыре вида нуклеотидов, в РНК используются четыре вида нуклеотидов, в белках используется 20 видов аминокислот, нельзя считать абсолютно верной, поскольку есть и другие виды нуклеотидов и аминокислот. Как и в большинстве «хороших» правил, в универсальном генетическом коде есть исключения.
При этом под исключениями мы понимаем кодирование, являющееся стандартным для того или иного вида организмов, но отличающееся от универсального. Следует отметить, что кроме исключений могут наблюдаться также аномалии: изменения в коде, связанные с мутациями и механизмами их подавления. На сегодняшний день различных исключений в генетическом коде известно достаточно много. Наиболее типичные из них связаны с изменениями значений кодонов: кодоны могут кодировать другую аминокислоту; кодоны могут кодировать не только свою аминокислоту, но и начало считывания белка и т.д. Кроме исключений, связанных с изменением значений,
есть и более серьезные. Например, кодон ACT при определенном контексте может быть не Stop-кодоном, а кодом аминокислоты селеноцистеин, которой в стандартном списке из двадцати аминокислот нет (см., например, [117], [118]). Большое количество исключений и мутаций наблюдается и для нуклеотидов. В частности, интересным объектом в этом отношении является транспортная РНК. Транспортная РНК состоят примерно из 70-100 нуклеотидов. Однако при определенных условиях транспортная РНК может выступать в качестве фрагмента в последовательности, состоящей из многих сотен нуклеотидов. Для считывания универсальной кодовой таблицы достаточно 31 разновидности транспортной РНК. Тем не менее даже у бактерий 45
различных транспортных РНК. Для их кодирования используется 78 генов. У дрожжей
34
этих генов – около 400, у дрозофилы – около 750, у лягушки – около 8 000. Таким образом, Природа с большим запасом определяет не только количество различных видов транспортных РНК, но и количество способов их кодирования. Точное объяснение этой «щедрости» биологам еще предстоит найти. Однако это безусловно указывает на особую важность значения транспортной РНК для функционирования живых организмов, а также на высокую потребность в компенсации различных мутаций, наблюдающихся у транспортных РНК. Транспортная РНК считается наиболее изменчивой молекулой (см. [119], [120]). Причем изменениям подвержена не только последовательность нуклеотидов, но и сами нуклеотиды. Интересно отметить, что это свойство наблюдается практически для всех видов организмов вне зависимости от сложности их генома. Изменения в нуклеотидах для транспортной РНК настолько типичное явление, что для транспортной РНК имеет смысл рассматривать расширенный алфавит. Кроме четырех стандартных нуклеотидов A, U, C и G, в
транспортной РНК используются еще четыре: dihydrouridine (D), pseudouridine (P), ribosylthymine (T), inosine (I). Также в транспортных РНК встречается группа нуклеотидов methylation с общим обозначением M. Встречаются и другие модифицированные нуклеотиды. Структура транспортной РНК достаточно хорошо изучена. В работе [121] построена модель транспортной РНК, считающаяся на сегодняшний день общепризнанной. Эта модель состоит из 76 нуклеотидов.
Определенные позиции в транспортной РНК вне зависимости от ее разновидности всегда должны быть заняты нуклеотидами фиксированного вида (в противном случае молекула перестанет правильно функционировать). Имеется всего 27 таких позиций,
некоторые из которых обязательно должны быть заняты измененными нуклеотидами.
Таким образом, транспортная РНК не только существенно расширяет список доступных для использования нуклеотидов, но и указывает на то, что использование модифицированных нуклеотидов не обязательно препятствует использованию устройств в живых системах. Кроме того, в транспортной РНК можно наблюдать еще одно интересное свойство, связанное с принципом минимизации свободной энергии:
некоторые измененные нуклеотиды обладают отрицательной свободной энергией,
которая не только препятствует образованию слабой связи самим нуклеотидом, но и мешает соседям. Еще одним источником получения модифицированных нуклеотидов
35