Материал: микробиология ответы на экз агрономия
23. Брожения, вызываемые Clostridium и энтеробактериями. Ход и конечные продукты. Значение.
Бактерии рода Clostridium - палочковидные к-ки, подвижные, спорообраз. Грам+. Облигатные анаэробы. Хемоорганогетеротрофы. Сбраживают сахара, многоатомные спирты, аминок-ты, орг. к-ты, пурины и пиримидины, другие орг. соедин. Ряд видов фиксирует молекулярн. N атмосферы. Места обитания – почва, водоемы, пищеварит. тракт животн. и чел.
Группы сбраживания:
1гр.- сахаролитические виды, сбраживают растворим. углеводы, крахмал, пектин с образованием масляной и уксусной к-т, СО2 и Н2. Бактерии, вызывающие маслянокислое и ацетонобутиловое брожение: CI. butyricum, CI. pasteurianum, CI. turobyricum, Cl. acetobutulicum, CI. Butylicum. (Получение ацетона и бутанола).
2гр. - протеолитические виды, сбраживают аминок-ты. Способны к интенсивному гидролизу белков с последующим сбраживанием аминок-т. Рост в средах с белком сопровождается образованием аммиака, С02, Н2, жирных к-т и большого кол-ва др. летучих соедин., обладающих неприятным запахом. *Cl. sporogenes, Cl. perfringens, Cl. histolyticum, Cl. botulinum и др. Многие представители сбраживающие аминок-ты, могут сбраживать и углеводы.
3гр. - виды сбраживающие азотсодержащие циклические соедин. — пурины и пиримидины. Пурины (гуанин, гипоксантин, ксантин и др.) под влиянием Cl. acidiurici и Cl. cylindrosporum превращаются в аммиак, уксусную к-ту и СО2. Пиримидины сбраживаются Cl. uracilicum и Cl. oroticum; урацил распадается до бета-аланина, С02 и NH3, а оротовая к-та — до уксусной к-ты, СО2 и NH3.
4гр.- вид Cl. kluyveri, сбраживающий смесь этилового спирта и уксусной к-ты с образованием масляной и капроновой к-т, а также небольшого кол-ва Н.
24. Нитрификация. Возбудители, их особенности, химизм процесса, значение этих процессов в природе и с/х.
Нитрификация – аммиак, образующийся в почве, навозе и воде при разложении орг. в-в, быстро ок-ся до азотистой, а затем до азотной к-ты (аэробн. процесс).
Пастер первым предположил, что образование нитратов – микробиологический проц.
1890-1892 гг Виноградский изолировал чистые к-туры нитрификатов.
Нитрификаторы – хемолитоавтотрофы используют энергии ок-ния аммиака и азотистой к-ты для синтеза. Две фазы нитрификации: 1) Используя О воздуха, бактерии ок-ют аммиак до азотистой к-ты. NH4+ —>NO2- 2) Азотистую до азотной. NO2- —>NO3- Осущ. Nitrobacteriaceae (однокл., Грам – (отриц.) бактерии) – Nitrosomonas, Nitrobacter
Источник азота для нитрифицирующих – аммиак, гидроксиламин, нитриты.
(аэробные условия, развиваются pH 6-8,6, pH , (оптим.) 7,5-8, t(оптим.) = 25-30 0С) – облигатные аэробы
Осуществляется на ЦП и ВЦП* мембрана
*Внутрицитоплазматических мембранах
Нитрификаты осущ. фиксацию СО2 через восст. пентозофосфатный цикл (цикл Кальвина) => обр. не только у-в, но и др. соединения – белки, нукл. к-ты, жиры и т.д.
В природе развив-ся в черноземах, навозе, компостах, в местах, где содерж. много орг. в-ва.
Соли азотной к-ты легко вымываются из почвы; восст. в результате денитрофикации до N2=> обеднение почвы.
Ингибиторы нитрификации (нитропилин) подавляют первую фазу => эффективность азотных удобрений повышается с 50 до 80%. Гетеротрофное нитрификации осущ. бактериями с гетеротрофным типом пит., вызывают образования и накопления токсичных в-в, канцерогенов, мутагенов. Нитрифицируют амиды, амины, гидроксамовые к-ты, нитросоединения, оксимы и др. Не служит источником энергии. Значение нитрификаторов в с/х: лучшим источником азотистого питания для растений явл. нитраты, котор. и накапливаются в почве в результате деятельности нитрифицирующих бактерий.
В природе: часто встречаются в условиях, где жизнь кажется невозможной, *на гранитах и голых скалах (участвуют в выветривании горных пород благодаря разрушающему действию образуемой ими азотной кислоты).
Развиваясь на кирпичных стенах зданий, нитрифицирующие бактерии могут разрушать кирпичную кладку. Немалая роль принадлежит им, по-видимому, и в разрушении подводных частей бетонных сооружений.
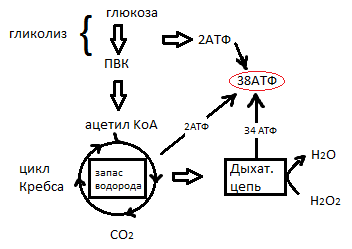
2)-ок-ние освобождающихся атомов Н кислородом с образованием АТФ. Обе фазы совместно ведут к ок-нию субстрата до СО2 и Н2О и образованию биологически полезной энергии в виде АТФ и др.
Три основных этапа дыхания:
I) Универсальный (гликолиз):
С6Н12О6 → 2СН3СОСООН + 2НАД•Н2 + 2АТФ
Результат –2ПВК, Ок-восст НАДФ, 2АТФ
II) Цикл Кребса. Происходит последовательное отщепление трех углеродных атомов от пировиноградной к-ты. В результате ферментативного декарбоксилирования образутся три м-лы СО2 и восстанавливаются пять дегидрогеназ (на каждую триозу). При распаде одной м-лы глюкозы в гликолизе образуется 2 м-лы ПВК, следовательно все коэф. ур-ния умножаются на два. Суммарное уравнение цикла Кребса выглядит так:
2 х (СН3СОСООН + 3Н2О → 3СО2 + 4НАД•Н2 + 1ФАД•Н2 + 1АТФ)
III) Собственная аэробная фаза – проходит в ЭТЦ (электронтранспортная цепь) по схеме:
10 НАД•Н2 + 2ФАД•Н2 + О2 ® 10 НАД + 2ФАД + 12Н2О+ Е
Суть третьей фазы - передаче Н дегидрогеназ (НАД и ФАД) на кислород (О2) по дыхательной (электротранспортной) цепи - ЭТЦ. Компоненты ЭТЦ располагаются в мембранах в порядке увеличения окис-ного потенциала.
В трех местах этой цепи выделяется энергии столько, что становится возможным синтез макроэргической связи АТФ. При полном ок-нии НАД•Н2 образуется 3 м-лы АТФ. При полном ок-нии ФАД•Н2 - 2 м-лы АТФ.
К моменту завершения второй фазы дыхания в наличии имеется 10 молекул НАД•Н2 (8 образовались на этапе цикла Кребса, 2 – из гликолиза), 2 молекулы ФАД•Н2 (образовались в цикле Кребса). Произведем простой расчет энергетического выхода аэробной фазы дыхания:
1 моль НАД•Н2 эквивалентен 3 моль АТФ, следовательно при полном ок-нии 10 НАД•Н2 х 3 АТФ образуется 30 АТФ;
При полном ок-нии 1 моль ФАД•Н2 образуется 2 моль АТФ, отсюда получается: 2 ФАД•Н2 х 2 АТФ = 4 АТФ. Всего в ЭТЦ образуется 34 моль АТФ. К ним прибавляется 2 м-лы АТФ из цикла Кребса и 2 м-лы - из гликолиза. Итого – 38 АТФ – результат полного ок-ния одной м-лы глюкозы.
аэробами полезно используется около 50 % энергии и около 50 % теряется в виде тепла.
25. Ферменты. Экзо- и эндоферменты.
Ферменты – биологические катализаторы.
Катализуют хим. р-ции из котор. слагается катаболизм м/о.
Ферменты – глобулярные белки, молек. массой от 10000 до неск-ких миллионов. Название ферменту дают по в-ву, на котор. он действует.
Классификация:
1 Оксиредуктазы - катализуют ок-восст. р-ции, играют большую роль в процессе биологического получения энергии.
*Дегидрогеназы (НАДФ,НАД,ФАД)
Цитохромы
2 Трансферазы - катализуют перенос отдельных радикалов, частей м-л или целых атомных группировок от одних соединений к другим. *Ацетилтрансферазы – перенос остатков ацетата – СH3COOH.
3 Гидролазы - катализуют р-ции расщепления и синтеза белков,жиров,полисахаридов с участием воды.
*Протеолитические белки, действующие на белки или пептиды.
4 Лиазы - отщепление от субстратов опр. хим. групп с образованием двойных связей.
*Пируватдекарбоксилаза катализует отщепление СО2 от пирувата.
СН3СООН (пируват) СН3СОН (ацетальдегид) + СО2
5 Изомеразы - превращение орг. соединений в их изомеры. Изомеризации подвергаются у-в, орг. к-ты, аминок-ты.
*Триозофосфатизомераза
6 Лигазы - синтез сложных орг. соединений из простых.
*Карбоксилазы – присоединение СО2 к орг. к-там.
Строение:
1 Простые белки - Гидролитические ферменты
2 Сложные белки - ферменты, управляющие ок-нием и участвующие в р-циях переноса различных орг. групп.
Имеют боковую часть – апофермент, и небоковую – кофактор ( опр. активность фермента)
Свойства:
1 Увеличивают скорость р-ции, но сами не расходуются
2 Их присутствие не влияет на природу и св-ва конечного продукта р-ции.
3 Незначительное кол-во фермента вызывает превращение больших кол-в субстрата.
4 Активность ферментов опр. р-цией среды, t, давлением и конц.
Эндоферменты – ферменты,содерж. в к-ке орг. и участвующие в метаболизме .
Экзоферменты – ферменты, выделяющиеся к-ми м/о в окр. среду (гидролитические ферменты).
26. Превращение м/о соединений азота. Значение.
Фиксация азота - атмосферный N фиксируют бактер. родов azotobacter, closeniolium, rhizobium, цианобактерии и др. М.о. ( фиксируемый N используют растения и превращают его в растительный белок).
Аммонификация белков и аминокислот – белки животных и растительных остатков разлагают в почве разнообр. м/о ( bacillus, clostridium). В результате образуются аминок-ты, затем дезаминирующиеся с выделением NH3 и др. соединения.
Нитрификация – аммиак ок-ют до нитритов бактерии рода Nitrosomonas , а нитриты до нитратов – рода Nitrobochter.
Денитрификация – нитраты восст. до газообразного N бактерии, главным образом Pseudonionas.
Аммонификация – при разложении белков и др. азотосодержащий соедин. в почве при участии м/о азот освобождается в виде аммиака. Белки подвергаются разложению аэробными и анаэробными бактер
Основные: сем. Pseuolomonadeccae, род Psendononas, сем. Bacillaceae, род Bacillus и род Clostridium, сем. Emerobacterioual, род Protcus.
При гидролизе простых белков образуют только аминок-ты сложных и аминок-ты др. орг. и неорг. соедин.
Четыре пути расщепления аминок-т: дезаминирование, ок-ное дезаминирование, восст-ное дезаминирование, декарбоксилирование.
27. Структура микробных сообществ почв различных типов и факторы, определяющие ее формирование. Группировки м/о в зависимости от условий почвообразования могут быть различно развиты и представлены специфическими родами и видами. Это дает хар-ку типу почвы. Воздействие чел-ка также сказывается на ее св-вах как среды обитания м/о, и приемы окультуривания налагают на состав микробного ценоза свой отпечаток. Хар-ер данных сдвигов позволяет создать микробиологическую диагностику сост. почвы. Даже за короткие промежутки времени число м/о в почве может изменяться - следствие динамики t и влажности почвы, состояния растительного покрова и т.д. Почти во всех почвах наблюдается большая или меньшая активизация деятельности м/о весной (обогащение почв отмершей за осенне-зимний период растительностью и их увлажненность). Микробиологич. анализы дают условные показатели, но при использовании одной и той же методики для изучения разных почв получают вполне сопоставимые результаты. Все использованные методы (прямое микроскопирование и посев на разные пит. среды) свидетельствуют о большем богатстве микробами южных почв. По мере перехода от более холодного северного климата к южному микронаселение почв все более возрастает, и потому в южных почвах микробиологичю проц. протекают более энергично. Существенно различны в них и соотношения отдельных групп м/о. С углублением в почву кол-во м/о постепенно уменьшается и меняется их состав. Северные почвы, имеющие кислую р-цию, наиболее богаты грибами. Подобно бациллам, стрептомицеты бедно представлены в северных почвах, но в южных почвах их численность резко возрастает. В почвах северной зоны спорообразующих бактерий и актиномицетов значительно меньше, чем в южных. При окультуривании в микробном ценозе отмечаются существенные изменения. Увелич-тся численность микробного населения, и в ценозе появл. орг., свойственные более южной почвенной зоне. Об этом свидетельствует пример с целлюлозоразлагающими м/о, сост. котор. резко меняется при внесении удобрений. М/о можно использовать для анализа типа и сост. почвы.