Материал: Структура и функция синапса. Классификации синапсов. Химический синапс, медиатор
Углеводы нейронов являются основным источником энергии для них. Глюкоза, поступая в нервную клетку, превращается в гликоген, который при необходимости под влиянием ферментов самой клетки превращается вновь в глюкозу. Вследствие того что запасы гликогена при работе нейрона не обеспечивают полностью его энергетические траты, источником энергии для нервной клетки служит глюкоза крови.
Глюкоза расщепляется в нейроне аэробным и анаэробным путем. Расщепление идет преимущественно аэробным путем, этим объясняется высокая чувствительность нервных клеток к недостатку кислорода. Увеличение в крови адреналина, активная деятельность организма приводят к увеличению потребления углеводов. При наркозе потребление углеводов снижается.
В нервной ткани содержатся соли калия, натрия, кальция, магния и др. Среди катионов преобладают К+, Na+, Mg2+, Са2+; из анионов - Сl-, НСОз-. Кроме того, в нейроне имеются различные микроэлементы (например, медь и марганец). Благодаря высокой биологической активности они активируют ферменты. Количество микроэлементов в нейроне зависит от его функционального состояния. Так, при рефлекторном или кофеиновом возбуждении содержание меди, марганца в нейроне резко снижается.
Обмен энергии в нейроне в состоянии покоя и возбуждения различен. Об этом свидетельствует значение дыхательного коэффициента в клетке. В состоянии покоя он равен 0,8, а при возбуждении - 1,0. При возбуждении потребление кислорода возрастает на 100%. После возбуждения количество нуклеиновых кислот в цитоплазме нейронов иногда уменьшается в 5 раз.
Собственные энергетические процессы нейрона (его сомы) тесно связаны с трофическими влияниями нейронов, что сказывается прежде всего на аксонах и дендритах. В то же время нервные окончания аксонов оказывают трофические влияния на мышцу или клетки других органов. Так, нарушение иннервации мышцы приводит к ее атрофии, усилению распада белков, гибели мышечных волокон.
Классификация нейронов.
Существует классификация нейронов, учитывающая химическую структуру выделяемых в окончаниях их аксонов веществ: холинергические, пептидергические, норадреналинергические, дофаминергические, серотонинергические и др.
По чувствительности к действию раздражителей нейроны делят на моно-, би-, полисенсорные.
Моносенсорные нейроны. Располагаются чаще в первичных проекционных зонах коры и реагируют только на сигналы своей сенсорности. Например, значительная часть нейронов первичной зоны зрительной области коры большого мозга реагирует только на световое раздражение сетчатки глаза.
Бисенсорные нейроны. Чаще располагаются во вторичных зонах коры какого-либо анализатора и могут реагировать на сигналы как своей, так и другой сенсорности. Например, нейроны вторичной зоны зрительной области коры большого мозга реагируют на зрительные и слуховые раздражения.
Полисенсорные нейроны. Это чаще всего нейроны ассоциативных зон мозга; они способны реагировать на раздражение слуховой, зрительной, кожной и других рецептивных систем.
Нервные клетки разных отделов нервной системы могут быть активными вне воздействия - фоновые, или фоновоактивные (рис. 2.16). Другие нейроны проявляют импульсную активность только в ответ на какое-либо раздражение.
Фоновоактивные нейроны делятся на тормозящиеся - урежающие частоту разрядов и возбуждающиеся - учащающие частоту разрядов в ответ на какое-либо раздражение. Фоновоактивные нейроны могут генерировать импульсы непрерывно с некоторым замедлением или увеличением частоты разрядов - это первый тип активности - непрерывно-аритмичный. Такие нейроны обеспечивают тонус нервных центров. Фоновоактивные нейроны имеют большое значение в поддержании уровня возбуждения коры и других структур мозга. Число фоновоактивных нейронов увеличивается в состоянии бодрствования.
Нейроны второго типа выдают группу импульсов с коротким межимпульсным интервалом, после этого наступает период молчания и вновь возникает группа, или пачка, импульсов. Этот тип активности называется пачечным. Значение пачечного типа активности заключается в создании условий проведения сигналов при снижении функциональных возможностей проводящих или воспринимающих структур мозга. Межимпульсные интервалы в пачке равны приблизительно 1- 3 мс, между пачками этот интервал составляет 15-120 мс.
Третья форма фоновой активности - групповая. Групповой тип активности характеризуется апериодическим появлением в фоне группы импульсов (межимпульсные интервалы составляют от 3 до 30 мс), сменяющихся периодом молчания.
Функционально нейроны можно также разделить на три типа: афферентные, интернейроны (вставочные), эфферентные. Первые выполняют функцию получения и передачи информации в вышележащие структуры ЦНС, вторые - обеспечивают взаимодействие между нейронами ЦНС, третьи - передают информацию в нижележащие структуры ЦНС, в нервные узлы, лежащие за пределами ЦНС, и в органы организма.
Функции афферентных нейронов тесно связаны с функциями рецепторов.
. Структура и функции синапса
Синапсами называются контакты, которые устанавливают нейроны как самостоятельные образования. Синапс представляет собой сложную структуру и состоит из пресинаптической части (окончание аксона, передающее сигнал), синаптической щели и постсинаптической части (структура воспринимающей клетки).
Классификация синапсов. Синапсы классифицируются по местоположению, характеру действия, способу передачи сигнала.
По местоположению выделяют нервно-мышечные синапсы и нейро-нейрональные, последние в свою очередь делятся на аксо-соматические, аксо-аксональные, аксодендритические, дендро-соматические.
По характеру действия на воспринимающую структуру синапсы могут быть возбуждающими и тормозящими.
По способу передачи сигнала синапсы делятся на электрические, химические, смешанные.
Характер взаимодействия нейронов. Определяется способом это взаимодействия: дистантное, смежное, контактное.
Дистантное взаимодействие может быть обеспечено двумя нейронами, расположенными в разных структурах организма. Например, в клетках ряда структур мозга образуются нейрогормоны, нейропептиды, которые способны воздействовать гуморально на нейроны других отделов.
Смежное взаимодействие нейронов осуществляется в случае, когда мембраны нейронов разделены только межклеточным пространством. Обычно такое взаимодействие имеется там, где между мембранами нейронов нет глиальных клеток. Такая смежность характерна для аксонов обонятельного нерва, параллельных волокон мозжечка и т. д. Считают, что смежное взаимодействие обеспечивает участие соседних нейронов в выполнении единой функции. Это происходит, в частности, потому, что метаболиты, продукты активности нейрона, попадая в межклеточное пространство, влияют на соседние нейроны. Смежное взаимодействие может в ряде случаев обеспечивать передачу электрической информации от нейрона к нейрону.
Контактное взаимодействие обусловлено специфическими контактами мембран нейронов, которые образуют так называемые электрические и химические синапсы.
Электрические синапсы. Морфологически представляют собой слияние, или сближение, участков мембран. В последнем случае синаптическая щель не сплошная, а прерывается мостиками полного контакта. Эти мостики образуют повторяющуюся ячеистую структуру синапса, причем ячейки ограничены участками сближенных мембран, расстояние между которыми в синапсах млекопитающих 0,15-0,20 нм. В участках слияния мембран находятся каналы, через которые клетки могут обмениваться некоторыми продуктами. Кроме описанных ячеистых синапсов, среди электрических синапсов различают другие - в форме сплошной щели; площадь каждого из них достигает 1000 мкм, как, например, между нейронами ресничного ганглия.
Электрические синапсы обладают односторонним проведением возбуждения. Это легко доказать при регистрировании электрического потенциала на синапсе: при раздражении афферентных путей мембрана синапса деполяризуется, а при раздражении эфферентных волокон - гиперполяризуется. Оказалось, что синапсы нейронов с одинаковой функцией обладают двусторонним проведением возбуждения (например, синапсы между двумя чувствительными клетками), а синапсы между разнофункциональными нейронами (сенсорные и моторные) обладают односторонним проведением. Функции электрических синапсов заключаются прежде всего в обеспечении срочных реакций организма. Этим, видимо, объясняется расположение их у животных в структурах, обеспечивающих реакцию бегства, спасения от опасности и т. д.
Электрический синапс сравнительно мало утомляем, устойчив к изменениям внешней и внутренней среды. Видимо, эти качества наряду с быстродействием обеспечивают высокую надежность его работы.
Химические синапсы. Структурно представлены пресинаптической частью, синаптической щелью и постсинаптической частью. Пресинаптическая часть химического синапса образуется расширением аксона по его ходу или окончания. В пресинаптической части имеются агранулярные и гранулярные пузырьки (рис.1). Пузырьки (кванты) содержат медиатор. В пресинаптическом расширении находятся митохондрии, обеспечивающие синтез медиатора, гранулы гликогена и др. При многократном раздражении пресинаптического окончания запасы медиатора в синаптических пузырьках истощаются. Считают, что мелкие гранулярные пузырьки содержат норадреналин, крупные - другие катехоламины. Агранулярные пузырьки содержат ацетилхолин. Медиаторами возбуждения могут быть также производные глутаминовой и аспарагиновой кислот.
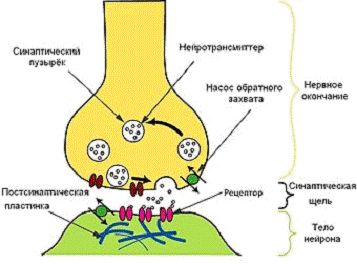
Рис. 1. Схема процесса передачи нервного сигнала в химическом синапсе.
. Химический синапс
Существо механизма передачи электрического импульса от одной нервной клетки к другой через химический синапс состоит в следующем. Электрический сигнал, идущий по отростку нейрона одной клетки, приходит в пресинаптическую область и вызывает выход из нее в синаптическую щель определенного химического соединения - посредника или медиатора. Медиатор, диффундируя по синаптической щели, достигает постсинаптической области и химически связывается с находящейся там молекулой, называемой рецептором. В результате этого связывания запускается ряд физико-химических превращений в постсинаптической зоне, в результате чего в ее области возникает импульс электрического тока, распространяющийся далее ко второй клетке.
Область пресинапса характеризуется несколькими важными морфологическими образованиями, играющими основную роль в его работе. В этой области находятся специфические гранулы - везикулы - содержащие то или иное химическое соединение, названное в общем случае медиатором. У этого термина чисто функциональный смысл, как, например, и у термина - гормон. Одно и тоже вещество можно отнести или к медиаторам, или к гормонам. Например, норадреналин необходимо называть медиатор, если он выделяется из визикул пресинапса; если же норадреналин выделяется в кровь надпочечниками, то в этом случае он называется гормон.
Кроме того, в зоне пресинапса находятся митохондрии, содержащие ионы кальция, и специфические структуры мембраны - ионные каналы. Включение работы пресинапса начинается в тот момент, когда в эту область приходит электрический импульс от клетки. Этот импульс приводит к тому, что внутрь пресинапса по ионным каналам входит в большом количестве кальций. Кроме того, в ответ на электрический импульс ионы кальция выходят из митохондрий. Оба эти процесса приводят к увеличению концентрации кальция в пресинапсе. Появление избыточного кальция приводит к соединению мембраны пресинапса с мембраной визикул, и последние начинают подтягиваться к пресинаптической мембране, в итоге выбрасывая свое содержимое в синаптическую щель.
Основной структурой постсинаптической области является мембрана участка второй клетки, контактирующая с пресинапсом. Эта мембрана содержит генетически детерминированную макромолекулу - рецептор, которая избирательно связывается с - медиатором. Эта молекула содержит два участка. Первый участок ответственен за узнавание «своего» медиатора, второй участок ответственен за физико-химические изменения в мембране, приводящие к возникновению электрического потенциала.
Включение работы постсинапса начинается в тот момент, когда в эту область приходит молекула медиатора. Центр узнавания «узнает» свою молекулу и связывается с ней определенным типом химической связи, которую можно наглядно представить в виде взаимодействия замка со своим ключом. Это взаимодействие включает работу второго участка молекулы, и ее работа приводит к возникновению электрического импульса.
Особенности проведения сигнала через химический синапс определяются особенностями его структуры. Во-первых, электрический сигнал от одной клетки передается к другой при помощи химического посредника - медиатора. Во-вторых, электрический сигнал передается только в одном направлении, что определяется особенностями строения синапса. В-третьих, существует небольшая задержка в проведении сигнала, время которой определяется временем диффузии медиатора по синаптической щели. В-четвертых, проведение через химический синапс можно блокировать различными способами.