Курсовая работа (т): Виды опыления растений
Виды опыления растений
Введение
Каждый организм, в том числе и растения, имеет способность к воспроизведению себе подобных, чем и обеспечивается существование вида в пространстве и во времени, иногда очень длительное. При потере способности к воспроизведению виды вымирают, что неоднократно имело место в ходе эволюции растительного мира.
Растения размножаются половым и бесполым путем. Половое размножение состоит в том, что сливаются две клетки, носящие название гамет, причем, кроме слияния протоплазм, для полового размножения обязательно слияние ядер. Таким образом, слияние ядер - наиболее важный этап полового процесса, иначе называемый оплодотворением.
Главную роль в размножении растений играет опыление. Опыление - это процесс переноса пыльцевых зерен с тычинок на рыльце пестика. Этот процесс может происходить с помощью разных факторов, как биотических, так и абиотических.
В данной работе мы рассмотрим определение опыления, его виды. Подробнее будет рассмотрено и изучено перекрестное опыление и морфологические адаптации растений к нему.
Цель курсовой работы - рассмотреть и изучить морфологические адаптации покрытосеменных растений к перекрестному опылению.
Задачи:
. Рассмотреть определение опыления.
. Изучить виды опыления.
. Рассмотреть более подробно перекрестное опыление.
. Рассмотреть морфологические адаптации
растений к перекрестному опылению.
Глава 1. Опыление как способ размножения
покрытосеменных растений
.1 Опыление как способ размножения
Опыление - это процесс переноса пыльцевых зерен с тычинки на рыльце пестика. Этот процесс может происходить с помощью разных факторов, как биотических, так и абиотических.
В классических работах по экологии опыления различают два понятия: автогамию, или самоопыление, при котором на рыльце попадает пыльца того же цветка, Если цветки находятся на одном растении, опыление называют гейтеногамией, если на разных - ксеногамией.
Резких различий между этими вариантами опыления нет. Гейтеногамия генетически эквивалентна автогамии, но требует участия тех или иных опылителей в зависимости от строения цветка. В этом отношении она сходна с ксеногамией. В свою очередь, ксеногамия может быть идентична автогамии, если опыляемые растения принадлежат одному клону, т.е. возникли вследствие вегетативного размножения одной материнской особи.
В связи с этим опыление сводят к двум типам:
автогамии, или самоопылению, и перекрестному опылению.
.2 Автогамия, или самоопыление
Этот тип опыления свойственен только обоеполым цветкам. Автогамия может быть случайной и регулярной.
Случайная автогамия - нередкое явление. Трудно перечислить все факторы, способствующие ее осуществлению. Важно только, чтобы была физиологическая совместимость пыльцевых зерен и рыльца пестика.
Регулярная автогамия может быть гравитационной,
если пыльцевое зерно в силу своей тяжести падает на рыльце из находящегося над
ним пыльника. Переносчиками пыльцевых зерен внутри цветка могут быть капли
дождя, мелкие насекомые - трипсы, поселяющиеся в цветке. Чаще всего встречается
контактная автогамия, при которой вскрывающийся пыльник соприкасается с рыльцем
пестика (копытень). Автогамия тесно связана с временным фактором и условиями
среды. У лобелии Дортманна (Lobelia dortmanna)
(см. рис. 1) она происходит перед цветением, хотя у нее развиваются хазмогамные
цветки с внешними атрибутами для привлечения опылителей.
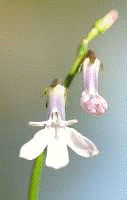
Рисунок 1 - Лобелия Дортманна (Lobelia
dortmanna)
У мышехвостника малого (MyosurusminimusL.)
(см. рис. 2) самоопыление происходит в первую половину цветения, позднее оно
невозможно. В цветках, в которых самоопыление осуществляется до цветения, часто
редуцируются те или иные элементы. Крайнюю степень такой редукции представляют
клейстогамные цветки.
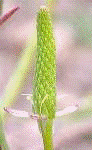
Рисунок 2 - Мышехвостникмалый(Myosurus minimus L.)
У кислицы(Oxalis)(см.
рис. 3) примерно через месяц после цветения, когда в их завязях уже развиваются
семена, появляются мелкие (до 3 мм) клейстогамные цветки с околоцветником в
виде мелких чешуек. Важная особенность клейстогамного цветка в том, что в нем
никогда не вскрываются пыльники, но из находящихся в них пыльцевых зерен
вырастают пыльцевые трубки, прободающие стенку пыльника и растущие в сторону
рыльца, нередко изгибаясь при этом. Рыльце часто находится на верхушке завязи,
столбика нет.
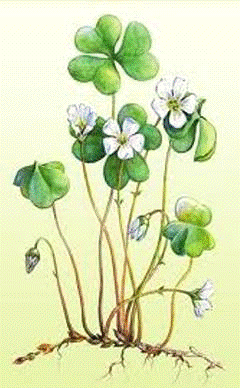
Рисунок 3 - Кислица обыкновенная (Oxalisacetosella)
Нередко клейстогамия имеет факультативный характер и появляется у растений только в определенных погодных условиях. Это встречается у частухи подорожниковой(Alismaplantago-aguatica), росянки, ковыля, у которого клейстогамные цветки развиваются при почвенной засухе и пониженной температуре. У пшеницы в теплую влажную погоду формируются хазмогамные цветки, а в засушливую и жаркую - клейстогамные.
В большинстве случаев клейстогамия возникает в
нестабильных условиях обитания, неблагоприятных для перекрестного опыления.
.3 Перекрестное опыление
Перекрестное опыление, или аллогамия, - тип опыления у покрытосеменных растений, при котором пыльца от андроцея одного цветка переносится на рыльце пестика другого цветка.
Различают две формы перекрестного опыления:
. Гейтоногамия (соседнее опыление) - опыление, при котором пыльца из цветка одного растения переносится на рыльце пестика другого цветка на том же растении;
. Ксеногамия - перекрестное опыление, при котором пыльца из цветка одного растения переносится на рыльце пестика в цветке другого растения.
С помощью перекрестного опыления осуществляется обмен генами, что поддерживает высокий уровень гетерозиготности популяции, определяет единство и целостность вида. При перекрестном опылении возрастают возможности рекомбинации генетического материала, образуются более разнообразные генотипы потомства в результате соединения наследственно разнообразных гамет, поэтому получается более жизнеспособное, чем при самоопылении, потомство с большей амплитудой изменчивости и приспособляемости к различным условиям существования. Т.о., перекрестное опыление биологически выгоднее самоопыления, поэтому оно закрепилось естественным отбором и стало господствующим в растительном мире. Перекрестное опыление существует у более 90% видов растений.
Перекрестное опыление может осуществляться как биотически (с помощью живых организмов), так и абиотических (посредством воздушных или водных потоков).
Перекрестное опыление осуществляется следующими способами:
а) Анемофилия (опыление с помощью ветра)
б) Гидрофилия (опыление с помощью воды)
в) Орнитофилия (опыление с помощью птиц)
г) Хироптерофилия (опыление с помощью летучих мышей)
д) Энтомофилия (опыление с помощью насекомых)
Глава 2. Морфологические адаптации растений к
перекрестному опылению.
.1 Анемофилия или опыление ветром
Ветроопыляемые растения чаще растут большими скоплениями, например, заросли орешника, березовые рощи. Рожь и кукурузу человек высевает на сотнях гектаров, а иногда и тысячах гектаров земли.
Летом над ржаным полем облаком поднимается цветочная пыльца. У ветроопыляемых растений созревает много пыльцы. Часть сухой и легкой пыльцы обязательно попадает на рыльца. Но большая часть пыльцы пропадает, не опыляя цветков. То же самое можно увидеть весной при цветении орешника, березы и других ветроопыляемых деревьев и кустарников. Ветром опыляются тополь, ольха, рожь, кукуруза и другие растения с невзрачными цветками.
Большинство деревьев, цветки которых опыляет ветер, цветет рано весной, до распускания листьев. Это обеспечивает лучшее попадания пыльцы на рыльца.
У растений, опыляемых ветром, не бывает ярких и
душистых цветков. Невзрачные, обычно мелкие цветки, пыльники на длинных
свисающих нитях, очень мелкая, легкая, сухая пыльца - все это приспособления к
опылению ветром.
.2 Гидрофилия или опыление водой
Гидрофилия имеет более древнее происхождение, поскольку считается, что первые высшие растения появились в воде. Однако большинство водных растений опыляется в воздухе, как и их наземные родственники. Для таких растений, как Nymphaea, Alisma и Hottonia, характерна энтомофилия, для Роtamogeton или Myriophyllum - анемофилия, а для Lobelia dortman - самоопыление. Но для опыления некоторых водных растений необходима водная среда.
Гидрофилия может происходить как на поверхности воды (эпгидрофилия), так и в воде (гипгидрофилия). Эти два типа опылений представляют собой дальнейшее развитие анемофилии или энтомофилии. Много мелких самоопыляющихся наземных растений могут цвести, будучи погруженными в воду; при этом функционирует механизм самоопыления, обычно заключенный в воздушном мешке внутри цветка. Наивысшую стадию такого развития представляют клейстогамные цветки.
Эпгидрофилия представляет собой уникальный вид абиотического опыления, поскольку в данном случае опыление происходит в двумерной среде. По сравнению с трехмерной средой, в которой происходят анемофилия или гипгидрофилия, этот вид опыления обеспечивает большую экономию пыльцы. При эпгидрофилии пыльца высвобождается из пыльников в воде и всплывает к поверхности, где находятся рыльца (Ruppia, Callitriche autumnalis). Пыльцевые зерна быстро распространяются по поверхностной пленке воды. В этом легко убедиться, наблюдая за цветущей Ruppia: маленькие желтые капли появляются на поверхности воды и быстро распространяются, подобно каплям жира; этому способствует маслянистый слой, покрывающий оболочку пыльцевого зерна.
Широко известен интересный случай опыления у Vallisneria, у которой вместо отдельных пыльцевых зерен на поверхность воды выходит весь мужской цветок; следовательно, пыльца даже не касается поверхности воды. Вокруг всплывающих женских цветков образуются небольшие воронки; плавающие рядом мужские цветки соскальзывают с края такой воронки к ее центру; при этом пыльники касаются рылец. В связи с таким эффективным способом опыления число пыльцевых зерен в мужских цветках сильно редуцировано. Механизмы типа «валлиснерия» обнаружены также у различных представителей Hydrocharitaceae, иногда, как, например, у Hydrilla, наряду с взрывающимися пыльниками. Подобный механизм опыления наблюдается и у Lemna trisulca, только на поверхность воды поднимается целиком все растение; а у Elodea при подобном механизме опыления на поверхность воды выносятся тычиночные цветки, которые частично прикреплены, а частично свободно плавают.
Гипгидрофилия описана для очень незначительного числа растений, например для Najas, Halophila, Callitriche hamulata и Ceratophyllum. Пока что их рассматривают просто как отдельные случаи, поскольку между ними, вероятно, мало общего, за исключением крайней редукции экзины. У Najas медленно опускающиеся пыльцевые зерна «ловятся» рыльцем.
Единица рассеивающейся пыльцы у Zostera имеет
2500 мкм в длину и гораздо больше напоминает пыльцевую трубку, чем пыльцевое
зерно. Будучи очень подвижной, она быстро обвивается вокруг какого-либо
объекта, встречающегося на пути, например, вокруг рыльца. Однако эта реакция
носит совершенно пассивный характер. Морфология пыльцевого зерна Zostera может
рассматриваться как крайний случай тенденции, которая, по-видимому, имеется и у
других гипгидрофильных растений: быстро растущая пыльцевая трубка обеспечивает
быстрое распространение пыльцевых зерен. У Cymodoceae описаны даже более
удлиненные пыльцевые зерна (5000 - 6000 мкм).
.3 Орнитофилия или опыление птицами
Так как птицы хорошо летают и поверхность их тела не гладкая, у них хорошие внешние предпосылки для опыления. Никого не удивляет, что насекомые получают пищу из цветков, но при этом соответствующие действия птиц вызывают огромное удивление и размышления о том, как у них возникла «идея» использовать нектар цветков. Одной из выдвинутых идей была идея о том, что опыление возникло в результате поедания птицами цветков, а первично, возможно, было питание плодами. Было также предположено, что дятлы или дятлы-сокоеды (Sphyrapicus) иногда меняют свое питание и переходят на соки, вытекающие из дупел (некоторые из них также склевывают плоды; Dendrocopus analis - плоды Cassia grandis). Третья группа «объяснений» предполагает, что птицы преследовали насекомых в цветках и, случалось, находили нектар или прокалывали сочные ткани; или сначала пили воду, собранную в цветках для утоления жажды, так как в тропических лесах вода труднодоступна для животных, обитающих в кронах деревьев. В том, что колибри первоначально преследовали насекомых в цветках, можно убедиться даже в наши дни. Быстрое всасывание нектара затрудняет его идентификацию в желудке птиц, тогда как не перевариваемые остатки насекомых легко распознаются. Однако в орнитологической литературе имеется большое число данных, свидетельствующих о том, что пищеварительные системы птиц бывают наполнены нектаром. Извлечение нектара с помощью прокалывания основания венчика является еще одним доказательством того, что все это делается ради добычи нектара. Насекомые не могут получать нектар таким путем. Некоторые колибри пристрастились к прокалыванию цветков - подобно некоторым перепончатокрылым. Ни одно из насекомых не получает нектара из закрытых цветков Loranthaceae с острова Ява, которые открываются только под ударами птиц, ищущих нектар. То, что птицы посещают цветки, может быть подтверждено даже на очень старых музейных препаратах по наличию пыльцевых зерен в перьях или на клюве.
Колибри необходимо большое количество энергии, особенно при парении. Именно такими большими затратами энергии на парение и полет можно объяснить маленький размер этих птиц. После периода голодания запасы питательных веществ могут сильно понизиться, несмотря на низкие скорости метаболизма во время сна.
У опылителей с различными энергетическими бюджетами эффективность поглощения нектара и его метаболизм различны. Наличие цветков с большим количеством нектара является сигналом, заставляющим колибри захватывать и оборонять территории. Можно было бы сослаться на миграцию колибри в те места, где эти цветки многочисленны, в особенности в период размножения.
С точки зрения опыления было абсолютно не важно, посещают ли птицы цветки ради нектара или ради поимки насекомого, до тех пор, пока эти посещения не стали регулярными. Является ли нектар или насекомое, причиной посещения - это проблема адаптации, а не функции. На Яве Zosterops посещает не орнитофильную Elaeocarpus ganitrus, чтобы собирать клещей, которые находятся в цветках в огромном количестве.
Несомненно, что птицы садились на цветки по всем упомянутым выше причинам. Даже если с точки зрения садовода цветки были повреждены, они были успешно опылены. Повреждение цветка само по себе не имеет большого значения, если не повреждается пестик. Ведь взрывные цветки тоже сами разрушаются.
Другие такие же случайные посещения цветков дистропными птицами недавно были зарегистрированы у мигрирующих в Англию птиц, прилетающих из более южных районов. Кэмпбелл наблюдал, как различные птицы в Англии преследовали насекомых в цветках и при этом на них попадало очень небольшое количество пыльцы.
Из этих примеров дистропных посещений цветков видно, что существует постепенный переход через определенных аллотропных птиц со смешанной диетой, в которой нектар составляет один из ингредиентов, к эутропным, в результате чего устанавливается истинная орнитофилия.
В течение длительного времени проводились наблюдения за посещениями цветков колибри. Орнитофилия как феномен, признанный с научной точки зрения, была установлена Трелизом в конце прошлого столетия, а Джохоу, Фриз и главным образом Верт изучили ее более подробно. Однако только тогда, когда Порш в 20-х годах нашего столетия собрал огромное количество данных и сделал убедительные выводы по поводу хорошо известных теперь явлений, орнитофилия была единодушно признана, даже если ее происхождение все еще вызывает споры.
Привычка собирать нектар, очевидно, является полифилетической, возникшей у различных групп птиц в различных районах. Наиболее известным примером высокой адаптации служат колибри (Trochilidae) Северной и Южной Америки. Колибри, вероятно, первоначальна были насекомоядными, но позже переключились на нектар; их птенцы помимо нектара все еще едят насекомых. То же самое наблюдается и у насекомых.
Другой американской группой более или менее эутропных птиц, питающихся цветками, являются гораздо менее важные птицы, питающиеся сахаром (Coerebidae). В Старом Свете у других семейств появились такие же признаки, как у колибри, даже если их адаптация обычно менее значительна. В Африке и Азии обитают нектарницы (Nectarinidae), на Гавайях - гавайские цветочницы (Drepanididae), тесно связанные с местными лобелиями, в Индо-Австралийской области - медоеды (Meliphagidae) и щеткоязычные медовые попугаи или небольшие попугаи лори (Trichoglossidaei).