Контрольная работа: Влияние кортизола на обмен белка
Пищевые и запасные белки - белки, которые выполняют функцию обеспечения питанием зародышей растений и животных на первых стадиях их развития. Наиболее известными примерами таких белков служат белки семян пшеницы, кукурузы и риса. К пищевым белкам относится яичный альбумин - основной компонент яичного белка, и казеин, главный белок молока. В ферритине, встречающимся в животных тканях, запасено железо.
Сократительные и двигательные белки - белки, которые обеспечивают клетку или организм двигательной функцией,- способностью сокращаться, изменять форму и передвигаться. Белками с такой функцией являются актин и миозин, представляющие собой нитевидные белки, функционирующие в сократительной системе скелетной мышцы, а также во многих немышечных тканях (микрофиламенты эукариотических клеток). Другим примером таких белков служит тубулин - белок из которого построены микротрубочки, являющиеся важными элементами ресничек и жгутиков, при помощи которых клетки передвигаются. Длинные клетки нервной системы животных также содержат микротрубочки. Структурные белки - белки образующие волокна, навитые друг на друга или уложенные плоским слоем, выполняют опорную или защитную функцию, скрепляют между собой биологические структуры организмов и придают им прочность. Главным компонентом хрящей и сухожилий является фибриллярный белок коллаген, имеющий очень высокую прочность на разрыв. Связки содержат эластин - структурный белок способный растягиваться в двух измерениях. Волосы ногти и перья состоят почти исключительно из прочного нерастворимого белка кератина. Главным компонентом шелковых нитей и паутины служит белок фиброин.
Так, например, монеллин - белок, содержащийся в
одном из африканских растений, имеет очень сладкий вкус. Он стал предметом
изучения как нетоксичное и не способствующее ожирению вещество, которое может
быть использовано вместо сахара. Плазма крови некоторых антарктических рыб
содержит белки со свойствами антифриза, предохраняющие кровь этих рыб от
замерзания. Шарниры в местах прикрепления крыльев у ряда насекомых состоят из
белка резилина, обладающего почти идеальной эластичностью.
. Синтез белка в клетке
Совокупность реакций биологического синтеза называется пластическим обменом, или ассимиляцией. Название этого вида обмена отражает его сущность: из простых веществ, поступающих в клетку извне, образуются вещества, подобные веществам клетки.
Рассмотрим одну из важнейших форм пластического обмена - биосинтез белков. Все многообразие свойств белков в конечном счете определяется первичной структурой, т. е. последовательностью аминокислот. Огромное количество отобранных эволюцией уникальных сочетаний аминокислот воспроизводится путем синтеза нуклеиновых кислот с такой последовательностью азотистых оснований, которая соответствует последовательности аминокислот в белках. Каждой аминокислоте в полипептидной цепочке соответствует комбинация из трех нуклеотидов - триплет.
Процесс реализации наследственной информации в биосинтезе осуществляется при участии трех видов рибонуклеиновых кислот: информационной (матричной) - иРНК (мРНК), рибосомальной - рРНК и транспортной - тРНК. Все рибонуклеиновые кислоты синтезируются на соответствующих участках молекулы ДНК. Они имеют значительно меньшие размеры, чем ДНК, и представляют собой одинарную цепь нуклеотидов. Нуклеотиды содержат остаток фосфорной кислоты (фосфат), пентозный сахар (рибозу) и одно из четырех азотистых оснований - аденин, цитозин, гуанин и урацил. Азотистое основание - урацил - комплементарно аденину.
Процесс биосинтеза сложный и включает ряд этапов - транскрипцию, сплайсинг и трансляцию.
Первый этап (транскрипция) происходит в ядре клетки: на участке определенного гена молекулы ДНК синтезируется мРНК. Этот синтез осуществляется при участии комплекса ферментов, главным из которых является ДНК-зависимая РНК-полимераза, которая прикрепляется к начальной (инициальной) точке молекулы ДНК, расплетает двойную спираль и, перемещаясь вдоль одной из нитей, синтезирует рядом с ней комплементарную нить мРНК. В результате транскрипции мРНК содержит генетическую информацию в виде последовательного чередования нуклеотидов, порядок которых точно скопирован с соответствующего участка (гена) молекулы ДНК.
Дальнейшие исследования показали, что в процессе транскрипции синтезируется так называемая про-мРНК - предшественник зрелой мРНК, участвующей в трансляции. Про-мРНК имеет значительно большие размеры и содержит фрагменты, не кодирующие синтез соответствующей полипептидной цепи. В ДНК наряду с участками, кодирующими рРНК, тРНК и полипептиды, имеются фрагменты, не содержащие генетической информации. Они получили название интронов в отличие от кодирующих фрагментов, которые называются экзонами. Интроны обнаружены на многих участках молекул ДНК. Так, например, в одном гене - участке ДНК, кодирующем овальбумин курицы, содержится 7 интронов, в гене сывороточного альбумина крысы - 13 интронов. Длина интрона бывает различной - от двухсот до тысячи пар нуклеотидов ДНК. Интроны считываются (транскрибируются) одновременно с экзонами, поэтому про-мРНК значительно длиннее, чем зрелая мРНК. В ядре в про-мРНК специальными ферментами вырезаются интроны, а фрагменты экзона «сращиваются» между собой в строгом порядке. Этот процесс называют сплайсингом. В процессе сплайсинга образуется зрелая мРНК, которая содержит только ту информацию, которая необходима для синтеза соответствующего полипептида, то есть информативную часть структурного гена.
Значение и функции интронов до сих пор еще не совсем выяснены, но установлено, что, если в ДНК считываются только участки экзонов, зрелая мРНК не образуется. Процесс сплайсинга изучен на примере работы гена овальбумина. Он содержит один экзон и 7 интронов. Сначала на ДНК синтезируется про-мРНК, содержащая 7700 нуклеотидов. Затем в про-мРНК число нуклеотидов уменьшается до 6800, затем - до 5600, 4850, 3800, 3400 и т. д. до 1372 нуклеотидов, соответствующих экзону. Содержащая 1372 нуклеотида мРНК выходит из ядра в цитоплазму, попадает на рибосому и синтезирует соответствующий полипептид. Следующий этап биосинтеза - трансляция - происходит в цитоплазме на рибосомах при участии тРНК. Транспортные РНК синтезируются в ядре, но функционируют в свободном состоянии в цитоплазме клетки. Одна молекула тРНК содержит 76-85 нуклеотидов и имеет довольно сложную структуру, напоминающую клеверный лист. Три участка тРНК имеют особо важное значение: 1) антикодон, состоящий из трех нуклеотидов, определяющий место прикрепления тРНК к соответствующему комплементарному кодону (мРНК) на рибосоме; 2) участок, определяющий специфичность тРНК, способность данной молекулы прикрепляться только к определенной аминокислоте; 3) акцепторный участок, к которому прикрепляется аминокислота. Он одинаков для всех тРНК и состоит из трех нуклеотидов - Ц-Ц-А. Присоединению аминокислоты к тРНК предшествует ее активация ферментом аминоацил-тРНК-синтетазой. Этот фермент специфичен для каждой аминокислоты. Активированная аминокислота прикрепляется к соответствующей тРНК и доставляется ею на рибосому. Центральное место в трансляции принадлежит рибосомам - рибонуклеопротеиновым органоидам цитоплазмы, во множестве в ней присутствующим. Размеры рибосом у прокариот в среднем 30х30х20 нм, у эукариот - 40х40х20 нм. Обычно их размеры определяют в единицах седиментации (S) - скорости осаждения при центрифугировании в соответствующей среде. У бактерии кишечной палочки рибосома имеет величину 70 S и состоит из двух субчастиц, одна из которых имеет константу 30 S, вторая 50 S, и содержит 64 % рибосомальной РНК и 36 % белка.
Молекула мРНК выходит из ядра в цитоплазму и прикрепляется к малой субчастице рибосомы. Трансляция начинается с так называемого стартового кодона (инициатора синтеза) - А-У-Г-. Когда тРНК доставляет к рибосоме активированную аминокислоту, ее антикодон соединяется водородными связями с нуклеотидами комплементарного кодона мРНК. Акцепторный конец тРНК с соответствующей аминокислотой прикрепляется к поверхности большой субчастицы рибосомы. После первой аминокислоты другая тРНК доставляет следующую аминокислоту, и таким образом на рибосоме синтезируется полипептидная цепь. Молекула мРНК обычно работает сразу на нескольких (5-20) рибосомах, соединенных в полисомы. Начало синтеза полипептидной цепи называют инициацией, рост ее - элонгацией. Последовательность аминокислот в полипептидной цепи определяется последовательностью кодонов в мРНК. Синтез полипептидной цепи прекращается, когда на мРНК появляется один из кодонов-терминаторов - УАА, УАГ или УГА. Окончание синтеза данной полипептидной цепи называется терминацией.
Установлено, что в клетках животных полипептидная цепь за одну секунду удлиняется на 7 аминокислот, а мРНК продвигается на рибосоме на 21 нуклеотид. У бактерий этот процесс протекает в два-три раза быстрее.
Следовательно, синтез первичной структуры
белковой молекулы - полипептидной цепи - происходит на рибосоме в соответствии
с порядком чередования нуклеотидов в матричной рибонуклеиновой кислоте - мРНК.
Она не зависит от строения рибосомы.
7. Всасывание аминокислот
Основным механизмом поступления аминокислот в энтероцит является Nа+-зависимый активный транспорт. Вместе с тем возможна и диффузия аминокислот по электрохимическому градиенту. Наличием двух механизмов транспорта объясняют тот факт, что D-аминокислоты всасываются быстрее (за счет активного транспорта), чем L-изомеры, поступающие в клетку пассивно, путем диффузии. У взрослых животных диффузия, очевидно, происходит лишь при нарушении механизма активного транспорта. В нормальных же условиях поступление аминокислот в энтероцит обеспечивается механизмами облегченной диффузии и активного транспорта, реализующимися с участием переносчиков. Предполагают наличие различных транспортных систем для нейтральных, основных, N-замещенных и дикарбоновых аминокислот.
Практически единственным видом
продуктов гидролиза белка, всасывающихся в кровеносное русло у высших животных
и человека, являются аминокислоты. Исключение составляют оксипролиновые
пептиды, которые, по-видимому, всасываются путем диффузии. В весьма небольшом
количестве через кишечный эпителий способны проникать некоторые мелкие пептиды,
например глицилглицин. Кроме того, у новорожденных млекопитающих, когда еще не
функционируют механизмы расщепления белка, возможно всасывание интактного белка
посредством пиноцитоза. Таким путем в организм новорожденного с молоком матери
поступают антитела, обеспечивающие невосприимчивость к инфекциям.
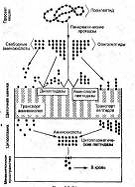
Существует точка зрения, в соответствии с которой олигопептиды, образующиеся в процессе полостного гидролиза, поступают в энтероцит, где и расщепляются до аминокислот под действием внутриклеточных ферментов. В то же время показано, что промежуточные и заключительные этапы расщепления белковых молекул осуществляются не внутриклеточно, а в зоне щеточной каймы энтероцитов с помощью находящихся здесь пептидаз. В энтероцитах наряду с транспортной системой апикальной мембраны имеется также транспортная система, расположенная в базальной и латеральных мембранах, которая осуществляет выход транспортируемых аминокислот из клетки. Эта система функционирует с участием транспортеров по механизму облегченной диффузии. Предполагают возможность и Nа+-зависимого активного транспорта.
Процесс переваривания и всасывания
белков можно представить в следующем виде. В просвете кишки происходит
расщепление полипептидов до олигопептидов, ди- и трипептидов и аминокислот. В
мембране микроворсинок щеточной каймы - дальнейшее расщепление специфическими
пептидазами, поглощение аминокислот и олигопептидов. В цитоплазме - расщепление
ди- и олигопептидов цитоплазматическими пептидазами до аминокислот. В базальной
мембране - выход аминокислот из клетки в кровь.
. Влияние кортизола на обмен белка
Существенным влиянием кортизола на метаболизм белка является уменьшение содержания белков практически во всех клетках организма, кроме клеток печени. Это вызвано как снижением синтеза белков, так и повсеместно возросшим уровнем их катаболизма. Оба эффекта могут быть объяснены снижением транспорта аминокислот в клетке, исключая клетки печени. Возможно, это не главная причина, т.к. кортизол снижает также продукцию РНК и последующий синтез белков, особенно в мышечной и лимфоидной тканях.
Кортизол увеличивает количество белка в плазме крови и в печени. Наряду с повсеместным снижением белков в организме кортизол увеличивает содержание белка в печени. Более того, возрастает уровень белков плазмы крови (продуцируются печенью и высвобождаются в кровь). Это увеличение является единственным исключением на фоне общего истощения резервов белка в организме. Предполагают, что эта разница объясняется возможным влиянием кортизола на поступление аминокислот в гепатоциты (но не в другие клетки организма) и увеличением количества ферментов, необходимых для процессов синтеза.
Увеличение содержания аминокислот в крови,
снижение поступления аминокислот во внепеченочные клетки и увеличение
транспорта в гепатоциты. Исследования, выполненные на изолированной ткани,
продемонстрировали, что кортизол понижает транспорт аминокислот в мышечные
клетки и, возможно, во все клетки, кроме гепатоцитов.
Снижение поступления аминокислот во внепеченочные клетки снижает в них концентрацию аминокислот с последующим снижением синтеза белков. Кроме того, продолжающийся распад белков высвобождает аминокислоты практически из всех существующих белков. Их диффузия из клеток повышает концентрацию аминокислот в плазме. Кортизол мобилизует аминокислоты из внепепеночных тканей и таким образом истощает резервы белка в тканях.
Увеличение в плазме концентрации аминокислот
наряду с возросшим их транспортом в клетки печени под влиянием кортизола дает
основание предполагать, что при этом повышается утилизация аминокислот в
гепатоцитах, что приводит к увеличению: (1) скорости дезаминирования
аминокислот в печени; (2) синтеза протеинов в печени; (3) образования белков
плазмы крови в печени; (4) превращения аминокислот в глюкозу. Возможно, многие
влияния кортизола на метаболические системы организма являются результатом
способности кортизола мобилизовывать аминокислоты из периферических тканей с
одновременным увеличением ферментов в печени, реализующих ответные реакции
печеночных клеток.
Вывод
Белки - наиболее важные биологические вещества живых организмов. Они служат основным пластическим материалом, из которого строятся клетки, ткани и органы тела человека. Белки составляют основу гормонов, ферментов, антител и других образований, выполняющих сложные функции в жизни человека (пищеварение, рост, размножение, иммунитет и др.), способствуют нормальному обмену в организме витаминов и минеральных солей. Белки участвуют в образовании энергии, особенно в период больших энергетических затрат или при недостаточном количестве в питании углеводов и жиров. Энергетическая ценность 1 г белка составляет 4 ккал (16,7 кДж).
При недостатке белков в организме возникают
серьезные нарушения: замедление роста и развития детей, изменения в печени
взрослых, деятельности желез внутренней секреции, состава крови, ослабление
умственной деятельности, снижение работоспособности и сопротивляемости к
инфекционным заболеваниям.
Список использованной литературы
1. Анатомия человека. Карманный справочник: - Москва, АСТ, Астрель, 2005 г.- 320 с.
. Биология: Обмен веществ и энергии в клетках организма: Р. А. Петросова - Москва, Дрофа, 2004 г.- 80 с.
. Голодание и здоровье: Геннадий Малахов - Санкт-Петербург, Сталкер, Генеша, 2007 г.- 320 с.
. Избранное. Золотые правила питания. Витамины и минералы в повседневном питании человека. Лечебное и раздельное питание: Геннадий Малахов - Санкт-Петербург, Крылов, 2007 г.- 624 с.
. Информатика медицины: В.С. Сокольский - Санкт-Петербург, Познавательная книга Плюс, 2001 г.- 704 с.
. Нормальная физиология. В 3 томах. Том 2. Частная физиология: - Санкт-Петербург, Академия, 2006 г.- 288 с.
. Обмен жилыми помещениями. Практическое пособие: М.Ю. Тихомиров - Москва, Издание Тихомирова М. Ю., 2011 г.- 48 с.
. Популярная эниология: Аркадий Вяткин - Санкт-Петербург, Пилигрим-Пресс, 2007 г.- 288 с.
. Тайные коды кристаллов соли. Активизируем жизненные силы организма с помощью целебных свойств 12 солей: Ганс Вагнер - Москва, АСТ, Астрель, 2008 г.- 128 с.
.Тело человека: Дэвид Ламберт - Москва, Астрель, АСТ, 2002 г.- 256 с.