Курсовая работа (т): Вторичные метаболиты
Дитерпеноиды также насчитывают несколько тысяч структур. Они являются главными компонентами смол у голосеменных (ель, сосна, пихта, кедр). Часто дитерпеноиды смол обладают бактерицидными свойствами.
Тритерпеноиды представлены несколькими группами соединений. Прежде всего это соединения первичного метаболизма - фитостерины, однако большинство тритерпеноидов являются типичными вторичными метаболитами. Тритерпеноиды обладают широким спектром биологической активности. К ним относятся сердечные, стероидные, тритерпеновые гликозиды, экдистероиды.
Тетратерпеноиды представлены в растениях главным образом каротиноидами, некоторые из них участвуют в основном обмене (фотосинтез), однако большинство (около 500) - это типично вторичные метаболиты.
Изопреноидные вторичные метаболиты, в отличие от
алкалоидов, обычно после синтеза выводятся из клетки. Помимо клеточной стенки,
они могут иногда накапливаться в вакуолях. Синтез изопреноидов может проходить
в двух компартментах - в пластидах или в цитозоле. При этом существуют два
независимых пути синтеза изопреноидов: мевалонатный - в цитоплазме,
альтернативный - в пластидах. «Пластидный» синтез изопреноидов часто
осуществляется в лейкопластах - специализированных «изопреноидных» пластидах,
которые имеют ряд морфологических особенностей (например, отсутствие рибосом,
особое расположение внутренних мембран). Для них характерны тесные контакты с
ЭР («ретикулярный футляр»), что косвенно указывает на взаимодействие пластид и
ЭР при синтезе изопреноидов.
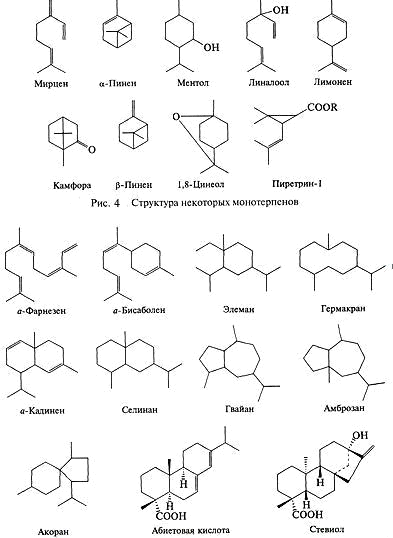
Рис. 3. Структура некоторых сесквитерпеноидов и дитерпеноидов
•Фенольные соединения - вещества ароматической природы, содержащие одну или несколько гидроксильных групп у ароматического кольца. Фенолами называют соединения с одним атомом гидроксила, полифенолами - с двумя и более. Многие фенольные соединения участвуют в основном обмене (в частности, в процессах фотосинтеза и дыхания), однако большинство из них - типичные представители вторичного метаболизма.
Фенольные соединения классифицируются в зависимости от числа ароматических колец и количества присоединенных к ним атомов углерода. Фенольные соединения принято разделять на три большие подгруппы: с одним и двумя ароматическими кольцами, а также полимерные фенольные соединения. Иногда в особую группу выделяют димерные фенольные соединения.
Отличительной чертой фенольных соединений является формирование огромного числа соединений за счет модификаций молекулы и образования конъюгатов с разнообразными структурами. Из модификаций для фенольных соединений характерны образование гликозидов, метилирование и метоксилирование. За счет гидроксильных и карбоксильных групп фенольные соединения могут связываться с сахарами, органическими кислотами, растительными аминами, алкалоидами. Помимо этого растительные фенолы могут соединяться с изопреноидами, образуя большую группу пренилированных фенолов. Такие свойства фенольных соединений обеспечивают огромное разнообразие структур, характерное для растительных фенолов.
Фенольные соединения накапливаются как в вакуолях, так и в периплазматическом пространстве. При этом в вакуолях обычно содержатся гликозилированные фенольные соединения, тогда как в периплазматическом пространстве - метаксилированные соединения или агликоны. Синтез фенольных соединений происходит в хлоропластах и цитозоле. Показано существование двух независимых путей синтеза ароматических соединений (шикиматные пути) - в цитозоле и в пластидах.
Многие соединения других классов вторичных метаболитов
также накапливаются в вакуолях. Подобную локализацию имеют, например,
цианогенные гликозиды, глюкозинолаты, беталаины.
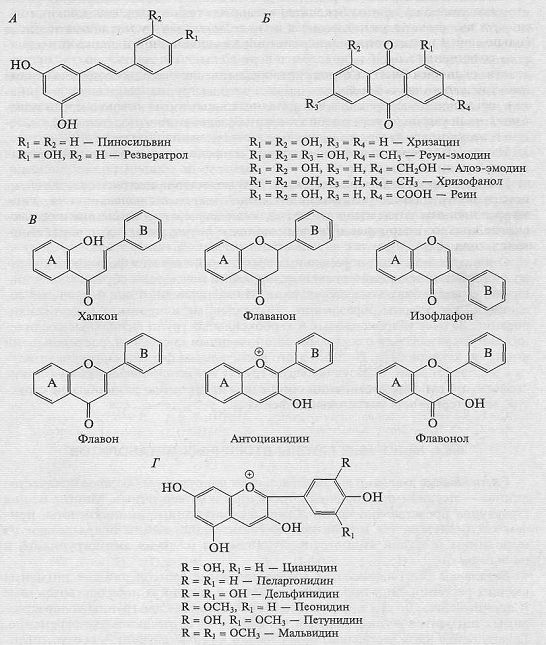
Рис. 4. Фенольные соединения с двумя ароматическими
кольцами: стильбены (А), антрахиноны (Б), основные группы флавоноидов (В),
антоцианидины (Г)
•Минорные группы вторичных метаболитов
Растительные амины. В высших растениях присутствует большое количество аминов - первичных, вторичных, третичных и четвертичных. Многие из них структурно представляют собой декарбоксилированные аминокислоты, причем как белковые, так и небелковые. Растительные амины подразделяют на моноамины (с одной аминогруппой), диамины (с двумя аминогруппами) и полиамины.
До сих пор не найдены растения, где две группы водорастворимых пигментов - антоцианы и беталаины - встречаются одновременно. Группу беталаинов составляют бетацианины и бетаксантины - соответственно красно-фиолетовые и желтые соединения. Бетацианины представляют собой гликозиды и ацилгликозиды всего двух агликонов.
Цианогенные гликозиды. Цианогенные гликозиды являются β-гликозидами 2-гидроксинитрилов (цианогидринов). К настоящему времени в высших растениях обнаружено несколько десятков подобных соединений. Основные структурные вариации обусловлены природой заместителей R1 и R2. В качестве углеводного фрагмента как правило, выступает D-глюкоза. При гидролизе циано-генных гликозидов специфичной гликозидазой выделяется синильная кислота.
Небелковые аминокислоты. Под этим термином подразумеваются природные аминокислоты, их амиды, иминокислоты, которые в норме не входят в состав белков. Сейчас известно более 400 небелковых аминокислот. Многие из них можно рассматривать как модификации белковых. Наиболее часто встречаются варианты удлинения или сокращения углеродной цепи (добавление или удаление СН2- или СН3-фрагментов), гидрирование и дегидрирование, гидроксилирование, аминирование. Встречаются и необычные (например, селен-содержащие) аминокислоты. Небелковые аминокислоты преимущественно весьма токсичны, поскольку могут включаться в белки вместо «нормальных» аминокислот и нарушать их функции.
Необычные липиды. К ним относятся прежде всего «необычные» жирные кислоты, которые отличаются от «обычных» длиной углеродной цепи, иным расположением и количеством двойных связей, наличием дополнительных функциональных групп и циклов. Чаще всего необычные жирные кислоты обнаруживаются в масле семян. Во многих видах высших растений обнаружены соединения с одной или несколькими тройными связями. Такие соединения получили название ацетиленовых производных, или полиацетиленов. Известно несколько сотен таких структур. В отличие от необычных жирных кислот, ацетиленовые производные могут находиться во всех органах и частях растения. К необычным липидам относятся также цианолипиды, при гидролизе которых выделяется синильная кислота.
Серосодержащие вторичные метаболиты. К ним относятся прежде всего ти-огликозиды (S-гликозиды). Наиболее известны гликозиды горчичных масел (глюкозинолаты). Эти гликозиды характерны для растений семейства крестоцветных. Они обладают сильным антимикробным действием и обуславливают острый или жгучий вкус горчицы, хрена, редьки. Механизм действия глюкозинолатов весьма сходен с действием цианогенных гликозидов: после отщепления сахара мирозиназой образуются изотиоцианаты, обуславливающие жгучий вкус и раздражающее действие. Другую группу серосодержащих вторичных метаболитов составляют аллицины чеснока и лука, которые синтезируются из цистеина. Они также ответственны за жгучий вкус и антимикробные свойства этих растений.
1.6 Биохимия вторичного метаболизма
Пути биосинтеза вторичных метаболитов
Пути синтеза большинства вторичных метаболитов установлены достаточно хорошо. В настоящее время интенсивно изучается энзимология вторичного метаболизма. На основании имеющейся информации можно сформулировать некоторые закономерности биосинтеза этих соединений. Предшественниками синтеза служит относительно небольшое количество первичных метаболитов. Многие группы вторичных метаболитов могут синтезироваться несколькими путями. Часто этапы синтеза дублированы в разных компартментах клетки (например, пластиды - цитозоль). Синтез четко спланирован и обслуживается набором специальных ферментов, в большинстве случаев весьма специфичных.
•Биосинтез алкалоидов. Образование этих веществ тесно связано с общим обменом азота клетки. Для большинства алкалоидов показано, что схемы их синтеза унифицированы, т. е. имеют сходную последовательность реакций. В процессе биосинтеза молекула аминокислоты практически полностью включается в структуру алкалоида. Синтез алкалоидов разных групп включает одинаковые типы реакций: декарбоксилирование, окислительное дезаминирование, альдольная конденсация, но для каждой группы алкалоидов эти реакции осуществляют «собственные» ферменты. На первом этапе синтеза происходит декарбоксилирование аминокислоты при участии соответствующей декарбоксилазы. Образовавшиеся биогенные амины подвергаются окислительному дезаминированию с участием аминооксидаз. Полученные в результате аминоальдегиды или аминокетоны в результате серии последовательных реакций образуют ключевые гетероциклические соединения. Затем происходит модификация базовой структуры с участием разнообразных реакций - гидроксилирования, метилирования и др. В формировании окончательной структуры алкалоида могут принимать участие дополнительные углеродные единицы, например ацетат (в виде ацетил-СоА) или монотерпеновая единица (для сложных индольных алкалоидов). В зависимости от сложности алкалоида его биосинтез включает от трех-четырех до десяти-пятнадцати реакций.
Для целого ряда алкалоидов не только установлена схема синтеза, но охарактеризованы и выделены ферменты. Оказалось, что некоторые ферменты синтеза не очень специфичны (в качестве субстратов могут использовать различные соединения), однако в цепочке синтеза обязательно присутствуют высокоспецифичные ферменты, которые используют только один субстрат (или ряд очень близких субстратов) и выполняют очень специфичную реакцию.
Например, при синтезе изохинолинов гидроксилирование
базовой структуры по каждому положению выполняют разные ферменты. По мере
продвижения к заключительным этапам синтеза сродство ферментов к субстрату
обычно повышается: например, для ряда ферментов синтеза бербериновых алкалоидов
Кт составляет менее 1 мкМ. В качестве примера на рис. 5 представлена схема
синтеза изохинолиновых алкалоидов.
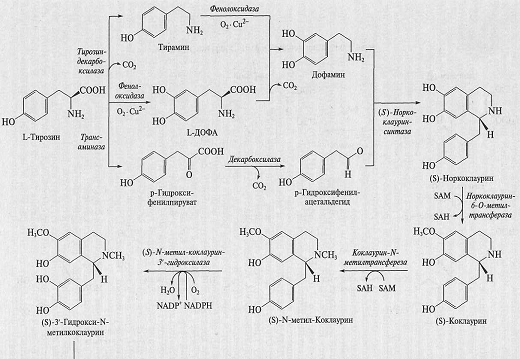
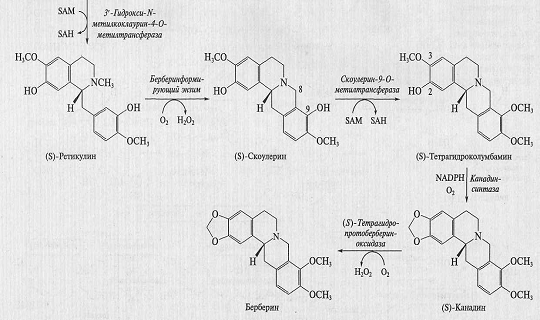
Рис. 5. Схема биосинтеза изохинолиновых алкалоидов
•Биосинтез изопреноидов. Если при синтезе алкалоидов сходная цепочка превращений используется для различных исходных соединений (аминокислот), то синтез колоссального числа изопреноидов происходит из единственного предшественника - изопентенилдифосфата (ИПДФ). Под действием фермента изопентенилдифосфатизомеразы, которая сдвигает двойную связь, ИПДФ превращается в диметилаллилдифосфат (ДМАДФ). Далее ИПДФ присоединяется к ДМАДФ по двойной связи и образуется С10-соединение - геранилдифосфат.
Он служит источником всех монотерпеноидов.
Затем к геранилдифосфату присоединяется еще один ИПДФ и образуется С15-соединение фарнезилдифосфат - исходное вещество для синтеза сесквитерпеноидов. Далее фарнезилдифосфат может либо присоединить еще одну молекулу ИПДФ с образованием геранилгеранилдифосфата (С20-соединение - источник дитерпеноидов), либо димеризоваться с образованием сквалена (С30-соединение - исходное соединение для всех тритерпеноидов). Наконец, геранилгеранилдифосфат может димеризоваться с образованием фитоина - С40-соединения, источник тетратерпеноидов. Кроме того, к геранилгеранилдифосфату может последовательно присоединиться большое количество ИПДФ, формируя в конечном итоге полиизопреноиды - каучук и гуттаперчу. В результате описанных реакций образуется полный гомологический ряд С5-соединений разной длины. Далее эти алифатические молекулы могут «свернуться» в циклические структуры, причем количество циклов, их размер и типы сочленения могут быть самыми разными. На рис. 9.13 представлена общая схема синтеза изопреноидов.
Синтез базовых изопреноидных структур осуществляют
всего два типа ферментов - пренилтрансферазы, которые «наращивают» длину
изопреноидов, и циклазы, которые формируют соответствующий циклический скелет
молекулы. При этом каждый тип структуры формирует специфическая циклаза. Так
как типов циклических структур изопреноидов довольно много, то и количество
циклаз должно быть внушительным. К настоящему времени их известно более ста.
После формирования базовой структуры (или одновременно с этим), происходит ее
модификация и «оснащение» функциональными группами.
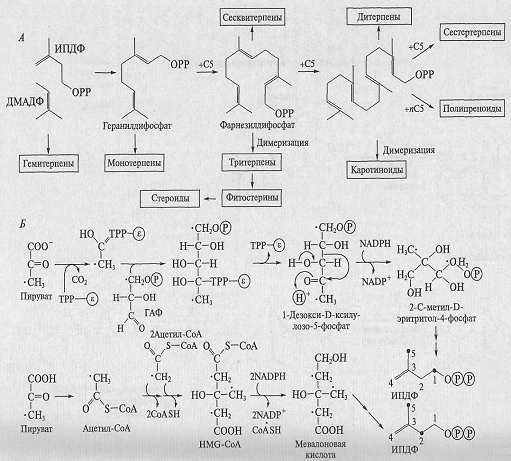
Рис. 6. Общая схема биосинтеза изопреноидов (А) и два
пути синтеза изопентенилдифосфата (Б) в растениях
Точками показаны меченые атомы в исходных соединениях и в образовавшихся ИПДФ.
Таким образом, биосинтез изопреноидов можно представить себе как своеобразный биохимический «моделист-конструктор». Вначале из унфицированых С5-модулей изготовляются гибкие линейные конструкции разной длины. Они представляют собой практически идеальный материал для «биохимического конструирования» и формирования множества вариантов циклических структур.
Растения используют оба варианта образования изопреноидов: в цитозоле синтез идет по классическому пути, а в пластидах - по альтернативному. При этом возможно не только дублирование синтеза изопреноидов в разных ком-партментах клетки, но и разделение по типу синтезируемых структур. Тритерпеноиды (включая стероиды) синтезируются в цитозоле из мевалоната, тогда как дитерпеноиды (включая фитол хлорофилла) и тетратерпеноиды (прежде всего каротиноиды) - в пластидах по альтернативному пути. Моно- и сесквитерпены, вероятно, могут образовываться разными вариантами в зависимости от структуры молекулы и вида растения.
•Биосинтез фенольных соединений. К настоящему времени известно два пути образования фенольных соединений - шикиматный (через шикимовую кислоту) и ацетатно-малонатный. Основной путь шикиматный, это практически единственный способ формирования ароматического кольца. В качестве исходных соединений для синтеза выступают фосфоенолпируват (ФЕП) и эритрозо-4-фосфат. При их конденсации возникает семиуглеродная кислота (2-кето-3-дезокси-7-фосфоарабогептановая), которая затем циклизуется в 5-дегидрохин-ную кислоту. Из дегидрохинной кислоты образуется шикимовая кислота, которая имеет шестичленное кольцо, одну двойную связь, и ее легко перевести в соединения ароматического ряда. Из шикимовой кислоты возможно образование оксибензойных кислот - n-оксибензойной, протокатеховой, галловой. Однако основной путь использования шикимовой кислоты - образование через префеновую кислоту ароматических аминокислот фенилаланина и тирозина. Фенилаланин (возможно, в ряде случаев и тирозин) - основной предшественник синтеза фенольных соединений. Дезаминирование фенилаланина осуществляет фермент фенилаланинаммиаклиаза (ФАЛ). В результате образуется коричная кислота, гидроксилирование которой приводит к образованию пара-кумаровой (оксикоричной) кислоты. После дополнительного гидроксилирования и последующего метилирования из нее образуются остальные оксикоричные кислоты.
Оксикоричные кислоты представляют центральное звено синтеза всех фенольных соединений клетки. Opтo-кумаровая кислота является предшественником кумаринов. После ряда реакций укорочения алифатической части молекулы образуются С6-С2- и С6-С1 - соединения - это второй путь образования оксибензойных кислот (первый - непосредственно из шикимовой кислоты). Оксикоричные кислоты могут образовывать различные конъюгаты, прежде всего с сахарами, однако основная масса оксикоричных кислот активируется путем взаимодействия с СоА. Два магистральных пути использования СоА-эфиров оксикоричных кислот - синтез лигнинов и синтез флавоноидов. Для синтеза лигнинов СоА-эфиры оксикоричных кислот восстанавливаются до спиртов, которые выступают в качестве мономеров синтеза. При синтезе флавоноидов СоА-производное оксикоричной кислоты взаимодействует с тремя молекулами малонил-СоА с образованием халкона. Реакцию катализирует фермент халконсинтаза. Образовавшийся халкон легко преобразуется в флаванон. Из флаванонов за счет реакций гидроксилирования, окисления - восстановления образуются другие группы флавоноидов. Затем может происходить модификация молекулы - гликозилирование, метоксилирование и др.