Материал: 32-37
Вопрос 32 Репликация. Принципы репликации днк. Стадии репликации. Инициация. Белки и ферменты, принимающие участие в формировании репликативной вилки.
Репликация ДНК – процесс образования идентичных копий ДНК,
осуществляемый комплексом ферментов и белков.
Она осуществляется в течение S-фазы клеточного цикла и лежит в основе передачи
наследственных признаков при делении клетки
Общие принципы репликации ДНК:
Комплементарность – первичная стр-ра дочерней цепи определяется первичной
стр-рой родительской цепи (Ц=Г, А=Т)
Антипараллельность – цепи ДНК лежат друг к другу
противоположными концами;
Полуконсервативность – каждая дочерняя двуцепочечная молекула ДНК содержит одну цепь из материнской ДНК и одну новосинтезированную;
Прерывистость – одна из цепей ДНК синтезируется непрерывно,
а вторая – в виде набора отдельных коротких фрагментов (фрагментов Оказаки);
Униполярность – синтез полинуклеотидных цепей всегда идёт
в направлении 5' → 3';
Двунаправленность синтеза от одной специфической точки
начала репликации (сайта инициации);
Согласованность репликации и клеточного деления.
Стадии репликации:
Инициация: формирование репликативной вилки, синтез праймера;
Элонгация: асимметричный синтез ДНК;
Терминация: вырезание праймеров и сшивание отдельных фрагментов цепи ДНК.
ИНИЦИАЦИЯ
1. Факторы роста – специфические сигнальные белковые молекулы,
регулирующие инициацию репликации. Факторы роста связываются рецепторами мембран клеток, которые передают сигнал, побуждающий клетку к началу репликации.
2. Формирование репликативной вилки: в определённом сайте (точка начала
репликации или «origin», у бактерий такая точка в кольцевом геноме одна, а у эукариотических хромосом их множество – там много скоплений А-Т) происходит локальная денатурация ДНК, цепи расходятся и образуются две репликативные вилки, движущиеся в противоположных направлениях.
3. Образование праймера: праймаза комплементарна определённому сайту
одноцепочечной ДНК, синтезирует олигонуклеотид около 60 нуклеотидных остатков; первые 8-10 представлены рибонуклеотидами (праймер), остальные – дезоксирибонуклеотидами.
Белки и ферменты, принимающие участие в формировании репликативной вилки:
1. ДНК-топоизомераза I разрывает фосфоэфирную связь в одной из цепей двойной
спирали и ковалентно присоединяется к 5'-концу в точке разрыва – она снимает суперспирализацию.
После формирования репликативной вилки фермент ликвидирует разрыв
в цепи и отделяется от ДНК.
2. ДНК-хеликаза осуществляет разрыв водородных связей в двухцепочечной
молекуле ДНК, использует энергию АТФ.
3. SSB-белки, которые стабилизируют разделенные одноцепочечные фрагменты,
не закрывая азотистые основания (для их считывания), поддерживают в раскрученном состоянии для предотвращения комплиментарного скручивания
4. Праймаза (ДНК-полимераза α) синтезирует затравку в виде праймера –
небольшого фрагмента РНК, необходимого для работы ДНК-полимеразы на стадии элонгации (появляются свободные 3`ОН-группы для присоединения дезоксирибонуклеотидов).
Каждая из четырёх субъединиц фермента выполняет определённую функцию:
"узнавание" сайта репликации, синтез праймера (8-10 рибонуклеотидов),
синтез фрагмента цепи ДНК.
Вопрос 33 Элонгация и терминация репликации. Ферменты. Асимметричный синтез днк. Фрагменты Оказаки. Роль днк-лигазы в формировании непрерывной и отстающей цепи.
Элонгация и терминация осуществляется ДНК-зависимыми ДНК-полимеразами.
Матрица – цепи ДНК.
Субстраты и источники энергии для синтеза – нуклеотидтрифосфаты: дАТФ, дГТФ, дЦТФ и дТТФ, для активации которых необходим Mg2+
Синтез цепей ДНК происходит в направлении 5'→3' растущей цепи.
Продукт – дочерние цепи ДНК.
ЭЛОНГАЦИЯ (синтез)
В синтезе эукариотических ДНК принимают участие 5 ДНК-полимераз (α,β,γ,δ,ε)
ДНК-полимеразы α, β, δ, ε участвуют в синтезе ДНК в ядре клеток.
ДНК-полимераза γ участвует в репликации митохондриальной ДНК.
ДНК-полимераза α инициирует репликацию (синтез праймера) – на этапе инициации
1. ДНК-полимераза δ последовательно наращивает цепь, присоединяя
соответствующие дезоксинуклеотиды (перемещается вдоль открытой нити ДНК, присоединяя вновь прибывшие нуклеотиды к свободному 3`ОН-концу новой нити ДНК, комплементарной матричной цепи);
Включение дезоксирибонуклеозидмонофосфатов сопровождается гидролизом
макроэрг.связей соответствующих нуклеозидтрифосфатов и отщеплением пирофосфата. Эта энергия используется на образование 3’-5’-фосфодиэфирной связи между последним нуклеотидом растущей цепи и присоединяемым
Матричная цепь считывается в направлении 3’→5’, а дочерняя синтезируется в
направлении 5’→ 3’ (антипараллельность)
2. Асимметричный синтез днк в направлении 5’→ 3’
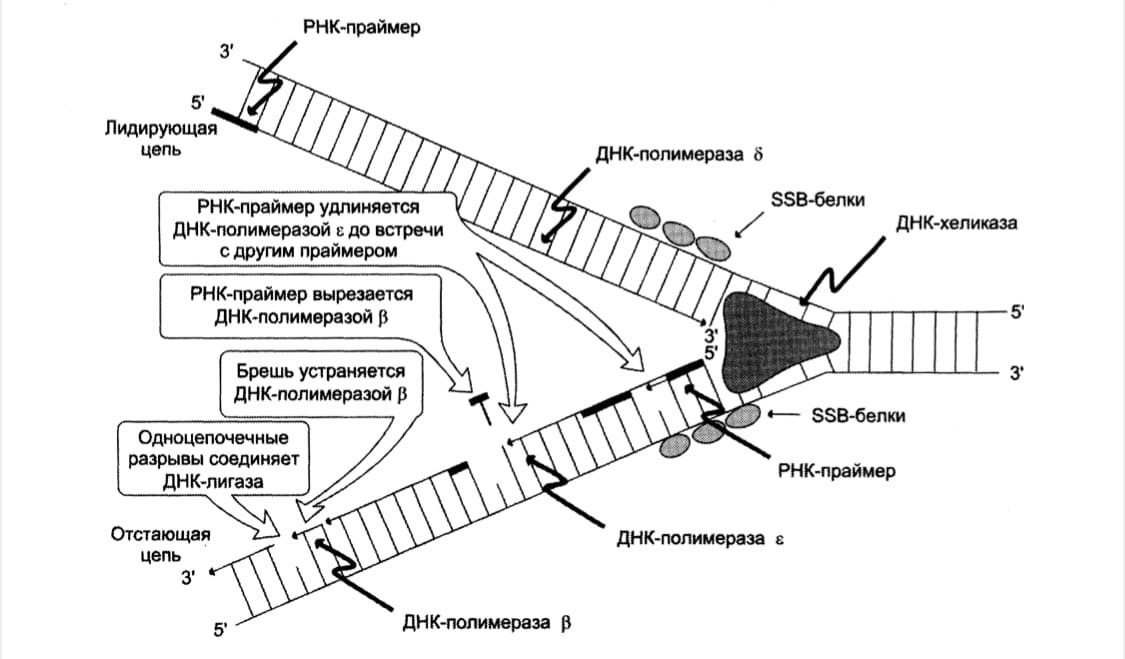
В каждой репликативной вилке идёт одновременно синтез двух новых (дочерних)
цепей. Ферментативный комплекс ДНК-полимераз функционирует так, что одна из цепей растет с опережением относительно другой.
Лидирующая цепь - образуется в виде непрерывного длинного фрагмента, т.к её
направление синтеза цепи ДНК совпадает с направлением движ-я репликативной вилки.
Запаздывающая цепь – образуется в виде серии коротких фрагментов – «
фрагменты Оказаки». На ней синтез идёт в направлении 5'→3', но против движения репликативной вилки (ведется ДНК-полимеразой ε)
ТЕРМИНАЦИЯ – происходит при встрече 2х репликативных вилок
1. ДНК-полимераза β удаляет праймеры, постепенно
2. Застраивание брешей, образовавшихся после вырезания праймеров
дезоксирибонуклеотидами: на лидирующей цепи 1 праймер – присоединяет к ОН-гр на 3’-конце нуклеотиды в кол-ве, равному, вырезанному праймеру, на отстающей – праймер на каждом фрагменте Оказаки (фермент ДНК-полимераза β);
3. Сшивание фрагментов ДНК (фермент ДНК-лигаза).
Фермент ДНК-лигаза катализирует образование фосфодиэфирной связи между
3'-ОН-группой дезоксирибозы одного фрагмента цепи ДНК и 5'-фосфатом следующего фрагмента. Реакция протекает с затратой энергии АТФ. Таким образом, из множества фрагментов Оказаки образуется непрерывная цепь ДНК.
Метилирование ДНК происходит после завершения репликации. Метилируются
нуклеотиды в определенных последовательностях (например аденин всегда метилируется в последовательностях -GATC-). Метилирование не нарушает комплементарности цепей.
Наличие метильных групп в ДНК необходимо для формирования стр-ры хромосом,
а также для регуляции транскрипции генов. В течение некот. времени метилирование по Аденину происходит только в матричной цепи, это различие используется ферментами репарации для исправления ошибок в синтезированной цепи.
Вопрос 34 Повреждения и репарация днк. Виды повреждений. Способы репарации. Дефекты репарационных систем и наследственные болезни.
Репарация – процесс, позволяющий живым организмам восстанавливать
повреждения, возникающие в ДНК.
Репарационные механизмы основаны на том, что ДНК – двухцепочечная
молекула, т. е. в клетке есть 2 копии генетической информации.
Если нуклеотидная последовательность одной из двух цепей оказывается
повреждённой (изменённой), информацию можно восстановить, так как вторая (комплементарная) цепь сохранена.
Если происходят повреждения, затрагивающие обе цепи ДНК,
то репарация не происходит.
Повреждения ДНК и их причины:
Ионизирующая радиация;
УФ-излучение;
Активные формы кислорода;
Химические агенты;
Спонтанные изменения.
Этапы репарации:
Выявление нарушения комплементарности цепей ДНК;
Устранение некомплементарного нуклеотида или только основания;
Восстановление целостности цепи по принципу комплементарности.
Виды репарации:
Прямая – обеспечивает прямое восстановление исходной структуры ДНК или удаление повреждения.
Например: удаление пиримидиновых димеров под действием фотолиазы.
Эксцизионная – происходит в несколько этапов сопровождается вырезанием большого фрагмента цепи ДНК.
Например: удаление продуктов реакций дезаминирования.
Виды повреждений:
1. Спонтанные – без участия каких-либо повреждающих факторов.
1.1 Ошибки репликации: происходят ошибки спаривания, и тогда вместо пары
нуклеотидов A–T, G–С в дочернюю цепь ДНК включаются некомплементарные нуклеотиды. ДНК-полимеразы δ, ε способны после присоединения очередного нуклеотида в растущую цепь ДНК делать шаг назад и вырезать последний нуклеотид, если он некомплементарен нуклеотиду в матричной цепи ДНК.
Пока основания нуклеотидных остатков в дочерней цепи неметилированы,
ферменты должны успеть выявить ошибку репликации и устранить её.
1 Этап: распознавание и удаление некомплементарного нуклеотида.
Происходит при участии специальных белков mut S, mut L, mut H.
Mut S находит неправильную пару и связывается с этим фрагментом.
Mut Н присоединяется к метилированному (по аденину) участку -GATC-,
расположенному вблизи некомплементарной пары.
Связующим между mut S и mut Н служит белок mut L, его присоединение завершает образование активного фермента.
Формирование комплекса mut S, mut L, mut H на участке, содержащем ошибку,
способствует проявлению у белка mut Н эндонуклеазной активности. Ферментативный комплекс гидролизует фосфоэфирную связь в неметилированной цепи
2 Этап: к свободным концам цепи присоединяется экзонуклеаза
Отщепляя по одному нуклеотиду в направлении от 3'- к 5'- концу дочерней цепи, она устраняет участок, содержащий некомплементарную пару.
3 Этап: брешь застраивает днк-полимераза β
4 этап: соединение основного и вновь синтезированного участков цепи
катализирует фермент ДНК-лигаза. Для успешного функционирования экзонуклеазы, ДНК-полимеразы β и ДНК-лигазы необходимо участие в репарации хеликазы и SSB-белков.
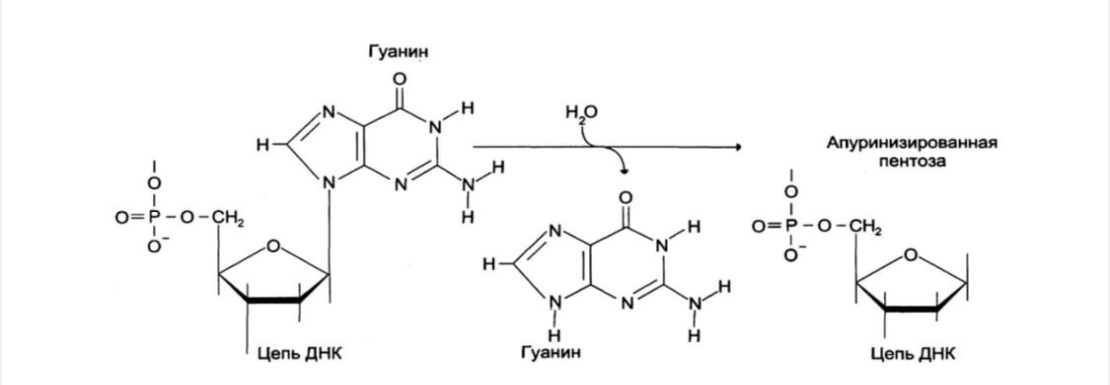
1.2 Депуринизация: потеря пуриновых остатков вследствие разрыва N-
гликозидной связи между пурином и дезоксирибозой. Образуется участок, лишённый азотистых оснований, названный АП-сайтом (апуриновый сайт). Этот тип повреждений устраняет фермент ДНК-инсертаза, который присоединяет к дезоксирибозе основание в соответствии с правилом комплементарности.
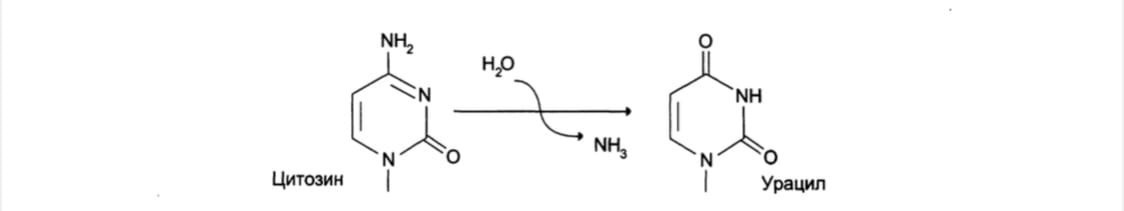
1.3 Дезаминирование: реакции дезаминирования цитозина и превращение его в
урацил, аденина в гипоксантин, гуанина в ксантин. Все продукты дезаминирования легко распознаются ферментами репарации
1 этап: ДНК-N-гликозилаза гидролизует связи между аномальным основанием и
дезоксирибозой, в результате образуется АП-сайт
2 этап: АП-сайт распознаёт фермент АП-эндонуклеаза
3 этап: как только в цепи ДНК возникает разрыв, АП-экзонуклеаза отщепляет от
цепи дезоксирибозу, лишённую основания
4 этап: в цепи ДНК появляется брешь размером в один нуклеотид и
ДНК-полимераза β к 3'-концу разорванной цепи присоединяет нуклеотид по принципу комплементарности
5 этап: ДНК–лигаза соединяет два свободных конца
2. Индуцируемые повреждения – в результате воздействия разнообразных мутагенных факторов как радиационной, так и химической природы.
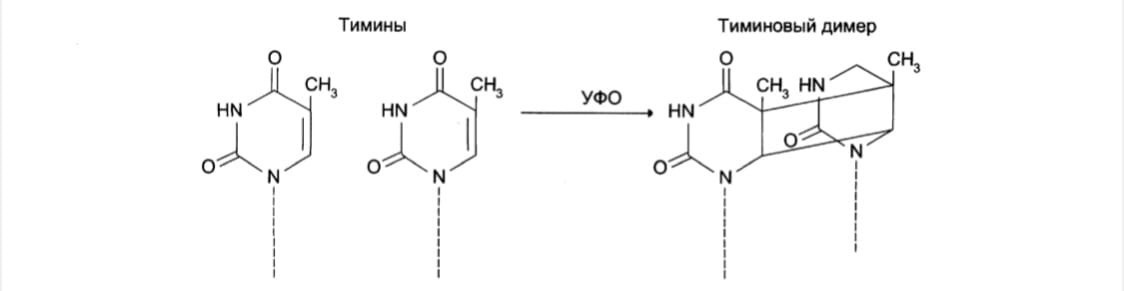
2.1 Образование димеров пиримидиновых оснований: под действием УФО
двойная связь между С5 и С6 атомами углерода в составе пиримидиновых оснований (тимине и цитозине) может разрываться. Атомы углерода остаются связанными одной связью. Расстояние между параллельными плоскостями оснований полинуклеотидной цепи, в которых произошёл разрыв – формируется циклобутановое кольцо.
Удаление пиримидиновых димеров происходит под действием фотолиазы.
Фермент расщепляет вновь образовавшиеся связи между соседними пиримидиновыми основаниями и восстанавливает нативную структуру.
2.2 Повреждения оснований ДНК химическими мутагенами: алкилированию,
окислению, восстановлению или связыванию основания с формамидными группировками.
1 этап: ДНК-N-гликозилаза присоединяется к повреждённому основанию.
Ферменты гидролитически расщепляют N-гликозидную связь между изменённым основанием и дезоксирибозой, это приводит к образованию АП-сайта в цепи ДНК
2 этап: репарация АП-сайта может происходить или только при участии
ДНК-инсертазы, которая присоединяет к дезоксирибозе основание в соответствии с правилом комплементарности, или при участии всего комплекса ферментов, участвующих в репарации: АП-эндонуклеазы, АП-экзонуклеазы, ДНК-полимеразы β и ДНК-лигазы.
Дефекты репарационных систем и наследственные болезни:
Пигментная ксеродерма: нарушение репарации УФ-повреждений (снижена
активность ферментов, ответственных за удаление неправильных оснований, «застройку» бреши). Дефект репарационной системы проявляется в сверхчувствительности к УФ-свету, что приводит к появлению красных пятен на коже, переходящих в незаживающие коросты и нередко в рак кожи.
Трихотиодистрофия: повышенная фоточувствительность ДНК, вызванная
снижением активности фермента, участвующего в удалении димеров тимина. Симптомы заболевания: ломкость волос вследствие нехватки серы в белках волос и их луковиц; часто умственная и физическая отсталость; аномалии кожи и зубов.
Синдром Блума (глубокие поражения капилляров лица) – мутация ДНК-лигазы
Вопрос 35 Транскрипция. Характеристика компонентов системы синтеза рнк. Структура днк-зависимой рнк-полимеразы: роль субъединиц (2ββ′). Инициация процесса. Элонгация, терминация транскрипции.
Транскрипция – первая стадия реализации генетической информации в клетке.
Это синтез всех видов РНК на основе матрицы ДНК
Транскрипция у эукариот происходит в ядре.
Принципы транскрипции:
Комплементарность – РНК-полимераза синтезирует кмоплементарную реплику с
транскрибируемого участка ДНК (G ≡ C, A=U и Т=А).
Беззатравочность – транскрипция начинается с НТФ и не требует
затравочных олигонуклеотидов
Синтез цепи РНК идёт от 5'- к З'-концу, при этом матричная цепь ДНК всегда
антипараллельна синтезируемой нуклеиновой кислоте.
Ассиметричность – транскрибируется лишь одна из цепей ДНК (матричная цепь)
(Вторая, комплементарная ей цепь – кодирующая)
Рибонуклеозидтрифосфаты (ЦТФ, ГТФ, АТФ, УТФ) – субстраты и источники
энергии, необходимые для протекания полимеразной реакции, образования 3',5'-фосфодиэфирной связи между рибонуклеозидмонофосфатами.
Промоторы – определённые последовательности (сайты) ДНК, с которых
начинается синтез молекул РНК.
Терминаторы – терминирующие участки, в которых завершается синтез РНК.
Транскриптон – участок ДНК, ограниченный промотором и сайтом терминации,
представляет собой единицу транскрипции. В каждом транскриптоне присутствует неинформативная зона, которая содержит специфические последовательности нуклеотидов, с которыми взаимодействуют регуляторные транскрипционные факторы.
Транскрипционые факторы – белки, взаимодействующие с регуляторными
сайтами и ускоряющие или замедляющие процесс транскрипции.
Соотношение информативной и неинформативной частей в транскриптонах
У эукариот составляет в среднем 1:9
У прокариотов 9:1
Соседние транскриптоны могут быть отделены друг от друга
нетранскрибируемыми участками ДНК. Разделение ДНК на множество транскриптонов позволяет осуществлять с разной активностью транскрипцию разных генов.
Биосинтез РНК осуществляется ДНК-зависимыми РНК-полимеразами.
РНК-полимераза I, синтезирующая пре-рРНК;
РНК-полимераза II, ответственная за синтез пре-мРНК;
РНК-полимераза III, синтезирующая пре-тРНК.
РНК-полимеразы – олигомерные ферменты, состоящие из 5 субъединиц– 2 α,β,β',σ.
Это holo-фермент (полный фермент). Без -фактора (2 α, β, β') – core-фермент.
Стадии узнавания и связывания, а также инициации осуществляются holo-ферментом.
Элонгация и терминация осуществляются core-ферментом.
Роль субъединиц: две α-субъединицы – каркас РНК-полимеразы, к ним крепятся
остальные субъединицы; β' -субъединица отвечает за прочное связывание с ДНК за счет кластера положительно заряженных аминок-т. В β-субъединице находятся два каталитических центра. Один отвечает за инициацию, а другой – за элонгацию.
Субъединица σ «сигма» выполняет регуляторную функцию, это один из факторов
инициации транскрипции. РНК-полимеразы I, II, III, узнающие разные промоторы, содержат разные по строению субъединицы σ.
ИНИЦИАЦИЯ ТРАНСЛЯЦИИ
1. Активация промотора происходит с помощью большого белка – ТАТА-фактора,
взаимодействующего со специфической последовательностью нуклеотидов, входящего в состав промотора – ТАТА-бокс
2. Присоединение ТАТА-фактора облегчает взаимодействие промотора с
РНК-полимеразой. Факторы инициации вызывают изменение конформации
РНК-полимеразы и обеспечивают раскручивание примерно одного витка спирали ДНК, т.е. образуется транскрипционная вилка, в которой матрица доступна для инициации синтеза цепи РНК.