Материал: 32-37
3. После того как синтезирован олигонуклеотид из 8-10 нуклеотидных остатков,
σ-субъединица отделяется от РНК-полимеразы, а вместо неё к молекуле фермента присоединяются несколько факторов элонгации.
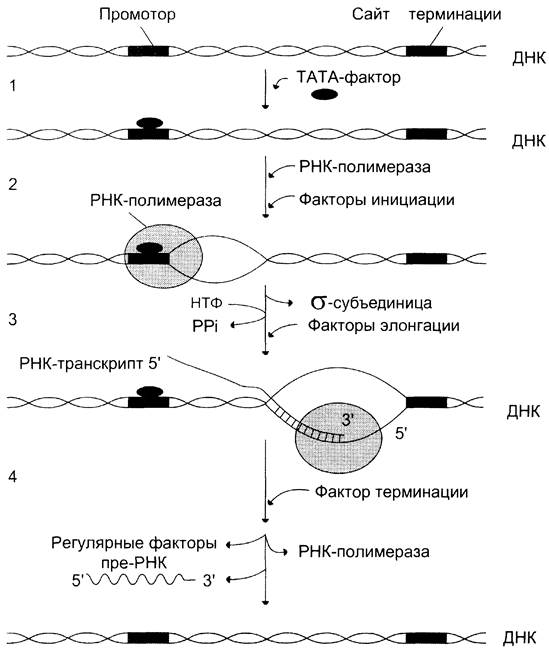
1 – присоединение ТАТА-фактора к промотору.
2 – образование транскрипционной вилки;
3 – элонгация; 4 – терминация
ЭЛОНГАЦИЯ
Факторы элонгации повышают активность РНК-полимеразы и облегчают
расхождение цепей ДНК. Синтез молекулы РНК идёт от 5'- к З'-концу комплементарно матричной цепи ДНК. На стадии элонгации, в области транскрипционной вилки, одновременно разделены примерно 18 нуклеотидных пар ДНК.
Растущий конец цепи РНК образует временную гибридную спираль, около 12 пар
нуклеотидных остатков, с матричной цепью ДНК. По мере продвижения РНК-полимеразы по матрице в направлении от 3'- к 5'-концу впереди неё происходит расхождение, а позади – восстановление двойной спирали ДНК.
ТЕРМИНАЦИЯ
Раскручивание двойной спирали ДНК в области сайта терминации делает его
доступным для фактора терминации. Завершается синтез РНК в строго определенных участках матрицы – терминаторах (сайты терминации).
Фактор терминации облегчает отделение первичного транскрипта (пре-мРНК),
комплементарного матрице, и РНК-полимеразы от матрицы. РНК-полимераза может вступить в следующий цикл транскрипции после присоединения субъединицы σ.
У бактерий существует 2 механизма терминации транскрипции:
ρ-зависимый механизм, при котором ρ-белок дестабилизирует водородные связи между матрицей ДНК и мРНК, высвобождая молекулу РНК.
ρ-независимый, при котором транскрипция останавливается, когда только что синтезированная молекула РНК формирует стебель-петлю, за которой расположено несколько урацилов (....УУУУ), что приводит к отсоединению молекулы РНК от матрицы ДНК.
Вопрос 36 Первичный транскрипт и его процессинг. Рибозимы как пример каталитической активности нуклеиновых кислот. Биороль.
Первичные транскрипты мРНК подвергаются ряду ковалентных модификаций до
их использования в качестве матрицы в синтезе белка.
1. Модификация 5'-конца: модификации пре-мРНК начинаются на стадии
элонгации. Когда длина первичного транскрипта достигает примерно 30 нуклеотидных
остатков, происходит кэпирование его 5'-конца.
Осуществляет кэпирование гуанилилтрансфераза, кот. гидролизует
макроэргическую связь в молекуле ГТФ и присоединяет нуклеотиддифосфатный остаток 5'- фосфатной группой к 5'-концу синтезированного фрагмента РНК с образованием
5',5'- фосфодиэфирной связи.
Последующее метилирование остатка гуанина в составе ГТФ с образованием
N7-метилгуанозина завершает формирование кэпа.
Значение: модифицированный 5'-конец обеспечивает инициацию трансляции
(рибосома для синтеза белка распознает только кэпированный конец), защищает от действия 5'-экзонуклеаз в цитоплазме, стимулирует сплайсинг (удаление интронов)
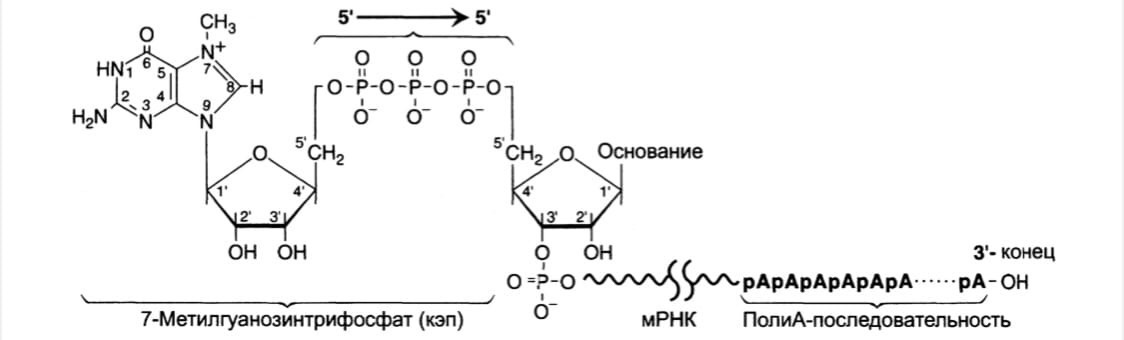
2. Модификация 3'-конца: 3'-конец большинства транскриптов, синтезированных
РНК-полимеразой II, также подвергается модификации, при которой специальным ферментом полиА-полимеразой формируется полиА-последовательность (полиА-«хвост»), состоящая из 100-200 остатков адениловой кислоты.
Сигналом к началу полиаденилирования является последовательность
-AAUAAA- на растущей цепи РНК.
Фермент полиА-полимераза, явл. экзонуклеазой,, разрывает 3'-фосфоэфирную связь после появления в цепи РНК специфической последовательности -AAUAAA
К 3'-концу в точке разрыва полиА-полимераза наращивает полиА-«хвост».
Наличие полиА-последовательности на 3'-конце облегчает выход мРНК из ядра и замедляет её гидролиз в цитоплазме.
Первичный транскрипт – строго комплементарная матрице нуклеиновая кислота
(пре-мРНК), содержащая экзоны и интроны.
Интроны – некодирующие последовательности нуклеотидов, присутствующие в ДНК, но не входящие в состав зрелой мРНК.
Экзоны – кодирующие последовательности, присутствующие в мРНК.
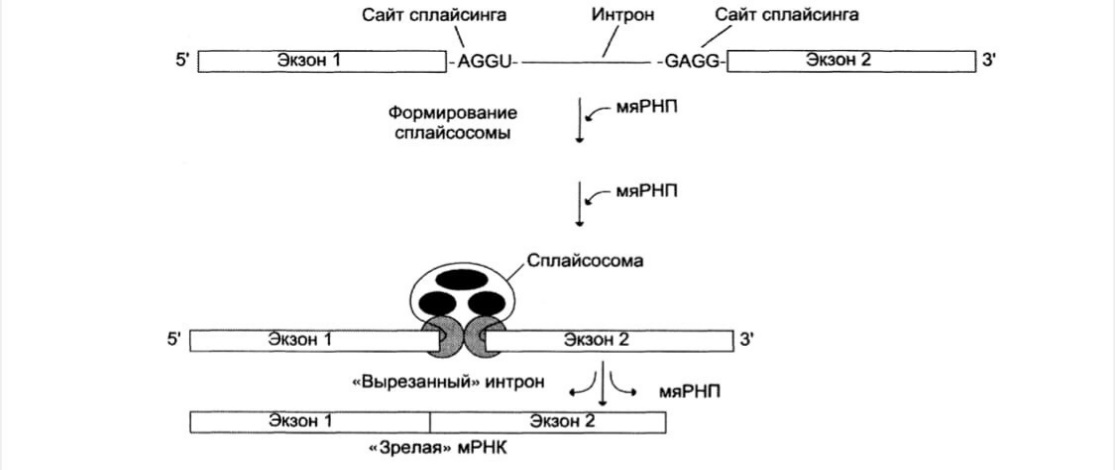
Сплайсинг – вырезание интронов из первичного транскрипта и сшивание концов
экзонов друг с другом. В результате сплайсинга, происходящего в ядре, из первичных транскриптов мРНК образуются молекулы «зрелой» мРНК, поступающие далее в цитоплазму к рибосомам для синтеза белка.
Процесс «вырезания» интронов протекает при участии малых ядерных
рибонуклеопротеинов (мяРНП), в состав кот. входит малая ядерная РНК (мяРНК), нуклеотидная цепь которой связана с белковым остовом, состоящим из нескольких протомеров.
На первой стадии процесса мяРНП связываются со специфическими
последовательностями первичного транскрипта (сайты сплайсинга), далее к ним присоединяются другие мяРНП.
Сплайсосома – десятки белков и 6 мяРНК, обеспечивающих сплайсинг
Она катализирует реакцию расщепления 3',5'-фосфодиэфирной связи на границе
экзона с интроном. Последовательность интрона удаляется, а два экзона соединяются.
Образование 3',5'-фосфодиэфирной связи между двумя экзонами катализируют мяРНК, входящие в структуру сплайсосомы.
Рибозимы – это каталитически активные молекулы РНК.
У прокариотов рибозимы осуществляют самосплайсинг, в процессе которого
интроны, расположенные между экзонами первичных транскриптов РНК «выщепляют сами себя» из молекулы РНК и сшивают кодирующие последовательности, образуя зрелую мРНК. Отличительной особенностью таких каталитически активных интронов считают высокую специфичность в отношении фосфодиэфирных связей определенных участков на РНК.
В клетках эукариот сплайсинг незрелых молекул мРНК осуществляет сплайсосома
с входящими в состав мяРНК.
В медицине рибозимы используют для расщепления специфических мРНК-
мишеней, что приводит к нарушению биосинтеза соответствующего белка.
Вопрос 37 Регуляция транскрипции у прокариот. Теория оперона, регуляция по типу индукции и репрессии (примеры).
Теория оперона (Жакоба и Моно): оперон – структурная единица генома
прокариот, представляющая собой комплекс генов белков, функции которых в метаболических процессах тесно связаны.
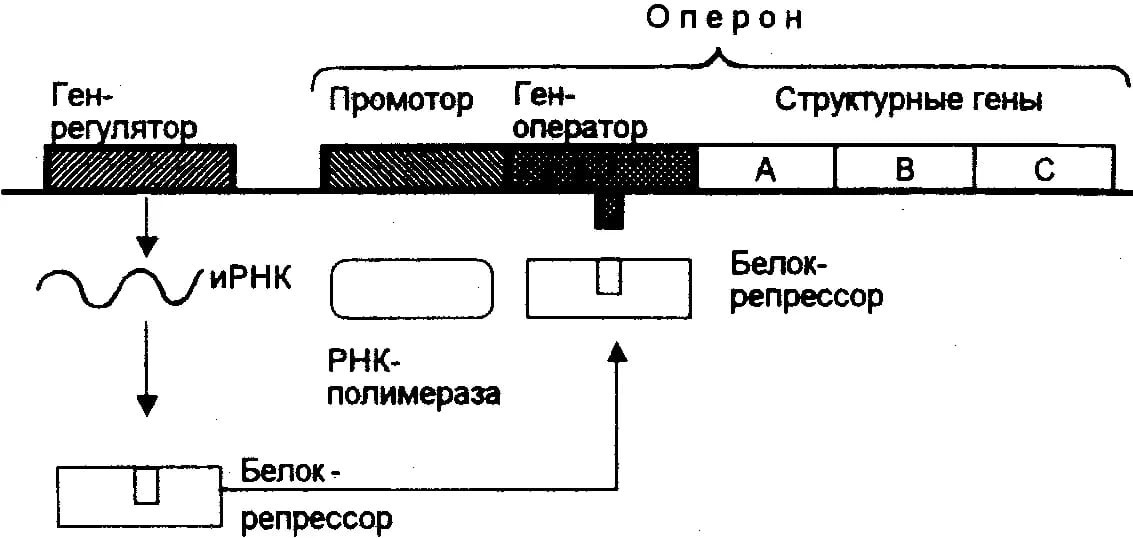
Включает:
Структурные гены;
Промотор – участок ДНК, распознаваемый РНК-полимеразой;
Оператор – участок ДНК, к которому присоединяется регуляторный белок.
Ген-регулятор отвечает за синтез регуляторного белка, не входит в состав оперона.
Структурные гены оперона экспрессируются согласованно, либо все они
транскрибируются – оперон активен и синтезируется полицистронная мРНК, служащая матрицей для синтеза всех белков этого оперона, либо ни один из генов
не прочитывается – оперон неактивен.
Связывание РНК-полимеразы с промотором зависит от присутствия белка-
репрессора на операторе. Белок-репрессор синтезируется в клетке с постоянной скоростью и имеет сродство к операторному участку.
Структурно участки промотора и оператора частично перекрываются, поэтому
присоединение белка-репрессора к оператору создаёт стерическое препятствие для присоединения РНК-полимеразы.
Пример индукции синтеза белков: Lac-оперон (лактозный оперон) Е. coli, -
оперон, в котором закодированы белки, участвующие в усвоении лактозы.
Клетки Е. coli обычно растут на среде, используя в качестве источника углерода
глюкозу. Если в среде культивирования глюкозу заменить на лактозу, то через нескольких минут клетки адаптируются к изменившимся условиям и начинают продуцировать 3 белка, обеспечивающих утилизацию лактозы. Один из этих белков – фермент β-галактозидаза, катализирующий гидролиз лактозы до глюкозы и галактозы.
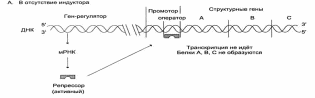
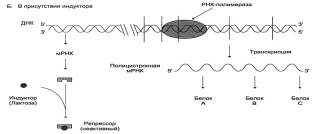
Так, в отсутствие индуктора (лактозы) белок-репрессор связан с оператором, что
препятствует связыванию РНК-полимеразы с промотором, и транскрипция структурных генов оперона не идёт. Если в среде появляется индуктор (лактоза), то он присоединяется к белку-репрессору, изменяет его конформацию и снижает сродство к оператору. РНК-полимераза связывается с промотором и транскрибирует структурные гены.
Пример репрессии синтеза белков: триптофановый и гистидиновый опероны
Снижение конц. фермента в бактер. клетке путём репрессии синтеза ферментов.
Клетки Е. coli растут на среде, содержащей в качестве источника азота соль
аммония, и им необходимо синтезировать все ферменты, необходимые для синтеза 20 АК.
Если добавить в среду одну из аминокислот, например, триптофан или гистидин, то
клетка перестанет вырабатывать ферменты, необходимые для синтеза этих аминокислот из аммиака и источника углерода (репрессия конечным продуктом).
При отсутствии в среде Гис или Три регуляторный белок-репрессор не имеет
сродства к оператору и происходит синтез ферментов для построения АК.
Когда в среду добавляют Гис, (корепрессор), он присоединяется к белку-
репрессору. В результате конформационных изменений в молекуле репрессора комплекс белка-репрессора и корепрессора (Гис) приобретает сродство к оператору, присоединяется к нему, и транскрипция оперона прекращается.