Материал: билеты
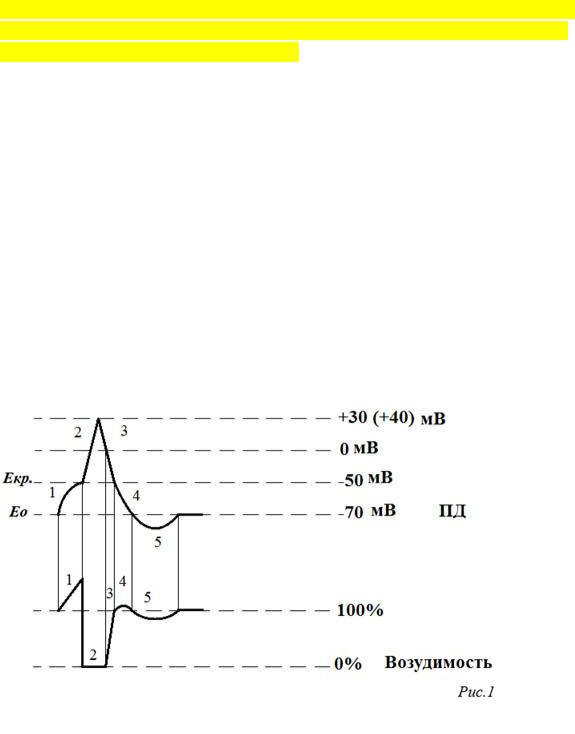
Критический уровень мембранного потенциала (КУМП) –такое значение потенциала покоя, при достижении которого открываются потенциалзависимые каналы для натрия и возникает ПД.
Следовые потенциалы
Следовая деполяризация связана с инерционностью закрытия натриевых каналов.
Следовая гиперполяризация - с работой электрогенного ионного насоса.
7. Уровень поляризации клеточных мембран, как регулятор функционального состояния ткани (зависимость возбудимости от потенциала покоя; изменения возбудимости при потенциале действия).
Мембранный потенциал (или потенциал покоя) – это разность потенциалов между наружной и внутренней поверхностью мембраны в состоянии относительного физиологического покоя.
Потенциал покоя возникает в результате двух причин:
1)неодинакового распределения ионов по обе стороны мембраны. Внутри клетки находится больше всего ионов К, снаружи его мало. Ионов Na и ионов Cl больше снаружи, чем внутри.
2)избирательной проницаемости мембраны для ионов.. Клеточная мембрана проницаема для ионов K, малопроницаема для ионов Na и непроницаема для органических веществ.
Потенциал действия — волна возбуждения, перемещающаяся по мембране живой клетки в процессе передачи нервного сигнала.
Комментарий к Рис. – ПД:
Ео –начальный заряд (заряд в состоянии покоя).
Екр. – заряд, при достижении которого открываются все потенциал-зависимые натриевые каналы.
Разница между Екр. и Ео – это порог деполяризации (минимальный уровень деполяризации необходимый для протекания ПД).
1 – Начальная деполяризация (локальный ответ).
2 – Быстрая деполяризация.
3 – Реполяризация.
4 – Фаза следовой деполяризации или следовой отрицательный потенциал. 5 – Следовая гиперполяризация или следовой положительный потенциал.
Очень интересным вопросом является зависимость возбудимости клетки от фазы ПД.
В состоянии покоя уровень возбудимости определяется разницей между Екр. и Ео, и чем меньше эта разница, тем больше возбудимость.
Комментарий к Рис.1 – Возбудимость:
1 – Повышение возбудимости в фазу локального ответа связано с уменьшением порога деполяризации, т.е. мембранный потенциал приближается к критическому.
2 – Фаза абсолютной рефрактерности – отсутствие возбудимости во время возбуждения. Соответствует фазе быстрой деполяризации и началу реполяризации. Ее длительность в нервных клетках 1-3мс, в мышечных клетках 3-5мс. Отсутствие возбудимости объясняется следующим: Во время быстрой деполяризации открыты все натриевые каналы, поэтому повторное раздражение не может быть вызвано(т.к. лдя него требуется открытие натриевых каналов) В начале реполяризации, при положительном потенциале, все натриевые каналы инактивированы, что препятствует возникновению ПД. В фазу абсолютной рефрактерности даже сверхсильное раздражение не может вызвать ответную реакцию.
3 – Фаза относительной рефрактерности – фаза низкой возбудимости, которая постепенно возрастает, соответствует фазе реполяризации ПД. Низкая возбудимость связана с частичной инактивацией натриевых каналов и высокой калиевой проводимостью. Восстановление возбудимости связано с постепенным восстановлением нормального закрытого состояния натриевых каналов и снижением выхода калия. В эту фазу порог раздражения увеличен, т.е. клетка может генерировать ПД в ответ на действие вильных раздражителей.
4 – Фаза супернормальной возбудимости (экзальтации) – период повышенной возбудимости в фазу следовой реполяризации. Очередной ПД можно вызвать более слабым раздражителем – это связано с тем что мембранный потенциал находится ближе к Екр., т.е. порог деполяризации низкий.
5 – Фаза субнормальной возбудимости – снижение возбудимости в период следовой гиперполяризации. Увеличение разницы между Екр. и Ео приводит к повышению порога раздражения.
Возбудимость в тканях изменяется в ходе ритмического раздражения. Те частоты, которые повышают возбудимость тканей, а значит, повышают функциональное состояние тканей, называют оптимальными (от20 до 100Гц). При этом каждый импульс, который попадает в фазу супернормальной возбудимости, приводит к тому, что амплитуда мышечных сокращений увеличивается. Высокие же частоты наоборот снижают возбудимость тканей и называются пессимальными. При их воздействии каждый импульс
попадает в фазу относительной рефрактерности, и мышечное сокращение становится слабее..
8. Межклеточная передача информации (электрическая, химическая). Электрический синапс. Химический синапс, его элементы. Передача информации через химический синапс.
Термин синапс (от греческого sy'napsys - соединение, связь) ввел И. Шеррингтон в 1897 году.
В настоящее время синапсами называют специализированные функциональные контакты между возбудимыми клетками (нервными, мышечными, секреторными), служащие для передачи и преобразования нервных импульсов. По характеру контактирующих поверхностей различают: аксо-аксональные, аксо-дендритические, аксо-соматические, нервно-мышечные, нейро-капиллярные синапсы.
Передача информации через синапс может осуществляться химическим или электрическим путем. Смешанные синапсы (включают электр. и хим. передачу информации)
Электрический синапс (эфапс) — электрический щелевой контакт между двумя примыкающими нейронами или иными возбудимыми клетками, которая образуется в виде узкой щели, содержащей характерные только для этого типа контактов элементы (т. н. щелевой контакт или нексус). В отличие от химического синапса, являющегося строго односторонним химическим контактом и традиционно называемого собственно синапсом, эфапс является принципиально иным образованием, способным, как правило, передавать сигнал в обоих направлениях (хотя существуют и выпрямляющие электрические синапсы).
Элементы синапса:
пресинаптическую мембрану,
постсинаптическую мембрану ,
синаптическую щель.
Строение химического синапса
Передача информации в химических синапсах осуществляется через синаптическую щель - область внеклеточного пространства шириной 10-50 нм, разделяющую мембраны пре- и постсинаптических клеток. В пресинаптическом окончании содержатся синаптические везикулы (рис. 5.2) - мембранные пузырьки диаметром около 50 нм., в каждом из которых заключено 1х104 - 5х104 молекул медиатора. Общее количество таких пузырьков в пресинаптических окончаниях составляет несколько тысяч. Цитоплазма синаптической
бляшки содержит митохондрии, гладкий эндоплазматический ретикулум, микрофиламенты.
Передача сигнала в химическом синапсе (возбуждающий)
При деполяризации входят ионы Са2+=>смена заряда =>пузырьки с медиатором встраиваются в мембрану, в щель =>диффузия с постсинаптической мембраной к рецепторам =>открываются ионные каналы для Na+ =>возникает локальный ответ => ПД
Тормозящий
K+ из клетки, а Cl- в клетку => гиперполяризация => увеличение отрицательного заряда.
9. Классификация синаптических медиаторов и рецепторов. Процессы, происходящие в возбуждающем и тормозном синапсах.
Передача информации между клетками осуществляется химическим и электрическим способами через синапсы.
Медиаторами в синапсе могут быть:
моноамины: ацетилхолин, дофамин, норадреналин, серотонин, гистамин.
аминокислоты: гамма-аминомасляная кислота, глутаминовая кислота, глицин, таурин и др. К медиаторам относятся АТФ, нейропептиды (вещество Р, энкефалин, эндорфин и др.)
Синтез медиатора осуществляется в теле нервной клетки, в везикулах медиатор транспортируется к нервному окончанию.
В нейромышечном синапсе медиатор может синтезироваться и упаковываться в везикулы в нервном окончании.
Один нейрон, как правило, синтезирует и использует во всех своих синапсах один медиатор. Это принцип Дейла. Но возможно исключение: использование одним нейроном нескольких медиаторов (ацетилхолин + АТФ, или ацетилхолин + пептид).
Классификация рецепторов к медиаторам:
Каждому медиатору соответствует свой рецептор, получивший название от медиатора: холинорецептор, адренорецептор, ГАМК - рецептор и т. д.
С наружной стороны мембраны рецептор имеет участки, обладающие сродством к медиатору. С внутренней стороны рецептор может быть связан с катионным или анионным каналами. Взаимодействие медиатора с рецептором приводит к открытию каналов, движению ионов. Это вызывает де - или гиперполяризацию мембраны и метаболический эффект в клетке.
Локализация рецепторов и медиаторов.
Вскелетной мышце – медиатор АХ, рецептор – Н-ХР (никотинчувствительный холинорецептор).
Вгладкой мышце – медиатор АХ, рецептор М-ХР –мускариночувствительный, медиатор норадреналин, рецептор – альфа или бета – адренорецепторы.
Внервной ткани – медиаторы ацетилхолин, катехоламины, дофамин, вещество Р, гистамин, серотонин, пептиды, гамма-аминомаслянная кислота (ГАМК), глицин; рецепторы: полимодальные или специфические к каждому медиатору.
Возбуждающий или тормозной характер медиатора зависит от характера рецептора, с которым он взаимодействует. Так, ацетилхолин в скелетной мышце взаимодействует с Н- ХР, вызывает возбуждение, в сердце взаимодействует с Н-ХР, вызывает торможение.
Механизм синаптической передачи в возбуждающем синапсе.
Нервный импульс → деполяризация пресинаптической мембраны → вход кальция в пресинаптическую терминаль → квантовый выход медиатора → взаимодействие с постсинаптическим рецептором → открытие хемочувствительных натриевых каналов → вход натрия в клетку → развитие возбуждающего постсинаптического потенциала, который по свойствам похож на локальный ответ → ВПСП возбуждает соседнюю электрогенную мембрану, в которой открываются потенциалзависимые натриевые каналы, натрий входит в клетку и возникает потенциал действия.
Механизм синаптической передачи тормозном синапсе.
Медиатор, взаимодействуя с постсинаптическим рецептором, увеличивает проницаемость для ионов калия и хлора → возникает гиперполяризация постсинаптической мембраны → тормозной постсинаптический потенциал (ТПСП). Это снижает возбудимость клетки и снижает вероятность ответа на приходящий сигнал.
10. Активность скелетных мышц в условиях естественной деятельности (функции моторных единиц, виды сокращений, особенности нервных влияний, биоэлектрические явления, механизм сокращения и расслабления).
Мышцы – биологические структуры, преобразующие химическую энергию в механическую и тепловую.
Режимы мышечных сокращений.
1)изотонический – укорочение мышцы или ее отдельных волокон без изменения напряжения (в реальных условиях практически отсутствуют )
2)изометрический – длина не меняется, меняется тонус – при статической работе.