Материал: билеты

Конечная реполяризация в клетках миокарда обусловлена постепенным уменьшением проницаемости мембраны для кальция и повышением проницаемости для калия. В результате входящий ток кальция уменьшается, а выходящий ток калия возрастает, что обеспечивает быстрое восстановление мембранного потенциала покоя (фаза 4) .
91. Характеристика возбудимости и возбуждения рабочего кардиомиоцита. Потенциал покоя, величина, ионный механизм. Изменения возбудимости в фазы потенциала действия.
Клетки миокарда обладают возбудимостью, но им не присущаавтоматия. В период диастолы мембранный потенциал покоя этих клеток стабилен, и его величина выше, чем в клетках водителей ритма (80–90 мВ). Потенциал действия в этих клетках возникает под влиянием возбуждения клеток водителей ритма, которое достигает кардиомиоцитов, вызывая деполяризацию их мембран.
Потенциал действия клеток рабочего миокарда состоит из фазы быстрой деполяризации, начальной быстрой реполяризации, переходящей в фазу медленной реполяризации (фаза плато) и фазы быстрой конечной реполяризации. Фаза быстрой деполяризации создается резким повышением проницаемости мембраны для ионов натрия, что приводит к возникновению быстрого входящего натриевого тока. Последний, однако, при достижении мембранного потенциала 30–40 мВ, инактивируется и в последующем, вплоть до инверсии потенциала (около +30 мВ) и в фазу «плато», ведущее значение имеют кальциевые ионные токи. Деполяризация мембраны вызывает активацию кальциевых каналов, в результате чего возникает дополнительный деполяризующий входящий кальциевый ток.
Конечная реполяризация в клетках миокарда обусловлена постепенным уменьшением проницаемости мембраны для кальция и повышением проницаемости для калия. В результате входящий ток кальция уменьшается, а выходящий ток калия возрастает, что обеспечивает быстрое восстановление мембранного потенциала покоя. Длительность потенциала действия кардиомиоцитов составляет 300– 400 мс, что соответствует длительности сокращения миокарда.
Инициатором сокращения миокарда, как и в скелетной мышце, является потенциал действия, распространяющийся вдоль поверхностной мембраны кардиомиоцита. Поверхностная мембрана волокон миокарда образует впячивания, так называемые поперечные трубочки (Т-система), к которым примыкают продольные трубочки (цистерны) саркоплазматического ретикулюма, являющиеся внутриклеточным резервуаром кальция (рис. 3).Саркоплазматическийретикулюм в миокарде выражен в меньшей степени, чем в скелетной мышце. Нередко к поперечной Т-трубочке примыкают не две продольные трубочки, а одна (система диад, а не триад, как в скелетной мышце). Считается, что потенциал действия распространяется с поверхностной мембраны кардиомиоцита вдоль Т-трубочки вглубь волокна и вызывает деполяризацию цистерны саркоплазматического ретикулюма, что приводит к освобождению из цистерны ионов кальция.
Следующим этапом электромеханического сопряжения является перемещение ионов кальция к сократительным протофибриллам. Сократительная система сердца представлена сократительными белками – актином и миозином, и модуляторными белками – тропомиозином и тропонином. Молекулы миозина формируют толстые нити саркомера, молекулы актина – тонкие нити. В состоянии диастолы тонкие актиновые нити входят своими концами в промежутки между толстыми и более короткими миозиновыми нитями. На толстых нитях миозина располагаются поперечные мостики, содержащие АТФ, а на нитях актина – модуляторные белки – тропомиозин и тропонин. Эти белки образуют единый комплекс, блокирующий активные центры актина, предназначенные для связывания миозина и стимуляции его АТФазной активности. Сокращение волокон миокарда начинается с того момента, когда тропонин связывает вышедший из саркоплазматического ретикулюма в межфибриллярное
181

пространство кальций. Связывание кальция вызывает изменения конформации тропонинтропомиозинового комплекса. В результате этого открываются активные центры, и происходит взаимодействие актиновых и миозиновых нитей. При этом стимулируется АТФазная активность миозиновых мостиков, происходит распад АТФ и выделяющаяся энергия используется на скольжение нитей друг относительно друга, приводящее к сокращению миофибрилл. В отсутствие ионов кальция тропонин препятствует образованию актомиозинового комплекса и усилению АТФазной активности миозина. Морфологические и функциональные особенности миокарда свидетельствуют о тесной связи между внутриклеточным депо кальция и внеклеточной средой. Так как запасы кальция во внутриклеточных депо невелики, большое значение имеет вход кальция в клетку во время генерации потенциала действия (рис. 3). Потенциал действия и сокращение миокарда совпадают во времени. Поступление кальция из наружной среды в клетку создает условия для регуляции силы сокращения миокарда. Большая часть входящего в клетку кальция, очевидно, пополняет его запасы в цистернах саркоплазматического ретикулюма, обеспечивая последующие сокращения.
Удаление кальция из межклеточного пространства приводит к разобщению процессов возбуждения и сокращения миокарда. Потенциалы действия при этом регистрируются почти в неизменном виде, но сокращения миокарда не происходит. Вещества, блокирующие вход кальция во время генерации потенциала действия, вызывают аналогичный эффект. Вещества, угнетающие кальциевый ток, уменьшают длительность фазы плато и потенциала действия и понижают способность миокарда к сокращению. При повышении содержания кальция в межклеточной среде и при введении веществ, усиливающих вход этого иона в клетку, сила сердечных сокращений увеличивается. Таким образом, потенциал действия выполняет роль пускового механизма, вызывая освобождения кальция из цистерн саркоплазматического ретикулюма, регулирует сократимость миокарда, а также пополняет запасы кальция во внутриклеточных депо.
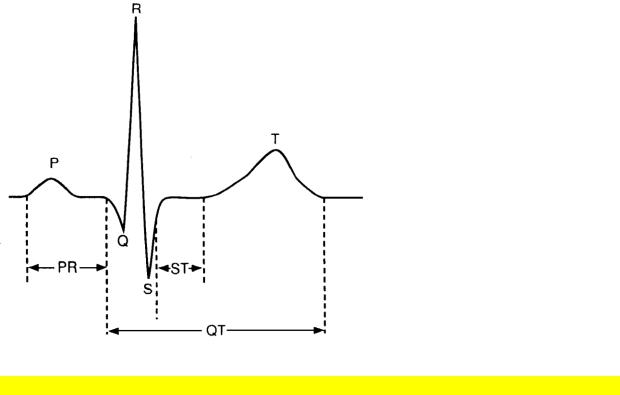
92. Биоэлектрические явления в целом сердце. Электрокардиография (ЭКГ) и ее физиологическое значение. Параметры ЭКГ в норме. Оценка проведения возбуждения в сердце по ЭКГ. Оценка автоматии сердца по ЭКГ
Возбудимость, проводимость и автоматию можно оценить по ЭКГ – суммарная электрическая активность сердца.
Электрокардиография – метод регистрации биопотенциалов в целом сердце.
ЭКГ – запись колебаний разности потенциалов, возникающих на поверхности сердца или окружающей его проводящей среде при распространении возбуждения по сердцу.
Невозбужденный участок сердца – «+» возбужденный „-”. Силовые линии распределены вдоль тела. В зависимости от положения сердца и положения электродов вид ЭКГ будет различный: по форме и амплитуде зубцов.
Параметры ЭКГ в норме. Интервалы в секундах:
Р = 0,06 – 0,11
РQ – 0,12 – 0,20
QRS – 0,06 – 0,1
ST – 0 – 0,15
182
Т – 0,05 – 0,25 QT – 0,27 – 0,55 R – R – 0,8
Амплитуда зубцов в милливольтах:
Р – 0,1 – 0,2 Q – 0,3
R – 1,0 – 2,0
S – 0 – 0,06
Т – 0,2 – 0,6
Оценка физиологических свойств сердечной мышцы по ЭКГ.
1)Оценка возбудимости по амплитуде зубцов, т. к. амплитуда – суммарная электрическая активность волокон.
2)Оценка проводимости – по длительности интервалов PQ и QRS.
3)Оценка автоматии:
а) положение водителя ритма по чередованию зубцов ЭКГ;
б) уровень автоматии – по частоте.
Автоматия.
1)В норме – дыхательная аритмия, на вдохе R – R короче, на выдохе длиннее.
2)Смена водителя ритма.
3)Экстрасистолы – внеочередное сокращение. Причины:
а) внеочередное возбуждение синусового узла;
б) пробуждение других желудочковых водителей ритма. При этом появляется компенсаторная пауза.
Новые очаги возбуждения, лежащие вне синусового узла, , называются эктопическими
4) Отсутствие ритма:
а) трепетание – асинхронность сокращений волокон миокарда (частота – 400).
б) мерцание – число сокращений до 1000.
183
93. Сокращение и расслабление кардиомиоцитов. Электромеханическое сопряжение.
Различают кардиомиоциты трех типов:
1)сократительные, или рабочие, сердечные миоциты;
2)проводящие, или атипичные, сердечные миоциты, входящие в состав так называемой проводящей системы сердца;
3)секреторные, или эндокринные, кардиомиоциты.
Сократительные кардиомиоциты образуют основную часть миокарда. Они содержат 1-2 ядра в центральной части клетки, а миофибриллы расположены по периферии. Места соединения кардиомиоцитов называются вставочные диски, в них обнаруживаются щелевые соединения (нексусы) и десмосомы. Форма клеток в желудочках - цилиндрическая, в предсердиях - неправильная, часто отросчатая.
Кардиомиоциты покрыты сарколеммой, состоящей из плазмолеммы и базальной мембраны, в которую вплетаются тонкие коллагеновые и эластические волокна, образующие "наружный скелет" кардиомиоцитов, - эндомизий. Базальная мембрана кардиомиоцитов содержит большое количество гликопротеинов, способных связывать ионы Са2+. Она принимает участие в перераспределении ионов Са2+ в цикле сокращение - расслабление. Базальная мембрана латеральных сторон кардиомиоцитов инвагинирует в канальцы Т-системы (чего не наблюдается в соматических мышечных волокнах).
Сокращение кардиомиоцитов, как и других мышечных клеток является следствием генерации ПД. В них, как и скелетных миоцитах, имеется система трубочек саркоплазматического ретикулума, содержащих ионы кальция. При возникновении ПД эти ионы выходят из трубочек в саркоплазму. Начинается скольжение миофибрилл. Но в сокращении кардиомиоцитов принимают участие и ионы кальция, входящие в них в период генерации ПД. Они увеличивают длительность сокращения и обеспечивают пополнение запасов кальция в трубочках.
184

94. Регуляция насосной функции сердца. Клеточные механизмы: хронотропные и инотропные эффекты. Интраорганные инотропные механизмы (законы сердца) – в ответ на увеличение притока, на сопротивление оттоку, на изменение ЧСС.
Регуляция работы сердца – это изменение его деятельности в соответствии с потребностями организма. Результатом изменения работы сердца является МОК.
МОК = ЧСС • СВ. Регулирующие механизмы могут обеспечить изменение МОК через каждую из этих величин.
МОК при различных условиях у здорового человека.
Показатели |
СВ |
ЧСС |
МОК |
|
|
|
|
Состояние покоя |
60 – 80 мл. |
60 – 85 в мин. |
4,5 – 5л. |
|
|
|
|
Максимум |
130 мл. |
240 . |
До 30л. |
активности |
|
|
|
|
|
|
|
Изменение МОК наблюдается при ортостатике, гиподинамии, физической работе, эмоциональном напряжении, в экстремальных ситуациях.
Классификация механизмов, регулирующих деятельность сердца.
Различают клеточный, интраорганный и экстракардиальный уровень регуляции.
Регулирующие влияния распространяются на все физиологические свойства: возбудимость, проводимость, сократимость и автоматию.
1)Изменение автоматии отражается в изменение частоты – хронотропный эффект.
2)Изменение сократимости в силе сокращения – инотропный эффект.
3)Изменение возбудимости – батмотропный.
4)Изменение проводимости – дромотропный.
Клеточные механизмы регуляции.
Речь идет о клетках водителях ритма. Клеточный уровень регуляции обеспечивает хронотропный эффект – изменение ЧСС.
Причины, вызывающие изменение хронотропного эффекта.
1)Смена водителя ритма.
2)Изменение крутизны медленной диастолической деполяризации.
3)Изменение ПП.
4)Изменение величины КУМП.
Механизм. В основе лежит изменение скорости диастолической деполяризации.
185