Дипломная (вкр): Генетические маркеры функционального долголетия крупного рогатого скота
Молекулярно-генетические маркеры нашли широкое применение в таких областях науки, как генетика, селекция, картирование хромосом, изучение механизмов эволюции, животноводстве и других [Хавкин, 1997].
К тому же использование молекулярно-генетических маркеров развило методы локализации и контроля локусов, определяющих качественные и количественные признаки [Xueyi, Ribaut, Gjnzalez-de-Leon, 1997].
Таким образом, на большом количестве типов
полиморфизма ДНК построено постоянно пополняющееся огромное количество
молекулярных маркеров для генетических исследований [Алтухов, Салменкова,
2002].
.2.1 Характеристика некоторых видов молекулярно-генетических маркеров
Однонуклеотидные замены или SNP (от английского Single Nucleotide Polymorphism). SNP точечные нуклеотидные замены (мутации) являются наиболее распространенным типом полиморфных маркеров и представляют собой замену одного нуклеотида на другой. Частота встречаемости - один на тысячу пар оснований, а их суммарное число в геноме коров достигает трех миллионов (по некоторым данным до десяти миллионов). Соотношение биаллельных и триаллельных однонуклеотидных замен сильно сдвинуто в сторону биаллельных, так как в процентах доля триалельных составляет одну десятую процента. Поэтому SNP маркеры обладают низким уровнем полиморфизма и высоким эволюционным консерватизмом.
Однонуклеотидные замены локализованные в кодирующих областях делятся на две категории:
синонимичные - не несут за собой замены аминокислотного состава в кодируемых белках
несинонимичные - изменяют аминокислотный состав кодируемых белков.
Однонуклеотидные замены могут изменять промоутерную активность, влиять на конформацию ДНК и пре-мРНК, определяя уровень транскрипции генов и эффективность сплайсинга.
Другим типом маркеров являются повторяющиеся последовательности, обладающие высокой степенью полиморфизма. Такие повторяющиеся последовательности могут быть подразделены на два класса: диспергированные повторы и тандемные повторы [Зиновьева, Эрнст, 2008]. К первым относятся такие мобильные элементы как рэтроэлементы SINE (short interspersed nuclear elements; 90-500 п.н.), LINE (long interspersed nuclear elements; до 7000 п.н.) и LTR (long terminal repeats) содержащие ретропозоны.
Тандемные повторы - это повторения определённых последовательностей в ориентации «голова к хвосту». Поскольку в них в одном локусе повторяется один и тот же мотив, эти последовательности получили названия сателлитов.
Тандемные повторы стали одними из самых высокоинформативных генетических маркеров у сельскохозяйственных животных, так как число тандемных повторов у различных животных в сателлитах сильно варьирует.
В зависимости от длины повторяющихся участков их подразделяют на несколько классов: максисателлиты, минисателлиты и микросателлиты [Georges, Massey, 1991].
Максисателлиты - общая длина
повторяющихся последовательностей больше  5 п.н.
Минисателлиты - общая длина фрагментов составляет от нескольких тысяч до 30 тысяч п.н. При этом длина мотивов варьирует от десяти до шестидесяти п.н. [Jeffreys, 1985].
Микросателлиты - общая длина фрагмента, как правило, не превышает 350 п.н, а длина мотива составляет обычно от двух до шести п.н. [Tautz, 1989]. Микросателлиты находятся как в транскрибируемых, так и нетранскрибируемых участках ДНК.
С точки зрения информативности можно разделить полиморфные маркеры на биаллельные (однонуклеотидные замены) и мультиаллельные (тандемные повторы и диспергированные системы).
В нашем исследовании особое внимание
уделено однонуклеотидным заменам, так как именно к ним относятся генетические
маркеры долголетия крупного рогатого скота.
.3 Методы исследования SNP-маркеров.
Полимеразная цепная реакция и полиморфизм длин рестрикционных фрагментов
Метод полимеразной цепной реакции был разработан Кэри Мюллисом (фирма “Cetus”, США) в 1983 году [Mullis, Faloona, Scharf, 1986]. Данный метод позволяет добиться значительного увеличения концетрации малых фрагментов ДНК в биологическом материале (амплификация), а так же дает возможность вводить мутации, клонировать гены, сращивать фрагменты ДНК и так далее.
Сущность метода заключается в стандартном биологическом процессе, проходящем во всех клетках - репликация - комплементарное достраивание ДНК на матрице материнской ДНК при помощи специфического класса ферментов ДНК-зависимых ДНК-полимераз [Engelke, Krikos, Bruck, 1990].
Для реализации данного метода необходимы следующие компоненты:
ДНК-матрица (ДНК или её часть, содержащая искомый специфический фрагмент);
праймеры (синтетические олигонуклеотиды, включающие 20-30 п.н., комплементарные последовательностям ДНК на границах определённого специфического фрагмента);
смесь дезоксинуклеотидтрифосфатов (dNTP), т. е. смесь четырёх dNTP, являющихся материалом для синтеза новых комплементарных цепей ДНК;
фермент Taq-полимераза (термостабильная ДНК-полимераза, выделенная из термофильных бактерий Thermis aquaticus, катализирующая удлинение цепей праймеров путём последовательного присоединения нуклеотидных оснований к растущей цепи синтезируемой ДНК);
буферный раствор (реакционная среда, содержащая ионы магния (Mg2+), необходимые для поддержания активности фермента);
ПЦР представляет собой многократное увеличение числа копий (амплификация) специфического участка ДНК, катализируемое ферментом Tag-полимеразой (рисунок 1). Каждый цикл амплификации включает три этапа, протекающих в различных температурных режимах:
Денатурация - нагревание двухцепочечной молекулы (при температуре 98). Приводит к расхождению цепей.
Отжиг - праймеры связываются с комплементарными участками на одноцепочечных молекулах ДНК.
Элонгация - работа Тaq-полимеразы,
которая в течении этой стадии достраивает вторую цепь ДНК на одноцепочечной
матрице используя праймер как стартовую площадку.
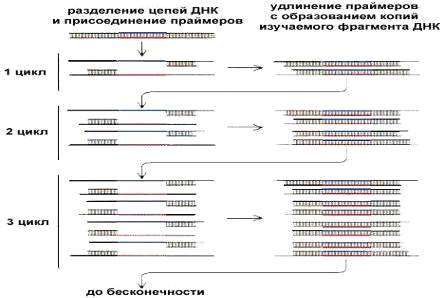
Рисунок 1 - Схема полимеразной цепной реакции (ПЦР)
Условно ПЦР метод можно разделить на два класса: амплификация с использованием неспецифических праймеров (RAPD-анализ или Random Amplified Polymorphic DNA) [Williams, Kubelic, Livak, 1990; Caetano-Anolles, Bassam, Gresshoff, 1991] и амплификация с использованием специфических маркеров.
ПЦР имеет ряд преимуществ. К ним относятся экономность в использовании ДНК, легкость в выполнении, автоматичность процесса, а также не требует радиоактивных меток для визуализации полиморфизмов [Кожухова, 1998].
Полиморфизм длин рестрикционных фрагментов. Мутации, возникающие в участках узнавания определённых рестриктаз, делают эти участки ДНК нечувствительными к действию ферментов. Обнаруживается это по изменению длины рестрикционных фрагментов [Никишина, 2007]. ПДРФ-анализ включает в себя следующие стадии:
выделение геномной ДНК;
рестрикция выделенной ДНК спецефической эндонуклеазой;
электрофоретическое разделение образовавшихся фрагментов;
идентификация этих фрагментов
На электрофореграмме при отсутстии рестрикции выявляют один крупный фрагмент, соответствующий по длине последовательности ДНК между двумя соседними участками рестрикции для той же эндонуклеазы. При наличии рестрикции в полиморфном участке на электрофореграмме будет присутствовать меньший по размерам фрагмент, равный расстоянию между полиморфным участком рестрикции и одним из ближайших постоянных участков рестрикции.
Изучить состояние полиморфного локуса можно, проведя ПЦР и затем рестрикцию амплифицированного фрагмента. При обработки рестриктазой амплифицированного фрагмента его длина не изменится, если в исследуемой области ДНК отсутствует сайт узнавания. В том случае, когда участок узнавания не изменён, обработка рестриктазой создаст два фрагмента с общей длиной равной длине исходного фрагмента.
Таким образом, ПЦР-ПДРФ является
наиболее удобным методом и дает хорошие результаты при изучении генетических
маркеров функционального долголетия крупного рогатого скота.
.4 Генетические маркеры
функционального долголетия крупного рогатого скота
Введение в линии животных желательных генотипов за счет особей, обладающих повышенным функциональным долголетием, является одним из главных подходов повышения функционального долголетия. Однако, функциональное долголетие относится к количественным признакам (QTL), т.е. его обуславливают целый комплекс генов, каждый из которых оказывает незначительный эффект на проявление признака. Вместе с тем, можно предположить, что лишь некоторые из них (главные гены) оказывают наибольшее влияние на проявление признака. Отсюда вытекает, что поиск и последующее использование предпочтительных аллелей главных генов приобретает большое значение в селекции [Зиновьева, 2008]. В данном случае в селекции коров с наибольшим продуктивным долголетием.
Поиском главных генов функционального долголетия занимаются многие исследователи. Однако наибольших успехов добилась группа польских ученых возглавляемая Д. Сцида [Evaluating markers … , 2011]. Ими были взяты образцы у 567 польских коров голштинской породы, для которых были идентифицированы генотипы с девятью однонуклеотидными полиморфизмами, локализованными в пяти генах:
бутирофилин (butyrophilin)
подсемейство 1, член  (BTN1A1,
база данных GeneBank - GeneID: 282157),
расположенный на BTA23: P35Q [Seyfert, Lüthen, 1998] и
K468R [Taylor, Everest, Smith, 1996];
- ацил-КоА: диацилглицерин ацилтрансфераза, 1 ген (DGAT1, база данных GeneBank - GeneID: 282609) на BTA14: K232A;
ген рецептора лептина (LEPR, база данных GeneBank - GeneID: 497205) на BTA3: T945M [A missense mutation …, 2004];
ген лептина (LEP, база данных GeneBank - GeneID: 280836) на BTA4: Y7F [A new mutation …, 2003], R25C и A80V [Konfortov, Licence, Miller, 1999], а также замена С/Т в позиции 963 [Leptin promoter …, 2005];
АТФ-связывающий транспортер, подсемейство G, член 2 (ABCG2, база данных GeneBank - GeneID: 536203) на BTA6: Y581S [Identification of…, 2005].
Также было выяснено влияние этих генов на молочные характеристики коров: DGAT1 и ABCG2 существенно влияют на молочные характеристики, LEP и LEPR дают противоречивые результаты, а об эффекте BTN1A1 не сообщается.
Распределение генотипов среди коров
приведено в таблице 2.
Таблица 2 - Количество коров, приходящееся на каждый класс генотипа
|
BTN1A1 |
DGAT1 |
LEPR |
LEP |
ABCG2 |
||||
|
P35Q |
K468R |
K232A |
T945M |
Y7F |
R25C |
A80V |
С/Т |
Y581S |
|
QQ=168 |
KK=411 |
KK = 80 |
MM = 5 |
YY=523 |
CC=133 |
AA=283 |
CC=157 |
YY=552 |
|
QP=280 |
KR=146 |
KA= 282 |
MT=106 |
YF = 43 |
CR=280 |
AV=231 |
CT=287 |
YS = 15 |
|
PP=119 |
RR = 10 |
AA= 205 |
TT=456 |
FF = 1 |
RR=154 |
VV = 53 |
TT=123 |
SS = 0 |
Генотипы были определены с помощью метода ПЦР - ПДРФ. Генотипы BTN1A1, DGAT1, LEP, LEPR определены Д. Сцида и И. Комисарек. Генотип ABCG2 определен И. Комисарек и А. Зарнецки.
Результатами их исследований стали данные, свидетельствующие о том, что полиморфизмом с самым высокой степенью влияния на функциональное долголетие крупного рогатого скота является LEP-R25C, расположенный внутри гена лептина. Для него относительный риск выбраковки животных с генотипом СС в 3,14 раз выше, чем для гетерозиготных животных.
Помимо LEP-R25C, также у FF
гомозигот по полиморфизму LEP-Y7F риск выбраковки в 3,64 раза больше, чем у YY
гомозигот. Риск выбраковки VV
гомозигот в LEP-A80V
в 1,83 раза больше чем АА гомозигот. Различия рисков между другими генотипами
полиморфизмов в пределах других генов гораздо меньше (рисунок 2).
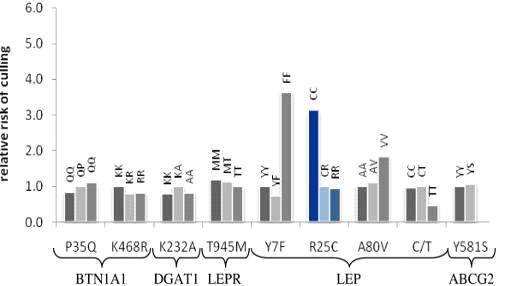
Рисунок 2 - Различия рисков выбраковки между
генотипами полиморфизмов в пределах исследуемых генов
Эти результаты указывают на связь LEP с функциональной долговечностью и хорошо подтверждаются другими исследованиями в области здоровья пищевого поведения и воспроизводства молочного скота, которые также определяют функциональное долголетие. Ввиду растущей важности функциональных признаков молочного скота, LEP полиморфизмы следует рассматривать в качестве маркеров, определяющих решение в пользу того или иного выбора при селекции крупного рогатого скота.
Также была зарегистрирована корреляция гена лептина и его белка с долголетием у людей. Отмечено, что лептин способен снижать уровень висцерального жира, глюкозы в крови, инсулина и одновременно повышать уровень грилина ( «гормон голода» ).
На основе этих данных, можно с уверенностью
сказать, что крупный рогатый скот является хорошей примером для изучения
долголетия у людей.
.4.1 Характеристика гена лептина
У крупного рогатого скота ген лептина расположен в четвертой хромосоме. Он состоит из трех экзонов и двух интронов. Только два экзона кодируют последовательность аминокислот лептина. Кодирующая область гена лептина (ее длина составляет 501 п.н.) входит в состав второго и третьего экзонов, которые разделены интроном с длиной примерно 2 тыс. п.н. Область промоутера охватывает около 3 тыс. п.н. [Sharifzadeh, Doosti, 2012].
Интересующие однонуклеотидные полиморфизмы
расположены в разных зонах гена лептина. Их местоположение приведено в таблице
3 [Komisarek, 2012].
Таблица 3 - Описание отдельных полиморфизмов гена LEP, приведенных в этом исследовании
|
Наименование SNP (и другие наименования, используемы в литературе |
Нуклеотидные замены |
Область гена |
Область белка лептина |
|
C(-963)T |
C/T |
промоутер |
- |
|
Y7F (A252T) |
A/T |
2 экзон |
Сигнльная последовательность |
|
R25C (C305T, R4C, C73T, LepKpn2I) |
T/C |
2 экзон |
α-спираль А |
|
A80V (LepHphI, A59V) |
C/T |
3 экзон |
α-спираль B |
Ген лептина - высокополиморфный ген. В нем, помимо интересующих нас SNP-полиморфизмов, расположены еще около шестидесяти однонуклеотидных замен. Причем, большинство из них расположено в интронных областях, что снижает их влияние на конформацию, аминокислотный состав и функцию белка лептина. Однако, рассматриваемы нами SNP-полиморфизмы расположены в кодирующих областях гена.
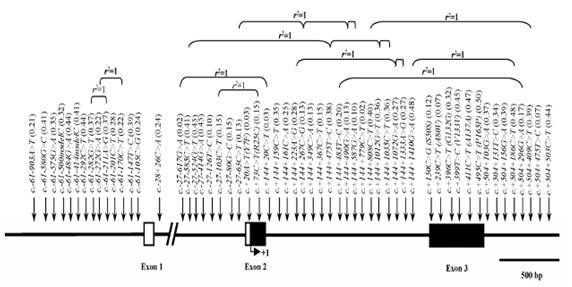
Рисунок 3 - SNP-полиморфизмы
и структура гена лептина
Было установлено, полиморфизм R25C помимо влияния на функциональное долголетие также влияет на содержание жира и белка в молоке, на легкость отелов и гестацию [All Association of bovine…, 2010].
Была показана связь между полиморфизмом A80V и функциональным долголетием и рентабельностью животных [Szyda, Komisarek, 2007].
Таким образом, для исследования SNP
полиморфизмов гена лептина методом ПЦР-ПДРФ необходимо знать его структуру (LEP
состоит из трех экзонов и двух интронов), а также место локализации
полиморфизмов (промоутер, второй и третий экзоны).
.4.2 Структура белка лептина и его физиологические функции у крупного рогатого скота