Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
зованного субстрата составило 2-4% от массы среды, а для метанолизного материала – строго 2%.
Исходя из особенностей роста культур на средах, содержащих лигноцеллюлозные компоненты в установленных оптимальных концентрациях, можно судить о том, что именно метанолизные опилки в качестве компонента питательной среды, являются более доступным, чем материал нативных опилок, субстратом, поскольку выступают как фактор, положительно влияющий на развитие (табл. 16).
Таблица 16 – Скорость роста штаммов ксилотрофных базидиомицетов на плотных питательных средах с добавлением нативного и дериватизированного источников лигнина, 2% от массы среды (мм/сут±∆*, 26°С, повторность трехкратная)
Вид |
Штамм |
|
Питательныесреды |
|
|
|
КГА(контроль) |
КГА,опилкимеха- |
КГА,опилкиме- |
|
|
|
ническогоразмола |
танолизные |
|
|
|
|
|
Продолжениетаблицы16 |
|
|
|
|
1 |
2 |
3 |
4 |
5 |
I. obliquus |
IO-1 |
3,17±0,08a |
3,06±0,06 |
3,9±0,04b |
|
IO-2 |
2,75±0,05 |
3,14±0,08a |
4,0±0,09b |
|
IO-3 |
1,43±0,03 |
2,05±0,21a |
3,5±0,03b |
Ph. tremulae |
Pht-1 |
1,18±0,02a |
1,22±0,04a |
1,25±0,03b |
|
Pht-2 |
1,11±0,02 |
1,18±0,05a |
1,33±0,01b |
|
Pht-3 |
1,28±0,02a |
1,25±0,06a |
1,35±0,04b |
S. crispa |
AI-10 |
0,94±0,01a |
0,95±0,01a |
1,11±0,05b |
F. pinicola |
Fpi-1 |
7,13±0,20 |
9,35±0,14a |
10,74±0,09b |
|
Fpi-2 |
8,30±0,15 |
8,84±0,14a |
12,22±0,18b |
|
Fpi-3 |
9,32±0,16a |
7,56±0,13 |
11,15±0,15b |
L. sulphureus |
РD-99 |
7,07±0,03 |
9,93±0,07a |
10,43±0,10b |
|
РD-01 |
8,23±0,13 |
9,46±0,11a |
11,54±0,24b |
|
Аh-02 |
6,10±0,10 |
10,03±0,04a |
10,36±0,20a |
G. applanatum |
G-1 |
8,03±0,03 |
8,95±0,09a |
11,22±0,18b |
|
G-2 |
7,22±0,14 |
10,23±0,08a |
12,03±0,06b |
|
G-3 |
9,30±0,15 |
11,18±0,09a |
12,71±0,05b |
G. lucidum |
Gl-1 |
9,60±0,10a |
8,67±0,03 |
12,52±0,05b |
|
Gl-3 |
12,07±0,03a |
10,02±0,16 |
13,39±0,06b |
|
Gl-6 |
5,97±0,14a |
6,13±0,25a |
9,92±0,03b |
F. fomentarius |
AH-96 |
6,20±0,10 |
8,22±0,15a |
12,31±0,13b |
155
Продолжениетаблицы16
1 |
2 |
3 |
4 |
5 |
|
Nic-02 |
4,13±0,07 |
9,61±0,12a |
14,07±0,22b |
|
Lp-05 |
4,40±0,06 |
7,09±0,05a |
14,40±0,07b |
P. cinnabarinus |
PyC-1 |
5,17±0,09 |
5,51±0,04a |
11,2±0,19b |
|
PyC-2 |
6,40±0,10a |
6,53±0,01a |
9,37±0,12b |
|
PyC-4 |
6,67±0,08a |
7,72±0,04a |
9,12±0,24b |
H. annosum |
Han-1 |
0,79±0,08a |
0,24±0,02 |
0,72±0,06a |
|
Han-2 |
0,93±0,03b |
0,32±0,05 |
0,72±0,01a |
|
Han-3 |
0,88±0,02a |
0,84±0,08a |
0,88±0,01a |
F. hepatica |
Fh-1 |
3,13±0,03 |
4,46±0,07a |
6,11±0,04b |
|
Fh-1а |
2,97±0,03 |
4,72±0,03a |
5,00±0,04b |
|
Fh-5 |
3,95±0,13 |
5,03±0,02a |
6,34±0,03b |
F. velutipes |
FV-1 |
5,55±0,01a |
5,33±0,06 |
6,14±0,01b |
|
FV-3 |
4,98±0,04 |
5,92±0,03a |
6,18±0,02b |
|
FV-9 |
6,14±0,01 |
8,13±0,02b |
7,12±0,02a |
P. ostreatus |
PlО(23)-08 |
9,33±0,11a |
11,01±0,09b |
9,30±0,07a |
|
PlО(Lam)- |
10,01±0,03a |
9,97±0,01a |
10,59±0,02b |
|
08 |
|
|
|
|
PlО(23)- |
11,99±0,07 |
13,03±0,12a |
14,22±0,06b |
|
08 |
|
|
|
S. commune |
SZ-1 |
10,89±0,04a |
12,01±0,09b |
10,61±0,05 |
|
SZ-2 |
12,13±0,12 |
12,66±0,11a |
13,98±0,09b |
|
SZ-3 |
12,11±0,16 |
13,03±0,04a |
13,10±0,01a |
P. aurivella |
PhoA-3 |
6,88±0,16a |
8,32b |
6,75a |
|
PhoA-4 |
6,05±0,16 |
8,02a |
8,03a |
|
PhoA-5 |
5,32±0,16 |
7,77a |
8,15b |
*р>0,05
Примечание: результаты теста Дункана – a,b – маркировка групп по достоверным различиям в показателях
Полученные результаты могут объясняться тем, что при добавлении небольшого количества опилок в агаризованную среду, был создан «эффект разбавления», элиминирующий токсическое действие избытка метоксильных групп и олигомерных соединений лигнина, устранены такие лимитирующие развитие факторы как дефицит легкодоступных сахаров и влаги.
В первом варианте опыта (внесение опилок механического размола в КГА) существенных отличий от контроля (КГА) выявлено не было, хотя для отдельных штаммов установлена незначительная стимуляция роста. Во втором варианте (метанолизные
156
опилки, КГА) следует отметить факт достоверной стимуляции роста большинства штаммов, как видов – представителей бурой и белой гнили, так и представителей всех трофических стратегий.
Особенно |
заметная стимуляция роста мицелия выявлена |
||
у видов (в |
порядке убывания эффекта |
стимуляции): |
|
F. fomentarius, |
F. hepatica, |
P. cinnabarinus, |
Ph. tremulae, |
I. obliquus, S. crispa.
Таким образом, на видовом уровне прослеживается разная степень стимуляции развития мицелия путем добавления к питательному субстрату источников целлюлозы и лигнина. Причем заметно, что в целях интенсификации роста культур целесообразно использование именно метанолизных опилок. Отдельного внимания заслуживает факт оптимизации роста видов-паразитов, обычно слабо развивающихся в культуре, посредством обогащения питательной среды лигноцеллюлозными компонентами в низких концентрациях.
Была исследована способность культур к формированию телеоморфы в стерильных условиях. Для этого культуры были отвиты по одному штамму каждого вида на скошенный картофель- но-глюкозный агар с добавлением нативных (первый вариант) и метанолизных опилок (второй вариант) в указанной выше концентрации, а в качестве контроля – на скошенный КГА без добавления опилок. Пробирки были помещены в условия холодильника на 5 суток, а затем извлечены из него и хранились при естественном освещении и комнатной температуре. По истечении 12-15 суток такого хранения у ряда культур было визуально отмечено формирование узелков примордиев (табл. 17). Образование зачатков плодовых тел наблюдалось в основном у грибов –
представителей |
белой гнили |
(I. obliquus, |
F. fomentarius, |
G. applanatum, |
G. lucidum, |
P. cinnabarinus, |
F. velutipes, |
P. ostreatus, S. commune и P. aurivella). Исключение составил вид,
вызывающий бурую гниль древесины - S. crispa, для которого было отмечено образование плодовых тел. Появившиеся узелки на мицелии Ph. tremulae в вариантах с добавлением как нативных, так и метанолизных опилок, дальнейшее развитие прекрати-
ли. У прочих |
культур (I. obliquus, S. crispa, |
F. fomentarius, |
|
G. applanatum, |
G. lucidum, |
P. cinnabarinus, |
F. velutipes, |
P. ostreatus, S. commune и P. aurivella) на 20-25 сутки сформиро-
157

вались типичные примордии. В вариантах с метанолизными опилками, и, реже, в вариантах с нативными, у зачатков плодовых тел этих видов появлялась тенденция к дифференциации
(табл. 17).
Таблица 17 – Формирование зачатков плодовых тел на мицелии штаммов изученных видов ксилотрофных базидиомицетах на разных средах в стерильных условиях
Вид, штамм |
Сроки появления зачатков плодовых тел (сутки после |
||||||||||||
|
холодильника) и их дифференцирование на разных сре- |
||||||||||||
|
|
|
|
|
|
дах* |
|
|
|
|
|
|
|
|
КГА (контроль) |
КГА + нативные |
КГА + метанолиз- |
||||||||||
|
|
|
|
|
|
опилки |
|
ные опилки |
|
||||
|
12 |
15 |
20 |
25 |
12 |
15 |
20 |
25 |
12 |
15 |
20 |
|
25 |
I. obliquus, IO-1 |
- |
- |
- |
- |
+ |
+ |
+ |
+д |
+ |
+ |
+д |
|
+д |
Ph. tremulae, Pht-1 |
- |
- |
- |
- |
- |
- |
+ |
+ |
- |
+ |
+ |
|
+ |
S. crispa, AI-10 |
|
|
|
|
|
|
|
+ |
|
|
+ |
|
+д |
F. pinicola, Fpi-2 |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
|
- |
L. sulphureus, РD- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
|
- |
01 |
|
|
|
|
|
|
|
|
|
|
|
|
|
G. applanatum G-1 |
- |
- |
- |
+ |
+ |
+ |
+ |
+ |
+ |
+ |
+ |
|
+д |
G. lucidum, Gl-1 |
- |
- |
+ |
+д |
+ |
+ |
+д |
+д |
+ |
+д |
+д |
|
+д |
F. fomentarius, |
- |
- |
- |
- |
- |
- |
- |
+ |
+ |
+д |
+д |
|
+д |
Nic-02 |
|
|
|
|
|
|
|
|
|
|
|
|
|
P. cinnabarinus, |
- |
- |
- |
- |
- |
- |
- |
- |
+ |
+ |
+д |
|
+д |
PyC-1 |
|
|
|
|
|
|
|
|
|
|
|
|
|
H. annosum, Han-2 |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
|
- |
F. hepatica, Fh-5 |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
|
- |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
F. velutipes, FV-9 |
- |
- |
+ |
+д |
- |
+ |
+д |
+д |
- |
+д |
+д |
|
+д |
P. ostreatus, |
- |
- |
+д |
+д |
- |
+ |
+д |
+д |
- |
+ |
+д |
|
+д |
PlО(23)-08 |
|
|
|
|
|
|
|
|
|
|
|
|
|
S. commune, SZ-2 |
- |
- |
- |
- |
- |
- |
- |
- |
- |
- |
+д |
|
+д |
P. aurivella, |
- |
- |
- |
- |
- |
- |
- |
+ |
- |
+ |
+д |
|
+д |
PhoA-5 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
* Обозначения: «-» - примордиев не отмечено; «+» отмечены зачаточные структуры примордиев (узелки); «д» - дифееренцированные примордии, заметен гименофор
158
Слабее всего была заметна дифференциация у примордиев
G. applanatum и S. crispa.
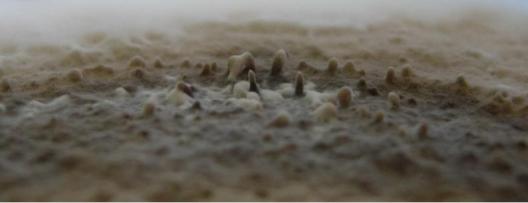
Формирование плотных остроконечных структур у G. applanatum из мицелиальных узелков произошло только на 25 сутки хранения и в вариантах с метанолизными опилками. Структуры были очень малы, имели столбчатую или шиповатую форму (рис. 34).
Рисунок 34 – Тенденция к дифференциации примордиев штамма G-1 G. applanatum на субстрате, обогащенном метанолизными источниками лигнина
Виды P. ostreatus, F. velutipes, склонные к формированию телеоморфы на стерильных средах, приступили к плодоношению в присутствии источников целлюлозы и лигнина в субстрате в более ранние сроки. Примордии на таких средах характеризовались, по сравнению с контрольными вариантами, более выраженными, типичными для видов габитусами, с хорошо выраженной дифференциацией (рис. 33, 34).
159