Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
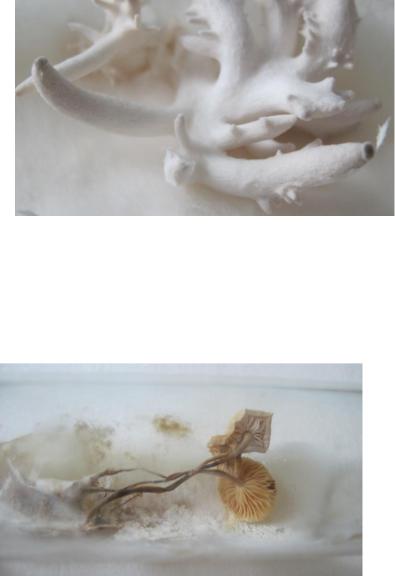
Рисунок 35 – Образование дифференцированных примордиев культурой P. ostreatus, штамм PlО(23)-08 на стерильной среде, содержащей метанолизные источники лигнина
Рисунок 36 – Образование дифференцированных примордиев культурой F. velutipes, штамм FV-9 на стерильной среде, содержащей метанолизные источники лигнина
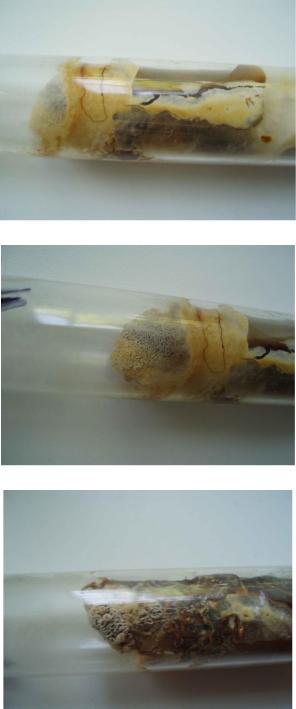
У вида I. obliquus была отмечена склонность к образованию зачатков плодовых тел на стерильной среде, но в контроле не было выявлено такой яркой морфологии примордиев и их дифференциации, как в вариантах с нативными и метанолизными опилками (рис. 37 а, б, в).
160
а)
б)
в)
Рисунок 37 – Образование примордиев на стерильной среде культурой штамма IO-1 I. obliquus: а) вариант с добавлением нативных опилок, 15 сутки; б) вариант с добавлением нативных опилок, 25 сутки; в) вариант с добавлением метанолизных опилок, 25 сутки
161
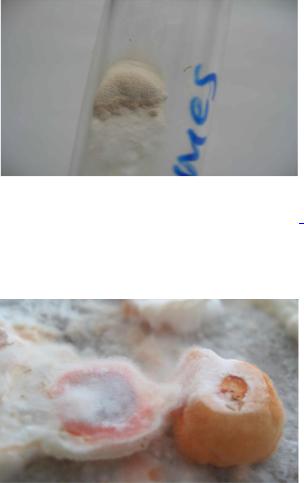
Видно, что дифференциация примордиев активнее происходила в варианте с метанолизными опилками. Дифференциация зачатков плодовых тел, формирование типичной для данных видов структуры гименофоров при развитии на таких средах были отмечены у видов F. fomentarius (штамм Nic-02), P. cinnabarinus (штамм PyC-1), S. commune (штамм SZ-2), P. aurivella (штамм
PhoA-5) (рис. 38-41). Причем названные виды наиболее четко из всех изученных продемонстрировали реакцию на присутствие в среде именно метанолизных опилок: ни в контроле, ни в варианте с нативными опилками в эти сроки образования примордиев с тенденцией к дифференциации не отмечено.
Рисунок 38 – Зачаток гименофора на мицелии F. fomentarius (штамм Nic-02), сформированный на среде с добавлением метанолизных опилок, 15 сутки
Рисунок 39 – Базидиома P. cinnabarinus (штамм PyC-1), сформированная на среде с добавлением метанолизных опилок, 20 сутки
162
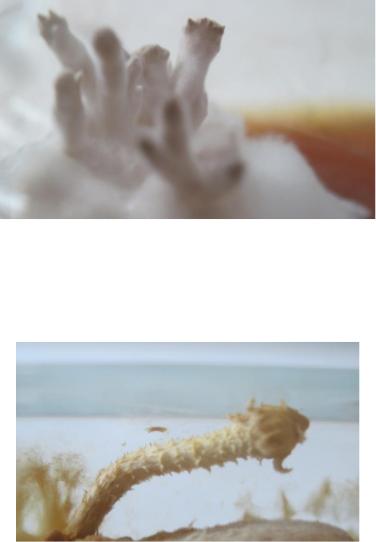
Рисунок 40 – Зачатки гименофора на примордиях S. commune (штамм SZ-2) сформированные на среде с добавлением метанолизных опилок, 20 сутки
Рисунок 41 – Базидиома P. aurivella, штамм PhoA-5, сформированная на среде с добавлением метанолизных опилок, 20 сутки
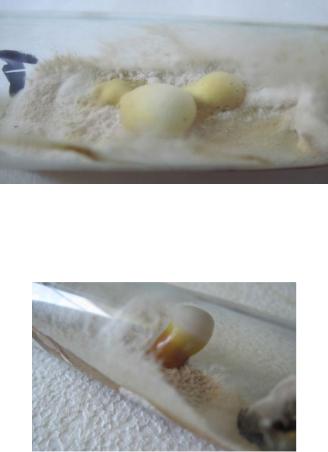
Однако наиболее интересные результаты получены при изучении возможностей стимуляции посредством обогащения питательной среды нативными и метанолизными опилками процесса плодообразования в чистой культуре у такого вида как G. lucidum. Установлено, что образование примодиев происходит и в контрольных вариантах (рис. 42). Однако обнаруженные в контроле округлые светлые кожистые структуры со временем уплотнились, уменьшились в размерах и высохли. Возможно, сказались лимитированные количества питательных веществ и влаги. Однако вегетативный мицелий довольно долго не приоб-
163
ретал визуальных признаков старения (появление темного пигмента, капель экссудата, базофилии протоплазмы клеток при микроскопическом исследовании).
В первом варианте опыта (при добавлении к среде нативных опилок) установлено формирование примордиев, склонных к дифференциации (рис. 43). Они характеризовались типичной для базидиом G. lucidum структурой и окраской поверхности. Таким образом, заметна стимуляция плодообразования обогащением питательной среды нативными источниками целлюлозы и лигнина, которые в определенной степени могут играть роль регуляторов вторичного метаболизма, а, возможно, своеобразного триггерного фактора в процессе плодообразования.
Рисунок 42 – Примордии на мицелии G. lucidum (штамм Gl-1), сформированные на КГА (контроль), 25 сутки
Рисунок 43 – Примордий на мицелии G. lucidum (штамм Gl-1), сформированный на среде с добавлением нативных опилок, 25 сутки
Наши предположения нашли подтверждение в результатах второго варианта опытов (среда с добавлением метанолизных
164