Реферат: Клітинний рух. Молекулярні механізми руху клітин. Амебоїдний та війчастий рух
Клітинний рух. Молекулярні механізми руху клітин. Амебоїдний та війчастий рух
РЕФЕРАТ
з дисципліни “Біологія клітини”
на
тему «Клітинний рух. Молекулярні механізми руху клітин. Амебоїдний та війчастий
рух»
Зміст
1. Вступ
. Уявлення про клітину. Загальний план будови клітини
. Клітинний рух
.1 Цитоскелет
.1.1 Мікротрубочки
.1.2 Мікрофіламенти
. Молекулярні механізми руху
.1 Прогрес в розумінні механізму руху клітин
.2 Рух клітин і адгезійна взаємодія
.3 Хемотаксис
. Види клітинного руху
.1 Амебоїдний рух
.2 Хвилеподібний рух мембран
.3 Миготливий рух
.4 М'язовий рух
. Амебоїдний рух
. Війчастий рух
Висновок
Використана
література
1.
Вступ
Універсальним і найдрібнішим осередком життя є
клітина. Клітинні структури властиві бактеріям, грибам, рослинам, тваринам,
людині. Це підкреслює їх спільність та органічну єдність у царстві живої
природи. Клітина- елементарна біологічна система, основна структурна та
функціональна одиниця живого, єдине ціле із структурних компонентів, основними
властивостями якої є саморегуляція, самовідтворення та самовідновлення. Багато
клітин одноклітинних та багатоклітинних організмів мають здатність до руху.
Клітинний рух - рух клітини в просторі та внутрішньоклітинний рух її
органоїдів. Він забезпечується цитоскелетом, що складається з мікротрубочок,
мікрониток та клітинного центру.
Є два типи руху клітин: за допомогою війок або джгутиків та амебоїдний.
Джгутики та війки подібні за будовою і складаються з мікротрубочок та білків,
які з ними пов’язані. Амебоїдний рух відбувається в результаті зміни
агрегатного стану периферичної частини гіалоплазми (ектоплазми), яка пов’язана
з деполімеризацією актину, а також зі зміною площі поверхні плазматичної
мембрани, що збільшується на активному кінці клітини і зменшується на
протилежному.
2. Уявлення про клітину. Загальний план будови
клітини
Клітина - структурно-функціональна одиниця всіх живих організмів, для якої характерний власний метаболізм та здатність до самовідтворення.
Організм людини утворений приблизно з 100 000 000 000 000 клітин, представлених близько 200 їхніми видами. Клітини мають сферичну (яйцеклітина), циліндричну, кубічну, призматичну (епітеліальні клітини), дископодібну(еритроцити), веретеноподібну(м'язові клітини), зірчасту (нейрони) або непостійну форму (лейкоцити крові).
Розміри клітин також істотно варіюють: більшість клітин багатоклітинного організму має розміри від 10 до 100 мкм, а найдрібніші - 2- 4 мкм. Нижня межа обумовлена тим, що клітина мусить мати мінімальний набір речовин і структур для збереження життєдіяльності, проте дуже великі розміри клітини перешкоджатимуть обміну речовин та енергії з навколишнім середовищем, а також ускладнюватимуть процеси підтримки гомеостазу. Проте деякі клітини можна побачити неозброєним оком. Перш за все до них належать клітини плодів кавуна та яблуні, а також яйцеклітини риб та птахів. Навіть, якщо один із лінійних розмірів клітини перевищує середні показники, всі інші відповідають нормі. Наприклад, відросток нейрона може перевищувати у довжину 1 м, але його діаметр все одно буде відповідати середньому значенню. Між розмірами клітин і розмірами тіла не існує прямої залежності. Так, кл тіни м'язів слона та миші мають однакові розміри.
Незважаючи на всю різноманітність форм і розмірів клітин, усі вони мають єдиний загальний план будови: вони відокремлені від навколишнього середовища поверхневим комплексом, який обмежує цитоплазму та занурений у неї спадковий апарат. Поверхневий комплекс складається з плазматичної мембрани, над мембранного та під мембранного комплексів.
За особливостями організації спадкового матеріалу розрізняють два основні типи клітин: прокаріотичні та еукаріотичні.
Еукаріотичними називають клітини, в яких хоча б на одній зі стадій розвитку наявне ядро - спеціальна структура, в якій знаходиться ДНК. До еукаріотичних організмів належать рослини, тварини та гриби.
Прокаріотична клітина не має ядра, її спадкова
інформація знаходиться прямо в цитоплазмі у зв'язаному з білками стані. Цей
комплекс ДНК і білків називається нуклеоїдом. Цитоплазма прокаріотичних клітин
містить також невелику кількість органел, тоді як еукаріотичним клітинам
властива значна різноманітність цих структур. Прокаріотами є бактерії та
архебактерії. [2]
3. Клітинний рух
Багато клітин здатні рухатись. Під цим розуміється рух клітини у просторі та внутрішньоклітинний рух її органоїдів. У рідкому середовищі переміщення клітин здійснюється рухом війок(рис.3.2) і джгутиків(рис.3.3). Деякі найпростіші а також клітини багатоклітиних пересуваються за допомогою виростів(амебоїдний рух), що утворюються на поверхні клітин (рис.3.1)Пересування клітин здійснюється за рахунок протрузії провідного краю клітинної мембрани, координованої з переміщенням тіла клітини, і залежить від механізму роботи цитоплазматичних структур, здатних реагувати на сигнали від зовнішнього середовища світу. Клітинний рух забезпечується цитоскелетом, що складається з мікротрубочок, мікрониток і проміжних філаментів та клітинним центром. Мікротрубочки- це довгі порожні циліндри,стінки яких складаються з білків. Мікронитки- дуже тонкі структури, що складаються з багатьох молекул білка, з'єднаних один з одним. Клітинний центр- органела, яка складається з двох центріолей, розташованих у світлій ущільненій ділянці цитоплазми. Центріолі мають вигляд порожнього циліндра, який складається з дев'яти комплексів мікротрубочок, по три в кожному. [4]
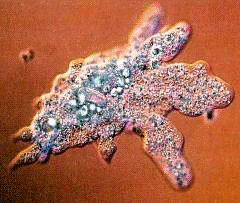
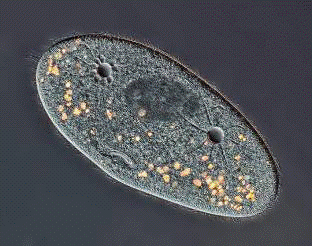
Рис. 3.1 Амебоїдний рух Рис. 3.2 Війчастий рух
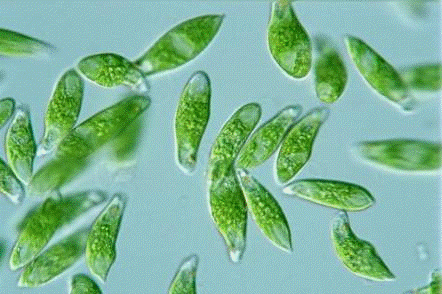
Рис. 3.3 Джгутиковий рух
.1 Цитоскелет
Цитоскелет - це складна мережа волокон, які забезпечують механічну опору для плазматичної мембрани, визначають форму клітини, розташування клітинних органел та їхнє переміщення під час поділу клітини. Його утворюють три типи волокон: мікротрубочки(рис. 3.4), мікрофіламенти(рис. 3.5) та проміжні філаменти(рис. 3.6).
Елементи цитоскелету є полімерами, мономерами яких виступають певні білкові субодиниці. На відміну від інших біополімерів, таких як самі білки чи нуклеїнові кистоли, структурні одиниці цитоскелету сполучені одне з одним слабкими не ковалентними зв'язками. Полімерна будова вигідна через те, що дає змогу клітині швидко перегруповувати цитоскелет: білкові мономери маленькі, і вони можуть швидко дисоціювати у цитоплазмі, на відміну від довгих філаментів. [13]
Проміжні філаменти складаються із субодиниць, які самі є видовженими фібрилярними білками, в той час як мономерами мікрофіламентів та мікротрубочок є глобулярні білки актин та тубулін відповідно. Білки цитоскелету можуть самоорганізовуватись у довгі філаменти, утворюючи різні типи латеральних контактів та контактів типу «хвіст-голова». У живій клітині цей процес регулюється величезною кількістю допоміжних білків.
Елементи цитоскелету можуть бути
одночасно динамічними і дуже міцними через те, що вони складаються із кількох
протофіламентів - довгих лінійних ниток, побудованих із мономерів, розміщених в
один ряд. Зазвичай протофіламенти спірально закручуються один навколо одного.
Мікротрубочки складаються із тринадцяти протофіламентів розміщених по колу,
мікрофіламенти - із двох спірально закручених, а проміжні філаменти - із
восьми. Внаслідок такої будови дисоціація мономера із кінця фібрили
відбувається значно легше ніж розрив посередині, так як для дисоціації
необхідне руйнування тільки одного повздовжнього зв'язка і одного-двох
латеральних, а для розриву - великої кількості повздовжніх зв'язків. Тому
перебудова елементів цитоскелету відбувається відносно легко, і в той же час
вони можуть легко протистояти тепловим пошкодженням і витримувати різні
механічні впливи. [3]
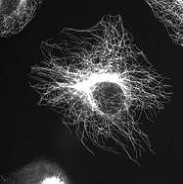
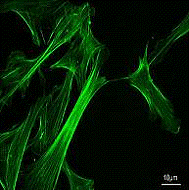
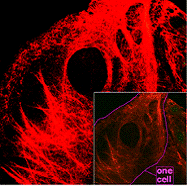
Рис. 3.4 Мікротрубочки Рис. 3.5
Мікрофіламенти Рис. 3.6 Проміжні філаменти
.1.1 Мікротрубочки
Мікротрубочки - це циліндричні порожнисті органели, які пронизують усю цитоплазму клітини. Їхній діаметр становить близько 25 нм, а товщина стінки - 6-8 нм. Вони утворені численними молекулами білка тубуліну, які спочатку формують 13 ниток, що нагадують намиста, а потім складаються у мукротрубочку. Мікротрубочки утворюють цитоплазматичну мережу, яка надає клітині форми та об'єму, зв'язують цитоплазматичну мембрану з іншими компонентами клітини, спрямовують транспорт речовин по клітині, беруть участь у русі клітини, розподілі генетичного матеріалу та везикулярному транспорті. Вони входять до складу клітинного центру та органел руху - джгутиків і війок.
Мікротрубочки(рис. 3.7) виявляються
в цитоплазмі інтерфазних клітин, де вони розташовуються поодинці або невеликими
пухкими пучками, або у вигляді щільноупакованих мікротрубочок в складі
центріолей, базальних тілець і у війках та джгутиках. При діленні клітин більша
частина мікротрубочок клітини входить до складу веретена поділу.
У морфологічному відношенні мікротрубочки є довгими порожнистими циліндрами із
зовнішнім діаметром 25 нм. Стінка мікротрубочок складається з полімеризованих молекул
білка тубуліну. При полімеризації молекули тубуліну утворюють 13 поздовжніх
протофіламентів, які скручуються в порожнисту трубку. Розмір мономера тубуліну
становить близько 5 нм, рівного товщині стінки мікротрубочки, в поперечному
перерізі якої видно 13 глобулярних молекул.
Молекула тубуліну являє собою гетеродимер, що складається з двох різних субодиниць: з α-тубуліну та β-тубуліну, які при асоціації утворюють власне білок тубулін, спочатку поляризований. Обидві субодиниці мономера тубуліну пов'язані з ГТФ, однак на α-субодиниці ГТФ не піддається гідролізу, на відміну від ГТФ на β-субодиниці, де при полімеризації відбувається гідроліз ГТФ до ГДФ. При полімеризації молекули тубуліну об'єднуються таким чином, що з β-субодиницею одного білка асоціюється α-субодиниця наступного білка і т.д. Отже, окремі протофібрили виникають як полярні нитки, і відповідно вся микротрубочка теж є полярною структурою, що має швидко зростаючий плюс-кінець та повільно зростаючий мінус-кінець
На плюс-кінці мікротрубочки відбувається
включення димерів тубулінів, пов'язаних з ГТФ, на мінус-кінці переважає
дисоціація тубулінів
При достатній концентрації білка полімеризація відбувається спонтанно. При
спонтанній полімеризації тубулінів здійснюється гідроліз однієї молекули ГТФ, пов'язаної
з β-тубуліном.
Під час нарощування довжини мікротрубочки зв'язування тубулінів йде з більшою
швидкістю на зростаючому плюс-кінці. Але при недостатній концентрації тубуліну
мікротрубочки можуть розбиратися з обох кінців. Розбиранню мікротрубочок сприяють
зниження температури і наявність іонів Са2 +. [6]
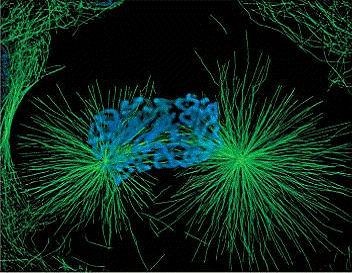
Рис. 3.7 Мікротрубочки(зелені)
.1.2 Мікрофіламенти
Мікрофіламенти(рис. 3.8), або мікронитки - немембранні органели, які мають ниткоподібну форму и утворені білком актином. Вони беруть участь у русі клітини, процесах мембранного транспорту, міжклітинному впізнаванні, поділі цитоплазми клітини. У м'язових клітинах взаємодія актинових мікрониток з міозиновими волокнами забезпечує скорочення.
Основним білком мікрофіламентів є актин. Це неоднорідний білок, у різних клітинах можуть бути різні його варіанти або ізоформи, кожна з яких кодується своїм геном. Так, у ссавців є шість різних актинів: один у скелетних м'язах, один у серцевому м'язі, два типи у гладких м'язах (один з них у судинах) і два нем'язові цитоплазматичні актину є універсальними компонентами будь-яких клітин ссавців. Всі ці ізоформи актину дуже подібні за амінокислотними послідовностям, варіантними у них є кінцеві ділянки, які визначають швидкість полімеризації, але не впливають на скорочення. Така схожість актинів, незважаючи на деякі відмінності, визначає їх загальні властивості. Актин має молекулярну масу близько 42 тис. і у мономерній формі має вигляд глобули (G-актин), що містить у своєму складі молекулу АТФ. При його полімеризації (рис. 3.9) утворюється тонка фібрила (F-актин) товщиною 8 нм, що представляє собою пологу спіральну стрічку. Актинові мікрофіламенти полярні за своїми властивостями. При достатній концентрації G-актин починає мимоволі полімеризуватися. При такій спонтанній полімеризації актину на нитки мікрофіламента, які утворилися, один з її кінців швидко зв'язується з G-актином (плюс-кінець мікрофіламента) і тому зростає швидше, ніж протилежний (мінус-кінець). Якщо концентрація G-актину буде недостатньою, то фібрили F-актину, які утворилися, починають деполімеризуватися. В розчинах, що містять так звану критичну концентрацію G-актину, встановлюватиметься динамічна рівновага між полімеризацією і деполімеризацією, у результаті чого фібрила F-актину матиме постійну довжину. З цього випливає, що актинові мікрофіламенти являють собою дуже динамічні структури, які можуть виникати і рости або ж, навпаки, розбиратися і зникати у залежності від наявності глобулярного актину. На зростаючому кінці нитки актину вбудовуються мономери, що містять АТФ. У міру наростання полімеру відбувається гідроліз АТФ, і мономери залишаються пов'язаними з АДФ. Молекули актину, з'єднані з АТФ, міцніше взаємодіють один з одним, ніж мономери, пов'язані з АДФ. [7]
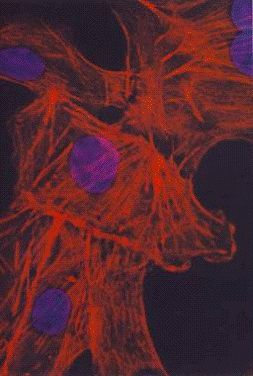
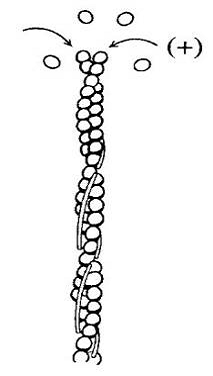
Рис. 3.8 Мікрофіламенти Рис. 3.9
Полімеризація актину
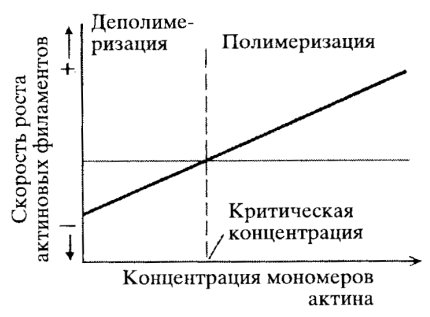
Рис. 3.10 Швидкість росту
мікрофіламентів при різних концентраціях вільного актину
3.2 Клітинний центр. Центріолі
Клітинний центр - немембранна органела, розташована у тваринних клітинах поблизу ядра, у рослинних клітинах вона відсутня. Довжина клітинного центру складає близько 0,2-0,3 мкм, а діаметр - 0,1-0,15 мкм. Клітинний центр утворений двома центріолями, які лежать у взаємно перпендикулярних площинах, і променистою сферою з мікротрубочок. Клітинний центр бере участь в утворенні війок та джгутиків, у процесах збирання мікротрубочок та розподілі спадкового матеріалу клітини.
Центріолі - це щільні тільця.
Центріолі(рис. 3.11) мають відносно постійне місце розташування в клітині: вони
займають її геометричний центр, але іноді в процесі розвитку можуть
переміщатися ближче до периферичних ділянок. Кожна центріоль утворена дев'ятьма
групами мікротрубочок, зібраних по три - триплетами. Функція центріолі полягає
в утворенні веретена поділу під час розмноження клітин. Крім того вони беруть
участь в утворенні війок та джгутиків. [5]
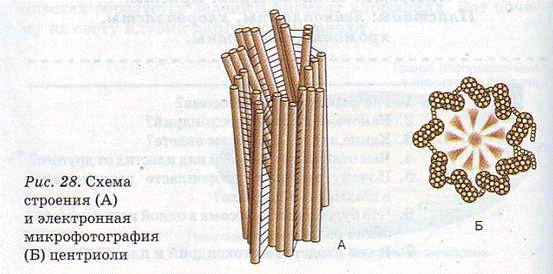
Рис. 3.11 Схема будови(А) і
електронне фото(Б) центріолі
4. Молекулярні механізми руху
.1 Прогрес в розумінні механізму
руху клітин
Пересування клітин здійснюється за
рахунок протрузії ведучого краю клітинної мембрани, координованого з
переміщенням тіла клітини, і залежить від механізму роботи цитоплазматичних
структур, здатних реагувати на сигнали від зовнішнього світу. Протрузія, як
тепер стало зрозуміло, є наслідком полімеризації актину і було показано що
GTP-ази сімейства Rho є проміжними ланками для передачі сигналів від мембранних
рецепторів. Однак основна прогалина в розумінні регульованої рухливості
заключалась у нерозумінні зв'язку між сигнальними шляхами і власне механізмом
рухливості. Структурні, біохімічні та генетичні дослідження допомогли
ідентифікувати деякі зв'язки, які були відсутні, і дозволили отримати
обґрунтовану робочу модель, що описує шляхи поширення і механізми передачі і
декодування сигналів, керуючих пересуванням клітин. [8]
.2 Рух клітин і адгезійна взаємодія
Переміщення клітин визначається перебудовою адгезії до поверхні, на якій відбувається рух. Адгезійні локуси фомуються у результаті сигнальних взаємодій між позаклітинним матриксом і актиновим цитоскелетом всередині клітини, і вони асоціюються зі специфічними структурами актинових філаментів. клітина рух мікрофіламент
.3 Хемотаксис
Хемотаксис - спрямований рух клітин
уздовж градієнту концентрації під дією хімічних реагентів. В основі хемотаксису
лежить здатність клітини відповідати на градієнт концентрації хемотаксичного
медіатора при величині цього градієнта між провідними і кінцевими полюсами не
менше 0,1%. Фагоцити й інші клітини можуть перемішатися хаотично і направлено.
Направлений рух називається хемотаксисом. Відомо безліч речовин, що викликають
хемотаксис, наприклад анафілатоксини, продукти життєдіяльності бактерій,
лейкотрієни. [15]