Реферат: Клітинний рух. Молекулярні механізми руху клітин. Амебоїдний та війчастий рух
5. Види клітинного руху
Всі типи активного руху незалежно від того, забезпечуються вони безпосередньо процесами в цитоплазмі одноклітинних організмів, діями спеціальних клітинних органел - війок, джгутиків чи особливих м’язових волокон, пов’язані із волокнистими компонентами цитоплазми. Їх називають мікрофіламентами і наявні вони в усіх скоротливих структурах. У залежності від їхнього розміщення та способів взаємодії в клітині виникають різні типи руху:
амебоїдного;
хвилеподібного;
миготливого; - м’язового.
.1 Амебоїдний рух
Деякі одноклітинні - корененіжки, амеби(рис. 5.1) та окремі клітини спеціалізованих тканин - макрофаги, лейкоцити можуть рухатися за рахунок амебоїдної зміни форми. При цьому у напрямку руху клітин утворюються вирости цитоплазми - псевдоподії, які можуть бути у вигляді лопатей або ниточок. Механізм амебоїдного руху нагадує елементарні процеси, що спостерігаються при м’язовому скороченні. Раніше вважали, що цитоплазма переливається в напрямку руху, але сьогодні це твердження скасоване. Вчені довели, що в периферичному желеподібному шарі цитоплазми - ектоплазмі, протікають активні скоротливі процеси, за рахунок чого золеподібна ендоплазма рухається в напрямку руху амеби. Рух псевдоподій можна розглядати як рух рідини під гідравлічним тиском, який викликається скороченням ектоплазматичної оболонки.
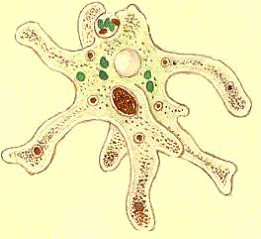
Рис. 5.1. Амеба звичайна
.2 Хвилеподібний рух мембран
Хвилеподібний рух мембран наявний у
клітин організмів, наприклад, фібробластів та клітин епітелію. Такий рух
відбувається з допомогою складок плазмолеми на клітинній поверхні, повернутій
до субстрату. Цей мембранний рух виникає на функціональному злегка вигнутому
передньому краї клітини і в міру її переміщення поступово рухається назад. В
утворенні певних клітинних складок беруть участь цитоплазматичні філаменти,
розміщені в цитоплазмі, яка межує безпосередньо з плазмалемою. Хвилеподібні
рухи мембрани спостерігаються також при утворенні клітинних виростів,
наприклад, аксонів.
.3 Миготливий рух
Для переміщення в просторі такі
тварини, як одноклітинні джгутикові(рис. 5.3) чи інфузорії(рис. 5.2), а також
дрібні багатоклітинні - війчасті черви, личинкові стадії, сперматозоїди
використовують миготливий рух. З допомогою такого руху підганяється вода, що
містить кисень та частинки їжі. Миготливий рух приймає участь у транспорті
речовин в системах порожнин тіла - кишечник, ниркові канальці. Миготливі
органели мають форму довгих джгутиків або коротких війок. Джгутики можуть
виконувати різноманітні гребучі або гвинтові рухи у трьохвимірному просторі,
переміщаючи клітину чи створюючи рівномірну тягу. Численні війки інфузорій
працюють злагоджено та синхронно.
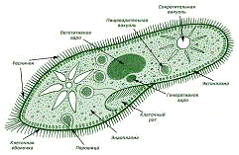
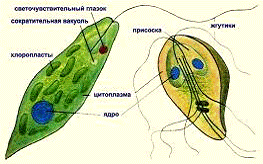
Рис. 5.2. Інфузорія - туфелька Рис.
5.3. Євглена зелена та Лямблія
.4 М'язовий рух
У м’язових клітинах спостерігається
спеціалізований тип скорочення фібрилярних систем. Скоротливі елементи різних
типів м’язів являє собою одноядерні м’язові клітини або багатоядерні м’язові
волокна, що утворюються при ембріональному розвитку в результаті злиття окремих
клітин. У серцевому м’язі мембрани сусідніх клітин поєднані щільними
контактними зонами - «вставними смужками». В цитоплазмі м’язових клітин і
волокон(рис. 5.4) поздовжньо розміщені цитоплазматичні філаменти, що утворюють
міофібрили. Їхня тонка структура утворює гладеньку та посмуговану
мускулатуру(рис. 5.5). У посмугованій філаменти утворюють високоорганізовану
шестигранну решітчасту структуру, яка в поздовжньому напрямку складається із
окремих одиниць - саркомерів. В центрі кожного саркомера знаходиться група
товстих міозинових філаментів, між якими з обох боків втискуються на деякій
відстані тонкі актинові філаменти.
У м’язах внутрішніх органів, що вважаються гладенькими, тонкі і товсті
філаменти розміщені рівномірно по всій поверхні волокна. У багатьох
безхребетних - молюсків, нематод, кільчаків - м’язи косопосмуговані, що
нагадують поперечно посмуговані м’язи хребетних організмів.
Цитоплазма між фібрилами густо пронизана горизонтальними каналами
ендоплазматичної сітки і містить мітохондрії. Для скорочення міофібрил, при
якому актинові філаменти рухаються між міозиновими філаментами, необхідна АТФ.
Молекула міозину складається із двох фрагментів: важкого мероміозину -
«головки» та легкого мероміозину - «хвоста». Поєднуючись між собою хвостовими
фрагментами, міозину утворюють філаменти, із яких виступають головки. У
розслаблених м’язах молекули актину і міозину відокремлені один від одного на
відстані близько 5 нм. У напруженому м’язі міозинові головки міцно зв’язуються
з актиновими філаментами і, діючи неначе крихітні ричаги, повертаються в
мероміозиновому шарнірі близько на 45 градусів, напрягаючи таким чином пружні
структури м’яза.
Включення м’язового скорочення відбувається за рахунок імпульсів, що передаються м’язовим волокнам нервовою системою. Нервові клітини, які інервують ці волокна, називаються мотонейронами. Особливі нервово-м’язові синапси - кінцеві рухові пластинки - утворюють контакт мотонейронів з м’язовим волокном. При цьому збудження аксона приводить в синапсах до звільнення речовини - нейромедіатора. У хребетних ним є ацетилхолін, а у членистоногих - глутамат. Ці речовини викликають на мембрані м’язового волокна утворення різноманітних, у залежності від сили подразнення, потенціалів. На кожному м’язовому волокні у хребетних знаходиться лише одна кінцева рухова пластинка. Але різними закінченнями мотонейрона можуть інервуватися декілька м’язових волокон, що утворюють рухову одиницю.
Скорочення м’язів можуть відбуватися з різною силою за рахунок координованої дії різної кількості рухових одиниць.
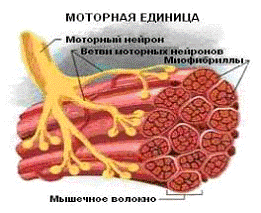
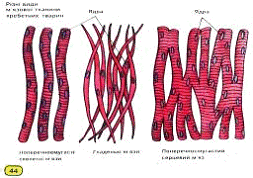
Рис. 5.4. М'язове волокно Рис. 5.5.
Посмуговані та не посмуговані м'язи
6. Амебоїдний рух
Амебоїдний рух є широко поширеною формою клітинного руху. Ним володіють найрізноманітніші клітини - найпростіші з класу саркодових(рис. 6.2), зооспори(рис. 6.3), деякі сперматозоїди (у аскариди) і яйцеклітини, плазмодії міксоміцетів, фібробласти і лейкоцити, епітеліальні і нервові клітини у тканинних культурах, клітини ембріонів хребетних. Добре виражений амебоїдний рух у міобластів, з яких і розвиваються м'язові волокна. При регенерації епітелію клітини стають рухливими і шляхом амебоїдних рухів переміщуються у глиб рани. Одним із способів розповсюдження злоякісних новоутворень всередині організму є амебоїдний рух ракових клітин.
Амебоїдний рух полягає у повільному перетіканні тіла клітини по субстрату і здійснюється завдяки внутрішньоклітинній течії цитоплазми і утворенню тимчасових псевдоподий (псевдоніжок). У найбільш простому випадку утворюється всього лише одна псевдоподія. Поверхневий шар клітини - ектоплазма (кортикальний або гіаліновий шар) - володіє високою в'язкістю і є, мабуть, гелем. При утворенні псевдоподій відбувається перетворення вузького гіалінового шару у легкотекучий золь, а більш рідка центральна частина протоплазми (ендоплазма), існуюча у формі білкового золю, перетікає у напрямку руху в утворювану псевдоподію. Ендоплазма у плазмодії слизовика утворює одночасно кілька потоків, що рухаються у різних напрямках.
У ділянках клітини, де є АТФ і велика кількість кальцію, відбувається скорочення, а там, де багато АТФ, але мало кальцію, спостерігається релаксація; усередині ендоплазми, імовірно, є обмежена кількість кальцію й АТФ. Завдяки такій регіональній активності амебоїдна клітина може спрямовано переміщуватися за умови, що певні її частини прикріплені до субстрату. Без прикріплення клітина лише коливається і змінює форму, а спрямованого руху не відбувається. Форма амебоїдної клітини - результат локальної скорочувальної активності. Рух амебоїдних клітин регулюється клітинною мембраною. У лейкоцитів найбільш чутливий до хемотаксичних факторів провідний край; клітини неухильно рухаються в напрямку до хемотаксичних сигналів.
Швидкість руху залежить від температури і кислотності середовища, від осмотичного тиску, від співвідношення концентрації одновалентних і двовалентних катіонів. Нестача кисню не припиняє амебоїдний рух, але уповільнює його. Під впливом будь-якого сильного подразника (0,1 M KCl, нагрівання до 40 ° C, струшування) амеба скорочується, тіло її округляється, вона втрачає здатність переміщатися по субстрату і змінювати форму тіла, а потім припиняється і рух гранул цитоплазми.
Більшість сучасних теорій амебоїдного руху пояснюють виникнення рушійної сили за рахунок скорочення структур цитоплазми, які здатні до збудливості, у якості яких розглядаються мікротрубочки і мікронитки, виявлені у багатьох видів амеб. Ці структури можуть або вільно перебувати у цитоплазмі, або утворювати агрегати товщиною до 40 нм і більше. Розташовані вони і у плазмолемі, і у ектоплазмі на кордоні з ендоплазмою у вигляді паралельних пучків або у вигляді сітки, що розповсюджується і у ендоплазму. Біохімічними дослідженнями показано, що цитоплазматичні фібрили амеб містять скоротливі білки, подібні міксоміозіну. Саме завдяки їм гліцеринізовані амеби і фібробласти реагують на дію АТФ тривалим скороченням всього тіла.
Автори різних теорій амебоїдного руху не згодні лише щодо місця, де виникають ці рушійні сили. Одні вважають, що амеба пересувається, «видавлюючи» себе у псевдоподію за рахунок тиску, створюваного скороченням кортикального гелю у задньому кінці клітини, яке і змушує текти рідку ендоплазму (рис. 6.1). Ця гіпотеза грунтується на скорочувальних властивостях ектоплазми, що складається з актоміозинового гелю, який, ущільнюючись, скорочується.
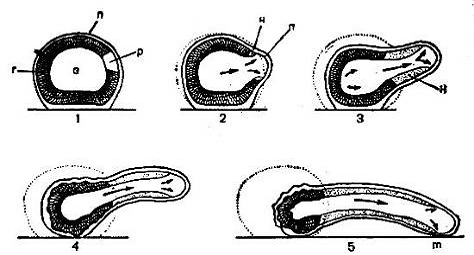
Рис. 6.1. Схема утворення
псевдоподій у амеби
Згідно з уявленнями інших, цитоплазма
підтягується вперед в утворювану псевдоподію завдяки скороченню ендоплазми у
передньому кінці клітини. Деякі дослідники вважають, що сили, необхідні для
руху протоплазми, локалізовані у самих псевдоподіях і виникають завдяки
активному ковзанню гелевих ниток або ендоплазми по поверхні кортикального шару.
Підкреслюється також роль активного розтягування або розслаблення плазмолеми у
амебоїдному русі.
Амебоїдний рух слід розглядати як складний багатоступінчастий процес, що
включає і перетікання цитоплазми (циклоз), і зміну її стану (золь ⇔ гель), а
також плазмолеми і форми тіла, утворення нових псевдоподій, і, нарешті,
прикріплення до субстрату. Тому механізм амебоїдного руху не можна звести лише
до механізму течії цитоплазми, він, безсумнівно, є набагато складнішим. [9]
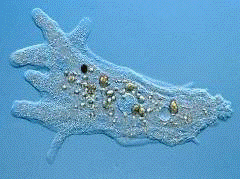
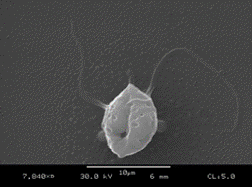
Рис. 6.2 Амеба дизентерійна Рис. 6.3
Зооспора ооміцета
7. Війчастий рух
Війчастий рух обумовлений діяльністю спеціалізованих органел - виростів клітини, які називаються війками (численні і короткі. Вони мають дуже широке поширення і виконують різну функціональну роль. Завдяки їх ритмічному руху вільноживучі клітини (інфузорії(рис. 7.3), рухливі бактерії, водорості) можуть переміщатися у середовищі.
Швидкість руху різних джгутиконосців становить десятки і сотні мікрометрів на секунду. Рух, обумовлене діяльністю війок, характеризується більш високими швидкостями - сотнями і тисячами мікрометрів на секунду.
Рух нижчих червів, личинок голкошкірих, молюсків і кільчастих червів здійснюється також завдяки діяльності війок поверхневого епітелію. Якщо клітина нерухома (миготливий епітелій багатоклітинних, сидячі форми найпростіших), то робота війок викликає рух оточуючої рідини, переміщення харчових частинок, порошинок, яйцеклітин і т.д., так що діяльність миготливого епітелію сприяє виконанню багатьох функцій організму - харчуванню, виділенню, диханню - і здійснює циркуляцію внутрішньорганізмовиих рідин (целомічну у безхребетних, цереброспинальну у хребетних).
Більшість війок діє на зразок весел, здійснюючи гребучі помахи. За ефективним напруженим ударом випрямленої війки слідує повернення розслабленої війки на початкове положення. Частота помахів може досягати 10-30 на 1 с, максимальна лінійна швидкість кінчика війки зазвичай не перевищує декількох десятків сантиметрів на годину. Інтенсивність руху війок (джгутиків) залежить від температури і концентрації водневих іонів.
Джгутики однієї клітини можуть
функціонувати відносно незалежно один від одного, а от діяльність війок
найпростіших і миготливого епітелію проявляє, чітку узгодженість. У інфузорій
можна спостерігати кілька миготливих полів (наприклад, перистомальне і рухове),
в межах яких війки розташовані правильними рядами і працюють вони не одночасно,
а в певній послідовності, з деяким запізненням (метахронально), що й обумовлює
хвилі биття війок, які називаються метахрональними хвилями (рис. 7.1).
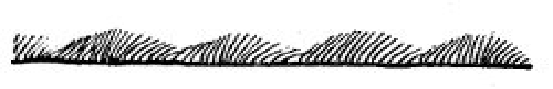
Рис. 7.1 Метахрональні хвилі на
поверхні війчастого епітелію
У інфузорій і джгутиконосців площина биття війок може спонтанно або при певних впливах змінюватися. У клітин миготливого епітелію вищих тварин площина биття війок строго зафіксована. При поступовій наркотизації зникає координація руху війок і вони починають коливатися незалежно один від одного, а потім вже припиняється і їх рухова активність.
Війкам і джгутикам притаманний автоматизм. Вони здатні продовжувати свою ритмічну діяльність, будучи ізольованими від організму (шматочки епітеліальної тканини) або клітини (без'ядерні фрагменти тіла найпростіших). З миготливого епітелію, сперматозоїдів і найпростіших можна приготувати гліцеринові або сапонінові моделі, і якщо до них додати АТФ, то війки і джгутики ритмічно рухаються хвилинами і навіть годинами, але при цьому узгодженості в їхній роботі немає, рухи їх не координовані.
Таким чином, механізм миготливого руху закладений в самих війках і джгутиках. Але в умовах цілої системи - організму або клітини - ця автоматична діяльність регулюється координуючими механізмами, які залишаються ще в значній мірі нез'ясованими. Безсумнівно, що для нормального функціонування війки (джгутика) необхідний зв'язок її з базальним тільцем, розташованим біля основи війки.
Війки і джгутики найпростіших і
багатоклітинних, а також сперміїв тварин мають однакову будову. Усередині їх,
як правило, міститься 9 пар периферичних і одна пара центральних поздовжніх
трубчастих фібрил (9 ×
2 + 2), пов'язаних
поперечними зв'язками в єдину систему - аксонему. В однієї з пар периферичних
фібрил (субфібрила А) є бічні відростки, які називаються ручками (рис. 7.2).
Діаметр цих фібрил дорівнює 25 нм, а товщина стінок - 5 нм.
Електронно-мікроскопічні дослідження показали, що стінки трубчастих фібрил
складаються з 11-13 протофібрил, які в свою чергу складаються з білкових глобул
діаметром 6 нм у війок і 7 нм у джгутиків. Поздовжній або спіральний порядок
проходження протофібрил обумовлює поздовжню або спіральну смугастість фібрил.
Джгутики рухливих бактерій мають більш просту будову і містять кілька
паличковидних або спіральних фібрил, також здатних до ритмічної діяльності.
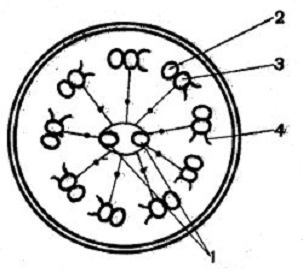
Рис. 7.2. Схема поперечного перегізу
війки (джгутика): 1 - центральні фібрили; 2 - субфібрила В; 3 - субфібрила А; 4
- ручки
Припускають, що рух війок пов'язано
з діяльністю периферичних фібрил, так як саме тут локалізується АТФ-азна
активність.
У складі фібрил війок і джгутиків дійсно є скоротливі білки, що володіють
АТФ-азною активністю і за своїми властивостями подібні з білками м'язових
фібрил - міозином і актином. Так, з джгутиків сперміїв бика був виділений
міозіноподібний білок спермозин, з сперміїв морських зірок - актіноподібний
білок флактин. Скоротливі білки були отримані також з війок і джгутиків
найпростіших. Один з них, найбільш докладно вивчений, динеїн - виявився
локалізованим в ручках периферичних фібрил війок. За своїми властивостями
динеїн подібний з міксоміозином і з білком мітотичного апарату - тубуліном. З
бактеріальних джгутиків отримано білок флагелін, здатний оборотно змінювати
свою конформацію від спіралі до хаотичного клубка.
Більшість сучасних теорій руху війок і джгутиків пов'язує його з локальним
лінійним скороченням фібрил, яке передається по всій довжині джгутика або війки
і супроводжується конформаційними змінами всієї молекули скорочувального білка.
Деякі дослідники за аналогією з механізмом скорочення поперечносмугастого
м'язового волокна пропонують гіпотезу ковзання периферичних фібрил відносно
один одного (субфібрила А за допомогою поперечних ручок ковзає щодо субфібрили
В сусідньої пари). [12]