Курсовая работа (т): Молекулярні механізми міжклітинної взаємодії еритроцитів у кровоносній системі в нормі та за умов гострого еритромієлозу
Молекулярні механізми міжклітинної взаємодії еритроцитів у кровоносній системі в нормі та за умов гострого еритромієлозу
Міністерство освіти і науки України
Дніпропетровський національний університет ім. О. Гончара
Факультет біології, екології та медицини
Кафедра
біофізики та біохімії
Аналітичний огляд
з курсу: «Молекулярні механізми міжклітинної комунікації»
на
тему: «Молекулярні механізми міжклітинної взаємодії еритроцитів у кровоносній
системі в нормі та за умов гострого еритромієлозу»
Виконала:
студентка гр. БХ-14м-6
Кузьменко А. С.
Викладач:
д. б. н., проф.
Ушакова Г. О.
Дніпропетровськ
ЗМІСТ
ВСТУП
. ТИПИ СКЛАДНИХ КОНТАКТІВ
. МІЖКЛІТИННІ КОНТАКТИ ЕРИТРОЦИТІВ:
.1 Міжклітинні взаємодії еритроцитів
.2 Компоненти якірних контактів еритроцитів
.3 Адгезивні білки еритроцитів
.4 Родина глікофоринів
.5 Представники інтегринової родини
.6 Протеїн CD 44
.7 Адгезивні компоненти системи білка Rac-1
.8 Білок смуги 3.1
.9 Анкірні білки еритроцитів
.10 Компоненти спектринового «цитоскелету» еритроцитів
.11 Щілинні контакти еритроцитів
.12 Рецепторно-опосередкована взаємодія (взаємодія типу «ліганд-рецептор»)
. ЗМІНИ ЕРИТРОЦИТАРНИХ КОНТАКТІВ ЗА УМОВ ГОСТРОГО ЕРИТРОМІЄЛОЗУ:
.1 Гемобластози
.2 Гострий еритромієлоз
.3 Патологія міжклітинних контактів при гострому еритромієлозі
ВИСНОВКИ
СПИСОК ВИКОРИСТАНИХ ДЖЕРЕЛ
еритромієлоз еритроцит білок
ВСТУП
Багатоклітинний організм - відкрита високоінтегрована система з комплексом прямих та зворотних зв'язків. Основна роль у підтримці цих зв'язків належить компонентам міжклітинної комунікації (МК). Прикладом може слугувати МК еритроцитів в нормі та при патології [6].
В залежності від виду контактуючих клітин виділяють гомофільні та гетерофільні контакти. Перші полягають у взаємодії однакових за походженням та структурно-функціональними особливостями клітинних рецепторів (наприклад, контактна взаємодія між однотиповими еритроцитами). Гетерофільні контакти утворюються між різними клітинами. Так, прикладом гетерофільного міжклітинного контакту є взаємодія глікофорину А еритроцитів з відповідними адгезивними молекулами ендотелію [1, 2, 6].
Згідно з структурно-функціональною класифікацією умовно виділяють наступні типи контактів: прості (паралельні, зубчасті і пальцеподібні контакти - інтердигітація) та складні (якірні, замикаючі/щільні, комунікативні/шілинні й контакти для передачі сигналів) контакти. Перший тип - це неспеціалізовані контакти-з'єднання плазматичних мембран двох сусідніх клітин на відстані 10-20 нм, за якого взаємодіють шари глікокаліксу обох клітин. Контактуючі поверхні можуть розташовуватися паралельно або утворювати взаємні впинання, коли вирости цитоплазматичної мембрани і цитоплазми однієї клітини занурюються у відповідні заглиблення сусідньої (зубчастий і пальцеподібний контакти) [1, 2].
Складні контакти - побудовані зі специфічних
структур, які забезпечують комплексну взаємодію клітин між собою чи з
міжклітинним матриксом. Характеристика складних контактів надається нижче, у
першому розділі роботи [2].
1. ТИПИ СКЛАДНИХ КОНТАКТІВ
Складні контакти можуть бути щільними замикаюми (ізолюючими), якірними (зчеплювальними) та комунікаційними [6].
Щільний замикаючий контакт характерний для клітин епітеліальної вистилки травного тракту і епітелію залоз. При формуванні щільного контакту зовнішні шари мембран на окремих ділянках максимально зближуються, внаслідок чого стають непроникними для макромолекул та іонів; також спостерігається утворення одного суцільного пласта, який пояском оточує апікальні ділянки клітин [2].
Якірні, або зчеплювальні контакти утворюються за
участю фібрилярних елементів цитоскелету (рис. 1).
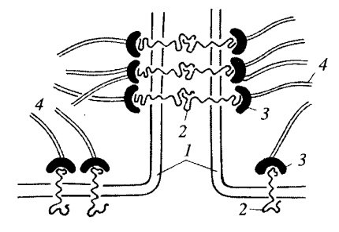
Рис. 1. Адгезивні (якірні) контакти: 1 - плазматичні мембрани контактуючих клітин; 2 - молекули міжклітинної адгезії; 3 - анкірні білки; 4 - актинові філаменти
еритромієлоз еритроцит білок адгезивний
До цих міжклітинних з’єднань належать зчеплювальні стрічки, фокальні контакти та бляшки зчеплення, які пов’язуються з актиновими мікрофіламентами всередині клітини, а також десмосоми та напівдесмосоми, які з’єднуються з іншими елементами цитоскелету - проміжними філаментами [2, 3].
Зміцнення контакту між клітинами досягається
шляхом формування десмосом - утворень цитоплазми двох сусідніх клітин, кожна з
яких формує товсту пластинку прикріплення діаметром до 0,5 мкм. Між пластинками
знаходиться міжклітинна щілина шириною 25-30 нм, заповнена електронно-щільною
речовиною, утвореною молекулами інтегральних глікопротеїнів - десмоглеїнів. З
боку гіалоплазми в зоні десмосоми розташовується електронно-щільний шар білка -
десмоплакіну, в який вплітаються проміжні елементи цитоскелету. Десмосоми є характерними
контактами епітеліальних, ендотеліальних клітин, кардіоміоцитів та інших клітин
(рис. 2).
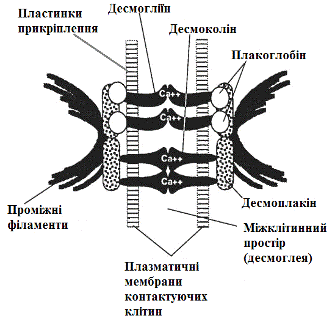
Рис. 2. Будова десмосоми
На відміну від десмосоми, що складається з двох пластинок прикріплення, напівдесмосома має лише одну таку пластинку і утворюється в місцях контакту епітеліальних клітин із базальною мембраною. На відміну від щільного контакту, всі типи зчеплювальних контактів є проникними для водних розчинів і не відіграють ніякої ролі в обмеженні дифузії [2].
Комунікаційні, чи щілинні, міжклітинні контакти є функціональними зв’язками клітинами. Через щілинні з’єднання клітини здійснюється прямий обмін хімічними речовинами між клітинами. До них належать нексуси та різні групи синапсів. Нексус - це спеціалізований клітинний контакт, який відзначається безпосереднім хімічним зв’язком між цитоплазмами клітин, коли плазмалеми сусідніх клітин зближені до відстані 2-3 нм і пронизані особливими часточками - конексонами, кожна з яких складається з 6 субодиниць із циліндричним каналом по центру [2, 3, 6].
У складі різних щілинних контактів нараховується
від кількох одиниць до декількох тисяч конексонів. Через конексони утворюються
наскрізні канали, які сполучають між собою внутрішні середовища контактуючих
клітин. Нексуси містяться переважно в серцевій м’язовій тканині й забезпечують
тісний метаболічний зв’язок між цитоплазмами контактуючих кардіоміоцитів (рис.
3).
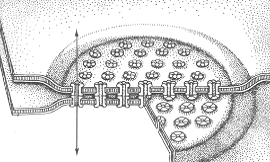
Рис. 3. Загальний вигляд конексонів серця
Синапси - це спеціалізовані контакти між нейронами або між нейронами та м’язами, які служать для передачі збудження або гальмування в один бік від однієї клітини до іншої (рис. 4).
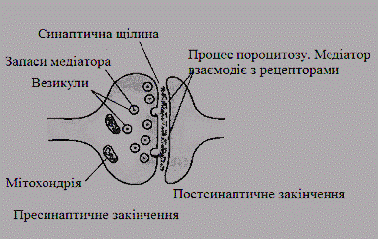
Рис. 4. Загальна схема будови синапсу
Синапси утворюються на термінальних ділянках
відростків нейронів - дендритів та аксонів. Один нейрон за посередництвом
синапсів може з’єднуватися з 10 000 нейронів. Міжнейронні синапси
підрозділяються на електричні та хімічні (рис. 5).
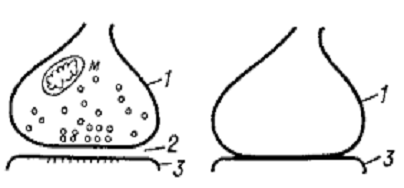
А Б
Рис. 5. Будова хімічного (А) та електричного
синапсів (Б): 1 - пресинаптичне закінчення; 2 - синаптична щілина; 3 -
постсинаптична мембрана; М - мітохондрія
Мембрани клітин, що утворюють синапс, розділені міжклітинним простором - синаптичною щілиною шириною 20-30 нм, через яку передається інформація у вигляді медіаторів. Таким чином, різні типи міжклітинних контактів пристосовані до особливих функцій певних клітин [2, 3].
Трансмембранні взаємодії типу «ліганд-рецептор» - окремий різновид міжклітинних взаємодій, коли хімічний є первинним посередником <#"791494.files/image007.gif">
Рис. 6. Структура адгезивного
контакту еритроцитів
2.3 Адгезивні білки еритроцитів
Ступінь адгезивної здатності еритроцитів, на відміну від інших форменних елементів крові, є найнижчим. Однак це зовсім не означає, що еритроцити взагалі не можуть утворювати якірних контактів з різними компонентами кровоносної системи [12].
До адгезивних білків еритроцитів відносять: глікофорини А, В, С і D, представники інтегринової родини (α2, α4, β1, β2, β4 та β7), гіалуронатзв'язуючий протеїн СD44, адгезивні компонети системи білка Rac-1, білок смуги 3.1 тощо [8, 11, 12].
Адгезивні білки приймають участь в
утворенні як гомофільних контактів типу «еритроцит-еритроцит» (рис. 7)
(глікофорин В), так і гетерофільних - «еритроцит-ендотеліоцит», «еритроцит-тромбоцит»,
«еритроцит-лейкоцит» (глікофорини А і D, васкулярний адгезивний білок першого
типу або VASP-1, протеїн 3.1) тощо [3]. Велика кількість глікопротеїнів
контактує з позаклітинним матриксом (фібрином, фібронектином, еластичними та
колагеновими волокнами та ін) [11].
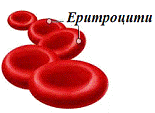
Рис. 7. Гомофільна взаємодія
дискоцитів, яка в більшості випадків є глікофорин-В-опосередкованою
2.4 Родина глікофоринів
Назву „глікофорини" для позначення основних сіалоглікопротеїнів еритроцитарних мембран людини дав видатний науковець Марчезі у 1972 р.
Глікофорини є гетерогенною групою
сіалоглікопротеїнів еритроцитарної мембрани, які відіграють важливу роль у
формуванні структури глікокаліксу на поверхні еритроциту (рис. 8). Вони містять
основну частину вуглеводів плазматичної мембрани еритроцитів і, таким чином,
вносять найбільший вклад у формування якірних контактів, гідрофільних
властивостей і негативного заряду поверхні клітини [11].
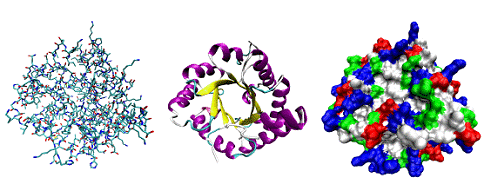
А Б В
Рис. 8. Структура глікофорину А (А), глікофорину В (Б) та глікофорину С (В)
Великий вуглеводний компонент, експонований на зовнішньому боці клітинної мембрани, робить глікофорини головними імунологічними детермінантами поверхні еритроцитів. У глікофоринах містяться детермінанти груп крові MN, Ss, Ge, рецептори, які взаємодіють з поверхнею бактерій, вірусів (вірус грипу, реовірус), паразитів (малярійний плазмодій). Звідси випливає, що глікофорини здатні приймати участь не лише у міжклітинних контактах взаємодіях, а також можуть неспецифічно взаємодіяти з різними агентами екзогенного чи ендогенного походження [8].
Для глікофоринів мишей та людини показана
здатність формувати гомофільні та гетерофільні контакти еритроцитів. Так,
глікофорин-В (рис. 9), що є специфічним для клітин еритроїдного ряду, здатен
утворювати гомофільний контакт типу «еритроцит-еритроцит», причому найбільш
ефективно такий контакт формується між еритроцитами нормальної двоякоувігнутої
форми (дискоцитами) [8, 11].
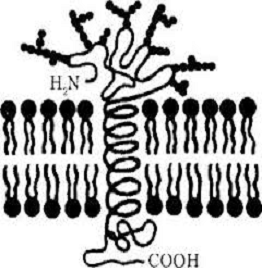
Рис. 9. Структура глікофорину В - основного
компоненту гомофільної адгезії еритроцитів
Для сфероцитів, еліптоцитів, мікроцитів, дрепаноцитів, кодоцитів характерна слабка глікофорин-В-опосередкована гомофільна адгезія. Ехіноцити (еритроцитів, які мають різноманітні непостійні вирости чи пухирці), навпаки, формують дуже міцний гомофільний зв'язок як з клітинами подібної форми, так і з дискоцитами [6].
Глікофорини А та D відіграють важливу роль у
забезпеченні гетерофільної адгезії еритроцитів з ендотелієм судин,
тромбоцитами, лейкоцитами. Так, при проходженні еритроцитом кровоносного русла
олігосахаридні ланцюжки позаклітинного домену глікофорину А постійно
взаємодіють з молекулами васкулярного адгезивного білка першого типу (VASP-1),
утворюючи непостійні зв'язки (рис. 10). VASP-1 експресується на ендотеліоцитах
та деяких типах лейкоцитів [3].
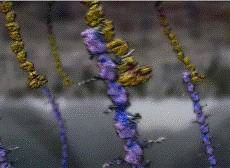
Рис. 10. Гетерофільна взаємодія глікофорину А
(позначений синім кольором) з VASP-1 (позначений жовтим кольором)
2.5 Представники інтегринової родини
Інтегрини - трансмембранні гетеродимерні клітинні рецептори, які взаємодіють з позаклітинним матриксом. Структурно інтегринові рецептори є облігатними гетеродимерами: кожен складається з однієї альфа- і однієї бета-субодиниці, побудованими з позаклітинного, трансмембранного і цитоплазматичного доменів. У ссавців відомо 19 альфа- і 8 бета-субодиниць. Інтегрини впливають на форму еритроцитів, їх рухливість. Вони беруть участь у регулюванні тривалості клітинного циклу еритроїдних клітин [15].
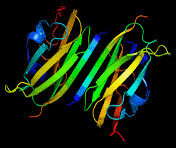
У еритроцитах відкриті такі ізоформі інтегринів
як α2,
α4,
β1,
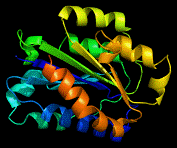
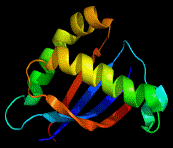
β2, β4, β7 (рис. 11). Ці інтегрини утворюють
контакти з екстрацелюлярним матриксом - фібриновими волокнами при зсіданні
крові, колагеновими волокнами - при пошкодженні судин, фібрином - при міграції
еритроцитів кровоносним руслом та ін. [12, 15].
А Б В
Рис. 11. Тривимірні моделі інтегринів α2
(А),
α4
(Б)
та β7
(В)
В позаклітинних взаємодіях, окрім інтегринів, важливе місце посідають білки тензин, тензин-асоційована адгезивна кіназа Src, талін, вінкулін та α-актинін. Останній передає сигнал на спектрин-актинові філаменти еритроцитів [6, 8].
При активації інтегрини змінюють свою
конформацію, при цьому сигнал передається через цитоплазматичний домен на білки
злипання - тензін, талін і вінкулін. Тензін фосфорилюється під дією кінази Src,
активується і передає сигнал на наступні компоненти каскаду. Сигнал від
вінкуліна далі передається на α-актинін,
потім - на актинові філаменти. Кінцевий результат процесу - реалізація
клітинної відповіді на ключові стимули, що походять з екстрацелюлярного
матриксу [4, 14].
2.6 Протеїн CD 44
CD 44 - інтегральний мембранний глікопротеїн,
який відіграє важливу роль в клітинній адгезії та міграції (рис. 12). Є
рецептором для гіалуронової кислоти, остеопонтину, колагену і матриксних
металопротеїназ. Сіалофукозильована форма CD44 виявлена на еритроцитах і
гематопоетичних клітинах. Сильний ліганд для E- і L-селектину [8].
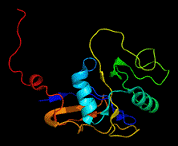
Рис. 12. Тривимірна модель гіалуронатзв'язуючого
протеїну CD44
Протеїн CD44 відіграє
важливу
роль
у
адгезивних
взаємодіях
лейкоцитів
та
молодих
еритроїдних
клітин.
У
випадку останніх має виражений вплив на їх проліферативну активність. Для
зрілих еритроцитів він посідає другорядну роль [6, 8].
2.7 Адгезивні компоненти системи білка Rac-1
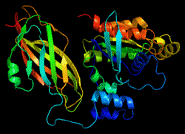
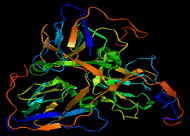
є цитозольним білком-ферментом, що належить до
ролини малих ГТФаз (рис. 13). Приймає участь у трансдукції клітинного сигналу,
шляхом взаємодії зі специфічними рецепторами, які приймають участь в адгезивних
взаємодіях (див. рис. 13).
А Б