Курсовая работа (т): Молекулярні механізми міжклітинної взаємодії еритроцитів у кровоносній системі в нормі та за умов гострого еритромієлозу
Рис. 13. Тривимірні моделі білка Rac-1 та його специфічних адгезивних рецепторів
Адгезивні компоненти системи білка Rac-1 сприймають сигнал з позаклітинного матриксу та передають його на білок Rac-1, а також відповідають за структурно-функціональну стабільність гетерофільних контактів еритроїдних клітин [8].
Активований рецепторними взаємодіями, протеїн
Rac-1 взаємодіє з G-білками, запускаючи каскад «ввімкнення» аденілатциклази,
протеїнкіназ та компонентів цитоскелету. Ці процеси лежать в основі ефективної
реалізації клітинних процесів еритроцитів [6].
2.8 Білок смуги 3. 1
Білок смуги 3.1 - важливий адгезивний, цитоскелетний і транспортний протеїн еритроїдних клітин. Є учасником процесів регуляції роботи цитоскелету еритроцитів. Делеція гену білка смуги 3.1 робить мембрану еритроциту ригідною і захищає останні від проникнення малярійних плазмодіїв у клітину [8, 11].
Протеїн смуги 3.1 - це транспортний трансмембранний білок. Його поліпептидний ланцюг пронизує бішар кілька разів. Його молекулярна маса близько 100 кДа і містить невеликий вуглеводний залишок, який виступає на зовнішній поверхні клітини, приймаючи участь у здійсненні як гомофільної так і гетерофільної адгезії еритроцитів [6].
Білок забезпечує також ефективне перенесення кисню еритроцитами з легенів до тканин і вуглекислого газу з тканин до легень, регулюючи потік іонів через мембрану клітин (виконує транспортну функцію і є одночасно іонним каналом) [6, 10].
При пошкодженні судин з метою запобігання
крововиливу у навколишні тканини, активується система молекулярних процесів
зсідання крові. Дослідження показали, що важливу роль тут відіграє адгезивна
взаємодія протеїну смуги 3.1 і глікофорину С еритроцитів з манозовмісними
моносахаридними одиницями фібрину. Тобто, експериментальні дані свідчать про
участь білка смуги 3.1 у системі коагуляційного гемостазу [8].
2.9 Анкірні білки еритроцитів
До анкірних білків еритроїдних клітин відносять: еритроцитарний анкірин (анкірин-R), аддуцин, білки смуг 4.1, 4.2. 4.5 і 4.9, дематин, тропомодулін і тропоміозин. Анкірин-R має спеціальний серин-збагачений адаптерний домен і зустрічаються не лише у цитоплазмі еритроцитів, а також експресується в скелетних м'язах, епітелії та неровій системі [4].
Анкірні білки еритроцитів кодуються спеціальними групами генів, що можуть активуватися/інактивуватися у відповідь на дію різноманітних білкових факторів росту та інтерлейкінів. Так, гени анкірину, що кодують синтез відповідного білка, активуються під дією фактору росту нейронів (ФРН), інсуліноподібних факторів росту-1 та 2 (ІФР-1 і ІФР-2), протизапальних цитокінів (ІL-4, IL-10) тощо. Ці гени задіяні у процесах диференціювання стовбурових клітин еритроїдного ряду [4, 6, 8].
Головна функція анкірних білків - трансдукція
сигналу від цитоплазматичного домену адгезивного білка на спектрин-актинові
компоненти «цитоскелету» (рис. 14) [8].
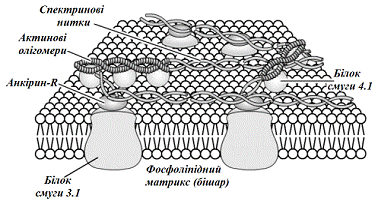
Рис. 14. Фрагмент еритроцитарної мембрани з адгезивними, анкірними і цитоскелетними компонентами якірних контактів
.10 Компоненти спектринового «цитоскелету»
еритроцитів
Основними компонентами спектринового «цитоскелету» є спектринові нитки (побудовані з білка спектрину) та актинові олігомери (див. рис. 14).
Спектрин - це білок «цитоскелету», який вистилає внутрішню сторону плазматичної мембрани еритроцитів й багатьох інших типів клітин. Еритроцити ссавців є стандартним об'єктом для дослідження спектринового «цитоскелету» [4].
Спектриновий «цитоскелет» складається з великої кількості мономерів димерного спектрину. Останній спектрин формується бічними зв'язками αl і βl-мономерів, потім димери сполучаються попарно, утворюючи тетрамер. З'єднання «кінець в кінець» цих тетрамерів за участю коротких актинових філаментів утворює гексагональну чи петагональну сітку [6].
Приєднання спектринового «цитоскелету» до внутрішньої сторони клітинної мембрани здійснюється опосередковано, через взаємодію з трансмембранними білками і анкірином [8].
Актинові філаменти - утворені комплексами
мономерів глобулярного актину (G-актину), поєднаними нековалентно у короткі
олігомерні ланцюжки (див. рис. 14). Ці філаменти разом зі спектриновими нитками
представляють єдиний спектрин-актиновий «цитоскелет». Останній визначає
структурно-функціональні властивості еритроцитів [8, 10].
2.11 Щілинні контакти еритроцитів
Пряма міжклітинна комунікація через щілинні контакти відіграє важливу роль в контролі та координації функціональної активності еритроцитів. На поверхні еритроцитів щілинні контакти були відкриті та описані зовсім недавно. Раніше вважали, що ці контакти не можуть утворюватися на поверхні еритроїдних клітин, оскільки останні не мають константних мембранних точок дотику з судинним руслом. Тому ще й зараз панує думка, що для утворення щілинних контактів необхідна одночасна наявність поєднаних мембран двох контактуючих клітин [9].
В еритроцитах та інших форменних елементах крові щілинні контакти (рис. 15) складаються з одного чи кількох коннексинних протеїнів СХ37, Сх40, СХ43 та СХ45. Вони необхідні для забезпечення процесів переміщення поживних речовин з плазми крові чи ендотелію судин до еритроцитів [9].
Рис. 15. Загальний вигляд щілинних контактів
еритроцитів
Конексини - це білки із молекулярною масою <#"791494.files/image030.gif">
Рис. 16. Структура еритропоетинового
рецептору
Ростові фактори
(фактор росту клітин крові),
інтерлейкіни,
фактор некрозу пухлин
(ФНП-α і β),
фактор трансформації росту-β
(ФТР-β)
та інші сполуки взаємодіють з відповідними рецепторами еритроїдних клітин.
Це
модулює процеси активації внутрішньоклітинних посередників та реалізацію
клітинної відповіді (рис. 17) [8].
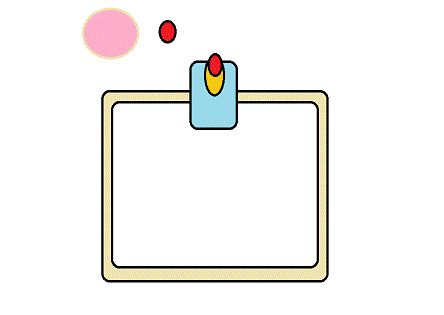
Рис. 17. Рецепторно-опосередкована взаємодія
еритропоетину і відповідного рецептору на поверхні еритробласту (попередника
еритроциту)
В наш
час
проводяться
нові
дослідження,
пов'язані
з
вивченням
ліганд-опосередкованих
взаємодійеритроїдних
клітин
з
гормонами
та
цитокінами,
які
впливають
на
їх
проліферацію
й
диференціацію.
3. ЗМІНИ ЕРИТРОЦИТАРНИХ КОНТАКТІВ ЗА УМОВ ГОСТРОГО
ЕРИТРОМІЄЛОЗУ
3.1 Гемобластози
Гемобластози - пухлинні (неопластичні) захворювання кровотворної та лімфатичної тканини. Гемобластози поділяють на системні захворювання - лейкози, а також регіонарні - лімфоми [5].
Відмінності між лейкозами та лімфомами полягають не лише в наявності чи відсутності системності ураження. У заключній стадії лімфоми дають генералізовані метастази, в тому числі й у кістковий мозок. Однак при лейкозах кістковий мозок вражається первинно, а при лімфомах - вторинно, у результаті метастазування. При лейкозах пухлинні клітини, як правило, ідентифікуються у крові, тому в літературі використовується термін для позначення лейкозів, запропонований ще Рудольфом Вірховим - «лейкемія» [1, 5].
До лейкозів відносять таке захворювання як
еритромієлоз, за якого відбувається трансформація мієлоїдних стовбурових
клітин-попередників еритроїдного ряду. В залежності від ступеня вираженості
клінічних проявів й тяжкості процесу розрізняють гострий (швидкий та
генералізований прояв хвороби) і хронічний (повільний ремітуючий перебіг)
еритромієлози. Нижче піде мова про зміни міжклітинних комунікацій клітин
еритроїдного ряду при гострому еритромієлозі [7].
3.2 Гострий еритромієлоз
Розвиток еритромієлозу починається з
малігнізації однієї стовбурової або напівстовбурової еритроїдної клітини, що
дає початок пухлинним клітинним клонам (рис. 18). Еритромієлоз має
моноклональне походження, яке підтверджується експериментальними та клінічними
даними по виявленню у всіх пухлинних клітинах одного і того ж хворого
хромосомної абберації [5, 10].
Рис. 18. Гістологічний зріз тканини кісткового
мозку, ураженої еритромієлозом
Гострий еритромієлоз
(хвороба
Ди
Гульєльмо)
- це
одна
з
форм
еритромієлозу,
що
характеризується
наявністю
в
крові
великої
кількості
ядерних
клітин-попередників
еритроцитів
- еритро-
і
нормобластів,
а
також
клітин
зі
специфічними
«виростами»,
схожих
на
ехіноцити
(рис.
19).
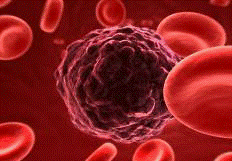
Рис. 19. Загальний вигляд малігнізованої клітини
з «виростами» при гострому еритромієлозі
Гострий еритромієлоз зустрічається у дорослих та дітей після проходження курсу хіміотерапії чи опромінення у зв'язку з лікуванням мієломної хвороби, лімфогранулематозу, еритремії. Частіше всього цей варіант еритромієлозу є індукованою хворобою, а не захворюванням спонтанного виникнення [13].
У більшості випадків гострий еритромієлоз маніфестує повільно наростаючою анемією, що супроводжується легкою іктеричністю шкірних покривів та склер [10].
Іноді картина периферичної крові носить алейкемічний характер, проте у міру прогресування захворювання відбувається лейкемізація, й у кров потрапляють еритрокаріоцити та/або бласти. Лейко- та тромбоцитопенія нерідко мають місце з початку захворювання, але іноді з'являються й пізніше. Рівень білірубіну, як правило, трохи підвищений за рахунок його непрямої фракції [13].
На відміну від інших форм гострого лейкозу, виявлення яких базується на ідентифікації у пунктаті кісткового мозку атипових бластів, постановка діагнозу гострого еритромієлозу не вимагає серйозних перепон. Проте сам пунктат при гострому еритромієлозі нерідко стає загадкою [1].
Морфологія еритроцитів при хворобі Ди Гульєльмо
буває різною. Як правило, недивлячись на анемію, пойкілоцитоз й анізоцитоз
можуть бути відсутніми. Анізоцитоз є не дуже різким у порівнянні із
В12-дефіцитною анемією. Немає характерної для останньої полісегментації
нейтрофілів. Тим не менш, гігантизм й патологічні зміни елементів
гранулоцитарного ряду є можливими. Нерідко визначається гіперхромія еритроцитів
та збільшення до 1,2-1,3 кольорового показника [5, 7].
3.3 Патологія міжклітинних контактів при
гострому еритромієлозі
Насамперед,
у
малігнізованих
клітин
при
гострому
еритромієлозі
клітин
знижується
експресія
таких
адгезивних
білків
як
глікофорини
В
і
С,
проте
зростає
рівень
глікофоринів
А
та
D. При
цьому
утворюються
непостійні
утворення
- пухирці
(рис.
20), бляшки,
фібрили,
що
суттєво
зміною
адгезивну
здатність
трансформованих
клітин
[7].
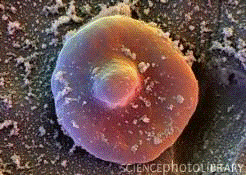
Рис. 20. Специфічні глікофоринові пухирці на
поверхні малігнізованої еритроїдної клітини
Внаслідок підвищеної експресії глікофорину А зростає локальна адгезивна здатність пухлинних клітин, тобто підсилюється їх контакт з іншими елементами кровоносної системи. Однак послаблюється утворення гомофільних еритроцитарних контактів, внаслідок чого трансформована клітина «не впізнає» собі подібних. Експресія глікофорину В знижена у 10 разів у порівнянні з нормальними дискоцитами [5].
Під адгезивною здатністю малігнізованих еритроїдних клітин розуміють локальне нерівномірне зростання щільності адгезивних контактів на поверхні цих клітин та їх здатність до інвазії у межах кровоносної системи. Такі клітини гіперпродукують «пухлинні» зчеплюючі «стрічки», за допомогою яких взаємодіють з нормальними еритроцитами, лейкоцитами та ендотеліоцитами [10].
Трансформовані еритромієлоїдні клітини
характеризуються зниженням експресії еритроцитарного анкірину та зростанням
кількості аддуцину, тропомодуліну та протеїнів смуги 4.2 і 4.9. Це порушує
типову гексогональну структуру спектринової сітки, в результаті чого вона
утворює у деяких місцях цитоплазми непостійні ламелярні «вирости» (рис. 21).
Останні відповідають за переміщення еритромієлоїдних клітин кровоносним руслом
[13].
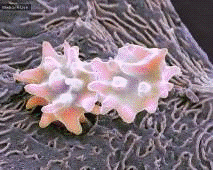
Рис. 21. Утворення спектринових «виростів»
малігнізованою клітиною
Спектринова дефектна
сітка
набуває
так
званої
дисгексагональної
(рис.
22) чи
диспентагональної
конфігурації,
при
якій
виникають
поперечні
примембранні
філаментні
тяжі
замість
типових
поздовжніх.
При
цьому поверхня еритроцитарної мембрани викривлюється, формуючи вищезгадані
«вирости». Число таких виростів на одну малігнізовану клітину може досягати від
декількох десятків до декількох сотень чи навіть тисяч. Проте ці утворення
непостійні: швидко руйнуються та виникають знову [5].
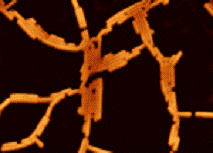
Рис. 22. Дисгексагональна ламелярна спектринова
сітка
В результаті формування спектринових «виростів» порушується також просторова структура гемоглобіну, локалізованого у цитоплазмі еритроцитів. В результаті він набуває відкритої аглобулярної конформації і втрачає здатність зв'язувати кисень та вуглекислий газ. Під дією лізосомальних протеїназ дефектний гемоглобін розщеплюється на окремі олігопептидні фрагменти, які, врешті-решт, катаболізуються до вільних амінокислот. Надмірна кількість останніх активує специфічні білки-репресори, котрі з'єднуються з тандемними повторами гемоглобінових генів та блокують їх експресію. Інгібується і синтез ферментів порфіринового обміну [10].
Окрім якірних контактів спостерігається дисбаланс у функціонуванні конексинів. Пухлинні мієлоїдні клітини мають «дефектні» конексинні канали, що, у свою чергу, унеможливлює транспорт поживних речовин до клітин. Показано, що у культурі малігнізованих еритроїдних клітин знижується експресія конексинів Сх 37, 40, 43 і 45. При інтраперитонеальному/внутрішньовенному введенні лабораторним щурам препаратів цих клітин у тварин розвивався гострий еритромієлоз та мієломна хвороба, при цьому екзогенні трансформовані клітини впливали на утворення щілинних та/чи адгезивних контактів у нормальних клітин [9, 13].
Паралельно з пригніченням синтезу конексонів
формуються специфічні для малігнізованих еритромієлоїдних клітин порові
комплекси, які все ж забезпечують притік глюкози та інших низькомолекулярних
метаболітів у цитоплазму. До складу порових комплексів входять такі компоненти:
коровий білок, який контролює відкриття та закриття пори; білкові «люмени», які
формують пору; білкові фібрили («ніжки»), що з'єднують «люмени» з коровим
білком (рис. 23).
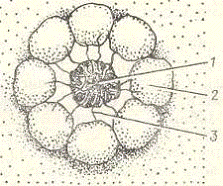
Рис. 23. Структура порового комплексу
малігнізованої еритроїдної клітини: 1 - коровий білок; 2 - білкові люмени; 3 -
білкові «ніжки»
Змінюються також і рецепторно-опосередковані взаємодії. Малігнізовані клітини починають продукувати власні фактори росту, які впливають на ріст інших трансформерів, а також впливають на структуру прилеглих кровоносних судин. Остання умова необхідна для забезпечення притоку поживних речовин до пухлини. Натомість трансформери частково (іноді - повністю) втрачають типові для нормальних еритроїдних клітин еритропоетинові, остеопонтинові та інші рецептори. При цьому їх проліферація може у деяких випадках навіть не залежати від продукованих організмом гормонів [6, 10].