Реферат: Молочнокислые стрептококки
и 1980 гг. были связаны с развитием
и назреванием этапов генетики лактобактерий. Применение генетических
инструментальных средств разъяснило много интересных аспектов об этих
организмах.
5. Размножение
Бактерии молочнокислые размножаются путем деления клеток, иногда перешнуровывания. Описан процесс размножения некоторых бактерий молочнокислых с помощью гонидий, при котором на концах палочек образуются зернышки (гонидии), увеличивающиеся в размерах, вытягивающиеся и превращающиеся в палочки, а также образование у бактерий молочнокислых фильтрующихся форм. Японскими исследователями доказано наличие у бактерий молочнокислых процесса спорообразования.
. Рост и развитие
На рост и развитие бактерий молочнокислых влияют различные факторы.
Углеродное питание. Наиболее важными источниками энергии для бактерий молочнокислых являются моно и дисахариды (глюкоза, лактоза, сахароза, мальтоза), а также органических кислоты (лимонная, яблочная, пировиноградная, фумаровая, уксусная и муравьиная) в концентрации 30 - 50 мкг/мл. Из жирных кислот рост бактерий молочнокислых стимулируют олеиновая, линолевая, а также линоленовая. При отсутствии сбраживаемых углеродсодержащих субстратов бактерий молочнокислых могут использовать аминокислоты в качестве источника энергии. Некоторые штаммы сбраживают полисахариды.
Азотное питание. Значительное число бактерий молочнокислых не способно синтезировать органических формы азота и поэтому нуждаются для своего роста в присутствии их в среде; только некоторые из бактерий молочнокислых используют минеральные соединения азота для синтеза ряда органических соединений. Для удовлетворительного роста бактерий молочнокислых необходим ряд аминокислот: аргинин, цистеин, глутаминовая кислота, лейцин, фенилаланин, триптофан, тирозин, валин.
Неорганические соединения. Для роста и развития бактерии молочнокислые нуждаются в соединениях меди, железа, натрия, калия, фосфора, йода, серы, магния и особенно марганца.
Спирты. Бактерии молочнокислые устойчивы к действию повышенных концентраций
спирта. Приспособленность к развитию при высоких концентрациях спирта является
характерным свойством, широко присущим как гетероферментативным, так и
гомоферментативным бактериям. Штаммы бактерий молочнокислых, обладающие высокой
энергией кислотообразования, характеризуются и максимальной устойчивостью к
спирту. Наиболее быстро в средах с высоким содержанием спирта размножаются
молодые культуры. С возрастом скорость размножения их в этих средах закономерно
снижается. Чем больше спирта содержит среда, тем медленнее протекает
размножение. Угнетающее действие высоких концентраций спирта на бактерии
молочнокислые более остро сказывается при высоких температурax. На
неполноценных питательных средах, на которых развитие бактерий молочнокислых
происходит заторможено, устойчивость к спирту значительно снижается. Длительное
культивирование бактерий с дрожжами повышает их устойчивость к спирту.
Продолжительность жизни бактерий молочнокислых без пересевов в спиртосодержащих
средах (напр., в винах) в 2-4 раза больше, чем в тех же средах без спирта. Это
объясняется тем, что в спиртосодержащих средах бактерии медленнее размножаются
и накапливают продукты брожения. В осветленных винах в лабораторных условиях
при комнатной температуре бактерии молочнокислые выживали более 7 месяцев. В
основном спирт подавляет функцию размножения клеток; функция роста подавляется
слабее. Спирт у многих видов, особенно при развитии на средах, слабо
обеспечивающих их питание, вызывает увеличение размеров клеток в длину; иногда
при этом они принимают вид длинных изогнутых нитей.
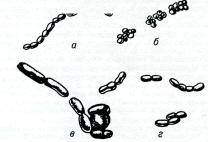
Форма клеток молочнокислых бактерий: а - кокки - Leuconostoc oenos (х 6000); б - Pediococcus cerevisiae (х 5000); в-палочки - Lactobacillus casei (x 8500); г - Lactobacillus brevis (x 5500)
Величина рН. Бактерии молочнокислые характеризуются порогом рН использования яблочной кислоты и сахаров. Оптимальный предел рН роста для бактерий, выделенных из вин - 4,3-4,8, нижний предел значения рН использования сахаров и яблочной кислоты - 2,9-3,0. В исключительных случаях рН составляет 2,85 и 2,78. Оптимальное значение рН яблочно-молочного брожения 4,2-4,5. При рН выше 4,5 яблочно-молочное брожение замедляется.
Температура. Большинство молочнокислых бактерий растет в относительно узкой зоне температур, которая оказывает влияние на скорость роста, превращений, а также на их потребность в питании. бактерии молочнокислые, выделенные из вин, относятся к мезофильным; они не размножаются при 45°С, и оптимальная температура их роста близка к 25°С-30°С. Температурa ниже 15°С резко тормозит скорость яблочно-молочного брожения. Незначительные дозы растворенного в вине кислорода стимулируют развитие молочнокислых бактерий. Они относятся к группе микроаэрофильных микроорганизмов.
Сернистый ангидрид является ингибитором молочнокислых бактерий. Его токсичность зависит от титруемой кислотности среды. Она значительно усиливается при пониженном значении рН. Связанные формы SO2 ингибируют бактерии молочнокислые, однако этот эффект значительно выше, когда SO2 в свободном состоянии. Больше влияет на размножение бактерий, чем на яблочно-молочное брожение. При концентрации связанного SO2 90 - 120 мг/дм3 яблочно-молочное брожение в винах с рН 3,2-3,3 практически невозможно.
. Молочнокислые
стрептококки
К молочнокислым стрептококкам относят мезофильные стрептококки Streptococcus lactis, Str. cremoris и ароматобразующие Str. diacetilactis, Str. acetoinicus, Str. paracitrovorus (Leuconostoc citrovorum), Str. citrovorus (Leuconostoc citrovorum); термофильные Str. thermophilus; энтерококки (молочнокислые стрептококки кишечного происхождения) Str. liquefaciens, Str. faecalis, Str. zymogenes, Str. faecium, Str. durans, Str. bovis.
Это грамположительные кокки (рис. 27), образующие короткие или длинные цепочки. Неподвижны, спор и капсул не образуют. Они относятся к факультативно-анаэробным микроорганизмам (микроаэрофилам). Большинство из них не обладают протеолитической активностью, не образуют каталазу. Вызывают расщепление углеводов гомо- или гетероферментативным путем (такое деление связано с количеством получаемых при молочнокислом брожении побочных продуктов - летучих кислот, эфиров, спирта, диацетила и пр.).
Мезофильные стрептококки. Мезофильные молочнокислые стрептококки кефирного грибка - не
однородная группа. Она состоит из активных кислотообразователей (Streptococcus
lactis, Streptococcus. cremoris) и ароматообразующпх стрептококков (Leuconostoc
citrovorum и Leuconostoc dextranicum).
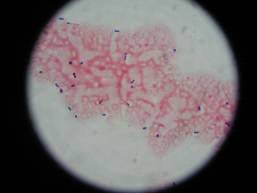
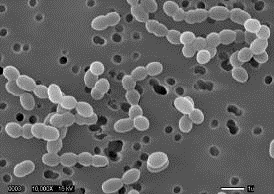
В настоящее время Streptococcus lactis и Streptococcus cremoris рассматриваются как постоянная и наиболее активная часть микрофлоры кефирного грибка, обеспечивающая быстрое нарастание кислотности закваски в первые часы сквашивания.
Ароматообразующие стрептококки участвуют в формировании специфического вкуса и аромата кефира, а при излишнем развитии могут вызывать газообразование.. lactis (молочнокислый стрептококк). Клетки Str. lactis имеют круглую форму, располагаются в виде овальных, попарно соединенных клеток (диплококков) или коротких цепочек. При росте на поверхности твердых питательных сред образует мелкие, росинчатые колонии; глубинные колонии лодочкообразные или в форме чечевицы. Хорошо растут в присутствии глюкозы или лактозы. На гидролизованном агаре с мелом вокруг колоний образуют зоны просветления (в результате выделения молочной кислоты происходит растворение мела). Благоприятной средой для развития стрептококков является гидролизованное молоко. По росту на кровяном агаре относится к гамма-типу. Оптимальная температура роста 30°С. При этой температуре они свертывают молоко за 10-12 ч. Сгусток ровный, плотный, колющейся консистенции, имеет чистый кисломолочный вкус и аромат. Некоторые расы (разновидности) образуют сгусток тягучей консистенции и поэтому непригодны для выработки большинства кисломолочных продуктов. Str. lactis никогда не сбраживают рамнозу, сахарозу, раффинозу. Часто разлагают казеин. Предельная кислотность, создаваемая в молоке при культивдровании Str. lactis, колеблется в пределах НО - 120° Т (иногда 130° Т), однако встречаются и малоактивные штаммы, предельная кислотность которых достигает в молоке 90-100°Т. Некоторые разновидности Str. lactis продуцируют весьма активный антибиотик низин. Отдельные штаммы молочнокислых стрептококков могут вызывать пороки молочных продуктов: тягучесть, горечь (вследствие пептонизации молока) и др.. cremoris (сливочный стрептококк). Он отличается от Str. lactis тем, что его клетки чаще располагаются в виде цепочек. Форма и величина колоний аналогична форме и величине колоний Str. lactis. Оптимальная температура развития Str. cremoris 20-25°С, максимальная 35-38°С. Через 12 ч в молоке образует прочный сгусток сметанообразной консистенции. Предельная кислотность, образуемая Str. cremoris в молоке, ПО-115°Т. Ферментативные свойства также идентичны. Str. cremoris отличается от Str. lactis по способности сбраживать мальтозу, декстрин, сахарозу. Str. cremoris не растет при 40°С в среде с 4% NaCl при рН 9,2. Str. cremoris не разлагает казеина, иногда и салицина.
молочнокислый брожение бактерия гомоферментативный
Термофильные стрептококки
Эта группа
микроорганизмов длительное время игнорировалась исследователями микрофлоры
кефирных грибков. Считалось, что, поскольку продукт вырабатывают при
сравнительно низких температурах, термофильных микроорганизмов в нем не должно
быть. Количество этих микроорганизмов резко возрастает при повышении
температуры культивирования. Роль термофильных молочнокислых палочек в кефирной
закваске и кефире, по-видимому, достаточно существенна. Эта группа проявляет
себя во всех случаях нарушения режимов культивирования грибков - повышения
температуры, увеличения выдержки и т.д. Интенсивное развитие ее в закваске
приводит к излишнему повышению кислотности и к подавлению мезофильных
молочнокислых стрептококков.
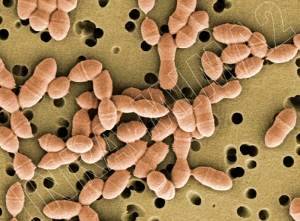
К ним относятся Streptococcus thermophilus. Термофильные стрептококки по
сравнению с мезофильными лучше развиваются при повышенной температуре.
Термофильные стрептококки в отличие от мезофильных сбраживают сахарозу. Поэтому
для их выделения из посевного материала к безуглеводной питательной среде
добавляют сахарозу. Форма и расположение клеток в мазках идентична морфологии и
расположению клеток Str. cremoris. Клетки несколько крупнее, располагаются в
виде цепочек разной длины. Но Str. thermophilus имеет и свои особенности
(оптимальная температура развития 40-45°С, максимальная 45-50°С).
При росте на твердых
питательных средах Str. thermophilus образует округлой формы с зернистой
структурой поверхностные и глубинные лодочкообраз-ные, иногда с выростом
колонии. При оптимальной температуре развития термофильный стрептококк
свертывает молоко за 3,5-6 ч, образуя ровный, прочный сгусток сметанообразной
консистенции; предельная кислотность 110-120°Т. Некоторые штаммы стрептококка
выделяют диацетил. Термофильный стрептококк не сбраживает мальтозы, декстрина и
салицина; не разлагает казеина.
Энтерококки - молочнокислые стрептококки кишечного происхождения. К ним относятся Str. liquefaciens (Mammococcus), Str. faecalis, Str. zymogenes, Str. faecium», Str. durans, Str. bovis. Они обитают в кишечнике человека и животных, в навозе, сточных водах. В больших количествах находятся в сыром и в малых в пастеризованном молоке, сыре.
Гомоферментативное молочнокислое брожение
Гомоферментативное молочнокислое брожение, в основе которого лежит гликолитический путь разложения глюкозы, является единственным способом получения энергии для группы эубактерий, которые при сбраживании углеводов превращают в молочную кислоту от 85 до 90% сахара среды. Бактерии, входящие в данную группу, морфологически различны. Это кокки, относящиеся к родам Streptococcus и Pediococcus, а также длинные или короткие палочки из рода Lactobacillus. Последний подразделяется на три подрода. Бактерии, включенные в два из них (Thermobacterium, Streptobacterium), также осуществляют гомоферментативное молочнокислое брожение. Все бактерии этой группы положительно окрашиваются по Граму, не образуют спор, неподвижны. Группа весьма гетерогенна в отношении нуклеотидного состава ДНК: молярное содержание ГЦ-пар оснований колеблется от 32 до 51%. Значительные колебания по этому признаку характерны и для бактерий, объединенных в роды и даже подроды.
Лактатдегидрогеназа, катализирующая превращение пирувата в лактат, стереоспецифична. У разных видов она содержится в виде определенных оптических изомеров; в зависимости от этого бактерии продуцируют D- или L-форму молочной кислоты. Те из них, которые образуют смесь D- и L-форм, содержат или две формы фермента, различающиеся стереоспецифичностью, или лактатрацемазу.
У этой группы эубактерий молекулярный кислород не включается в энергетический метаболизм, но они способны расти в присутствии О2, т.е. являются аэротолерантными анаэробами. В их клетках в значительном количестве содержатся флавиновые ферменты, с помощью которых происходит восстановление молекулярного кислорода до Н2О2. Из-за неспособности молочнокислых бактерий синтезировать гемовую группу у них отсутствует каталаза - фермент, катализирующий разложение перекиси водорода, поэтому последняя может накапливаться в клетке.
Особенностями конструктивного метаболизма гомоферментативных молочнокислых бактерий являются слабо развитые биосинтетические способности, что выражается в большой зависимости их роста от наличия в питательной среде готовых органических веществ (аминокислоты, витамины группы В, пурины, пиримидины). В качестве источника углерода молочнокислые бактерии используют лактозу (молочный сахар) или мальтозу (растительный сахар, образующийся при гидролизе крахмала). Могут они также использовать некоторые пентозы, сахароспирты и органические кислоты.
Из всех известных непатогенных прокариот молочнокислые бактерии отличаются наибольшей требовательностью к субстрату. Зависимость этих бактерий от наличия готовых органических веществ среды указывает на примитивность в целом их конструктивного метаболизма.
Молочнокислые бактерии распространены там, где они могут обеспечить свои высокие потребности в питательных веществах и где имеются большие количества углеводов, переработка которых дает им необходимую для роста энергию. Их много в молоке и молочных продуктах, на поверхности растений и в местах разложения растительных остатков; обнаружены они в пищеварительном тракте и на слизистых оболочках животных и человека.
Молочнокислым бактериям принадлежит главная роль в осуществлении ряда процессов, используемых с давних времен для получения различных кисломолочных продуктов, в процессах соления и квашения овощей, силосования кормов. Кефир - продукт совместной деятельности молочнокислых бактерий и дрожжей. Известно много национальных кисломолочных продуктов (кумыс, йогурт и др.), для приготовления которых используют кобылье, верблюжье, овечье, козье молоко, а в качестве закваски - естественно возникшие и сохраняемые комплексы молочнокислых бактерий и дрожжей.
Молочнокислые бактерии играют также большую роль в процессе приготовления сыров и сливочного масла. Первый этап производства сыров (створаживание белков молока) осуществляется молочнокислыми бактериями.
Скисание сливок, необходимое для
получения сливочного масла, также вызывают бактерии рода Streptococcus. Помимо
молочной кислоты некоторые из них образуют ацетоин и диацетил, придающие
сливочному маслу характерный запах и вкус. Субстратом служит лимонная кислота,
содержание которой в молоке может достигать 1 г/л. Реакции, ведущие к
образованию этих веществ, начинаются с расщепления лимонной кислоты:
НООССН2СООНСН2СООН СН3СН2СООН + С2Н5ООССОСН2СООС2Н5
СООН
Уксусная кислота выделяется в среду,
а щавелевоуксусная кислота (ЩУК) декарбоксилируется, что приводит к образованию
пирувата:
С2Н5ООССОСН2СООС2Н5
СН3СОСООН+ СО2 (1)
Дальнейшее метаболизирование
пирувата осуществляется по трем различным путям: часть молекул
восстанавливается до молочной кислоты; другая часть подвергается
декарбоксилированию, приводящему к возникновению разных С2-интермедиатов
(ацетил-КоA и «активный» ацетальдегид) и взаимодействию между ними,
заканчивающемуся синтезом молекулы диацетила. Восстановление последнего приводит
к образованию ацетоина:
СН3-СО-СО-СН3 + НАД*Н2
СН3-СНОН-СО-СН3 + НАД+ (2),
где СН3-СО-СО-СН3 - диацетил, а СН3-СНОН-СО-СН3 - ацетоин.
Эта последовательность реакций не связана с получением клеткой энергии. Смысл ее, возможно, в дополнительном своеобразном решении «акцепторной проблемы», так как, во-первых, образование пирувата в реакции 1 не сопровождается синтезом НАД*Н2, и, во-вторых, синтез ацетоина из диацетила (реакция 2) требует дополнительных молекул НАД*Н2.