Материал: Патофизиология нейроэндокринной системы
стероидными гормонами сменяется ядерным связыванием комплекса и стимуляцией синтеза мРНК.
Особое место занимают тиреоидные гормоны.
Механизм действия тиреоидных гормонов (рис. 115). Тиреоидные гормоны оказывают многочисленные и разнообразные эффекты на дифференцировку, развитие и метаболический гомеостаз, контролируя синтез
иактивность регуляторных белков, в том числе ключевых ферментов метаболизма, гормонов и рецепторов. Известное действие тиреоидных гормонов на потребление кислорода определяется отчасти стимуляцией натриевого насоса за счет индукции мембранного фермента натрий-калий-зависимой АТФазы. Этот и другие метаболические эффекты тиреоидных гормонов зависят от гормональной индукции синтеза РНК, осуществляемой путем регуляции экспрессии генов на ядерном уровне. Хотя существует и прямое влияние тиреоидных гормонов на клеточную мембрану
ина митохондрии.
Основным йодтиронином, секретируемым щитовидной железой, является тироксин (Т4), которому сопутствует небольшое количество трийодтиронина (Т3). В клетках-эффекторах Т4 дейодируется в Т3, который представляет собой главную внутриклеточную форму гормона. Это превращение происходит в плазматической мембране и эндоплазматическом ретикулуме. Хотя и показано присутствие связывающих Т3 белков в цитоплазме, но они обладают относительно низким сродством к гормону. Поэтому в качестве истинного рецептора Т3 рассматриваются ядерные участки, ответственные за эффекты тиреоидных гормонов.
16
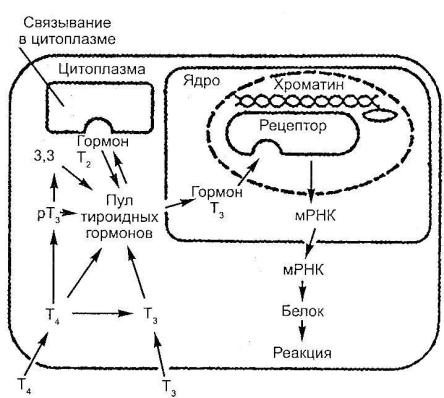
Рис. 115
Механизм действия тиреоидных гормонов (K.I. Catt, M.I. Dufan,
1982)
Эффекты и взаимоотношение Т3 и Т4 в клетках, реагирующих на поступление тиреоидных гормонов. Процесс активации ядра зависит от связывания Т3 с ядерными рецепторами, а не от отдельно существующих цитоплазматических рецепторов, как это имеет место в клетках-мишенях стероидных гормонов.
Строение и функция эндокринной системы
Центром эндокринной системы принято считать гипоталамо-гипофизарный комплекс. Прочие железы внутренней секреции обозначают как периферические. Это разделение основано на том, что в числе гормонов, продуцируемых передней долей гипофиза, вырабатываются так называемые тропные или кринотропные, которые активируют некоторые периферические эндокринные железы.
На основании морфологических и функциональных критериев этот комплекс можно разделить на две части:
1. Систему, состоящую из гипоталамуса и нейрогипофиза (задней доли гипофиза) − в нервных клетках супраоптического и паравентрикулярного ядер вырабатываются АДГ (антидиуретический гормон) и окситоцин, которые по аксонам нейросекреторных клеток, образующих гипоталамо-гипофизарный тракт, поступают в заднюю долю гипофиза, где терминали аксонов образуют тесные контакты с капиллярами, куда и секретируют гормоны при возбуждении нейросекторных клеток.
17

2. Систему, образованную гипофизотропной зоной гипоталамуса, которая располагается в серединном возвышении, связанной с аденогипофизом (передней долей гипофиза) посредством воротной системы гипофиза (эта воротная система начинается ветвями верхней гипофизарной артерии, которые распадаются на мелкие капиллярные петли, возвратные ветви которых, образуя воротные вены, несут кровь к капиллярному сплетению аденогипофиза). В дополнение к нейросекреторным клеткам, вырабатывающим АДГ и окситоцин, гипоталамус содержит мелкие нервные клетки, открытые позднее первых, которые вырабатывают факторы, стимулирующие или ингибирующие высвобождение гормонов передней доли гипофиза − гипофизотропные гормоны. Так как аденогипофиз, в свою очередь, регулирует секрецию многих других гормонов, эта гипофизарная зона представляет собой узловой участок коммуникационных путей, связывающих нервную систему с эндокринной.
Таким образом, нейросекреторные клетки гипоталамуса являются местом трансформации нервных стимулов в гуморальные факторы, обладающие высокой специфичностью и физиологической активностью. Они, владея, по образному выражению Эрнста Шаррера (E. Scharrer) (1952), «двумя языками» − нервным и гуморальным, играют роль своего рода переводчиков «языка приказаний нервной системы на язык гуморальной активности».
Гипоталамус структурно и функционально связан со средним мозгом, лимбической системой и ринэнцефалическими ядрами переднего мозга.
Влияние гипоталамуса на гипофиз осуществляется по меньшей мере тремя путями: нервные механизмы; секреция гипофизотропных гормонов (релизинг-факторов); через пептиды − энкефалины и эндорфины − так называемые «эндогенные опиаты» (наиболее характерный их признак − морфиноподобное действие), нейротензин, вещество Р и т.д. Роль последней группы веществ в настоящее время окончательно не выяснена в механизмах эндокринной регуляции. Однако, поскольку общей их особенностью является гипофизотропная активность, то все они родственны релизиг-факторам.
Учитывая, что ряд из этих веществ − субстанция Р (угнетает стимулированную кортикотропин-релизинг-фактором секрецию АКТГ), нейротензин (принимает участие в стимуляции секреции СТГ, пролактина, ТТГ и АКТГ, гонадотропных гормонов) − вырабатывается в желудочно-кишечном тракте клетками, входящими в систему APUD, следует предположить, что функция гипофиза контролируется не только гипоталамусом, но на нее могут влиять и другие отделы эндокринной системы.
Все периферические железы внутренней секреции можно разделить на две основные группы по отношению к передней доле гипофиза.
Первую группу составляют гипофиззависимые железы: щитовидная железа, гонады и кора надпочечников (глюкокортикоидная функция
18
надпочечников). Зависимость этих желез от передней доли гипофиза настолько велика, что гипофизэктомия влечет за собой резкое ослабление их функциональной деятельности и даже атрофию их паренхимы. В свою очередь, гормоны гипофиззависимых периферических желез действуют на переднюю долю гипофиза, угнетая продукцию и секрецию соответствующих кринотропных гормонов. Таким образом, реципрокные взаимоотношения между передней долей гипофиза и активируемыми ею периферическими железами имеют характер отрицательных обратных связей, или «плюс-минус взаимодействий» (как их в свое время обозначали).
Вторую группу периферических желез внутренней секреции составляют независимые от передней доли гипофиза железы. К группе независимых принадлежат околощитовидные железы, клубочковая зона коры надпочечников, продуцирующая минералокортикоиды, хромаффинные клетки мозговой части надпочечников, К-клетки щитовидной железы, островки Лангерганса поджелудочной железы, энтерохромаффинные и аргирофильные клетки желудка и кишечника. Инкреторная активность этих желез определяется непосредственно уровнем их гормонов, находящихся в циркуляции, или интенсивностью тех эффектов, которые вызываются в организме гормонами этих желез. Поэтому независимые железы могут рассматриваться как саморегулирующиеся. Однако выраженная саморегуляция деятельности этих желез отнюдь не означает их автономности. Из того, что регуляция некоторых периферических эндокринных желез обеспечивается без обязательного участия кринотропных гормонов гипофиза, вовсе не следует, что они вообще не испытывают зависимости от организма в целом. В частности, в некоторых из таких желез достаточно отчетливо обнаруживается зависимость от прямых нервных импульсов (например, мозговой слой надпочечников, эндокринная часть поджелудочной железы). Кроме того, СТГ, влияя на синтез белков, может оказывать влияние и на образование белкового гормона − инсулина в поджелудочной железе.
Сдругой стороны, способность к саморегуляции иногда проявляется и
ужелез, деятельность которых явно активируется гипофизарными кринотропными гормонами.
Следует отметить, что эндокринные железы, удаление которых неизбежно приводит к смерти (околощитовидные, клубочковая зона коры надпочечников, панкреатические островки), относятся к группе саморегулирующихся желез.
Экскреция же зависимых желез и даже самого гипофиза не является смертельной, и жизнь без них может продолжаться, хотя и с существенными отклонениями от нормы.
Необходимо учитывать, что взаимодействие между эндокринными органами далеко не исчерпывается реципрокными связями между периферическими железами и передней долей гипофиза. Не исключена возможность действия гормона одной железы на другую не только
19
опосредованно через переднюю долю гипофиза, но и непосредственно (например, тиреоидных гормонов на островки Лангерганса или на кору надпочечников, инсулина на щитовидную железу и т.д.). Влияние может осуществляться помимо прямого действия гормонов и в результате изменения эффектов, вызываемых в организме гормонами гипофиззависимых желез. Например, щитовидная железа или кора надпочечников могут оказывать влияние на поджелудочную железу не столько непосредственно своими гормонами, сколько тем, что эти гормоны участвуют в контролировании углеводного обмена в организме, изменяя уровень сахара в крови или содержание гликогена в печени, что, в свою очередь, сопровождается сдвигами в секреции инсулина и глюкагона вследствие отмеченного изменения уровня сахара в крови.
Наконец, разбросанные по разным органам и тканям клетки, вырабатывающие регуляторные пептиды (субстанцию Р, нейротензин, соматостатин, холецистокинин, вазоактивный интестинальный пептид [ВИП]) и амины (серотонин, гистамин, кинины), образуют диффузную эндокринную систему − систему APUD, связанную с интегральной эндокринной системой, представленной перечисленными выше структурами (по крайней мере, на уровне гипофиза).
Кроме уже названных структур, образующих эндокринную систему, следует еще упомянуть юкстагломерулярный аппарат (ЮГА) почки, работающий как эндокринная железа и выделяющий по меньшей мере два вещества, относимых исследователями к гормонам: ренин и эритропоэтин.
В предсердиях вырабатывается увеличивающий почечную фильтрацию, уменьшающий канальцевую реабсорбцию, снижающий секрецию почками ренина гормон − атриопептин (синонимы: натрийуретический фактор − ANF [atrium natriuretic factor], аурикулин, кардинатрин).
Образуются вещества с гормональной активностью в кишечнике. Это гастрин, холецистокинин.
Все без исключения железы внутренней секреции находятся под постоянным контролем вегетативной нервной системы − ее симпатического и парасимпатического отделов. Неоднократно высказывалось мнение, что нервы эндокринных желез выполняют главным образом сосудодвигательную функцию. В этом случае кровеносные сосуды (их тонус, скорость кровотока) являются основным рычагом, посредством которого эфферентные нервы оказывают влияние на гормонопоэз. Кроме того, известно, что медиаторы симпатических и, возможно, парасимпатических окончаний нервов кровеносных сосудов могут частично выделяться в межклеточную жидкость и оказывать прямое влияние на паренхиматозные клетки, регулируя уровень усвоения этой клеткой питательных веществ и чувствительность к гуморальным раздражителям (релизинг-факторам гипоталамуса, кринотропным гормонам гипофиза, кортикостероидам, глюкозе, кальцию
20