Материал: Патофизиология нейроэндокринной системы
крови).
Таким образом, развитие дистрофии эндокринных желез при их денервации определяется главным образом изменением их чувствительности на специфические стимуляторы.
Механизмы функционирования интегральной эндокринной системы. Интегральная эндокринная система построена по принципу замкнутого контура, который возмущается (выходит из равновесия) под влиянием раздражения экстероили интерорецепторов. Гипоталамус, гипофиз и гипофиззависимые железы образуют три одинаково построенных оси (рис. 116). При этом важное место отводится обратным связям: ультракоротким (сам гормон влияет на активность железы, его вырабатывающей, − например, релизинг-фактор на гипоталамус), коротким (гормон влияет на активность вышерасположенной в оси железы − например, тропный гормон гипофиза на гипоталамус), средним (вырабатываемый железой гормон влияет «через этаж» на выше расположенные структуры − например, тропные гормоны гипофиза на ЦНС) и длинным (гормон влияет на активность структур, расположенных выше, чем через этаж, − например, гормон железы-мишени на ЦНС, информация с клеток-эффекторов на ЦНС, гипоталамус). В своем большинстве обратные связи являются отрицательными, то есть оказывают тормозящее действие. Однако обратная связь может быть не только отрицательной, но и положительной. Так, низкие концентрации половых гормонов (например, эстрогенов) могут усиливать гонадотропную функцию гипофиза. Этот механизм имеет существенное значение в физиологии половых циклов.
21
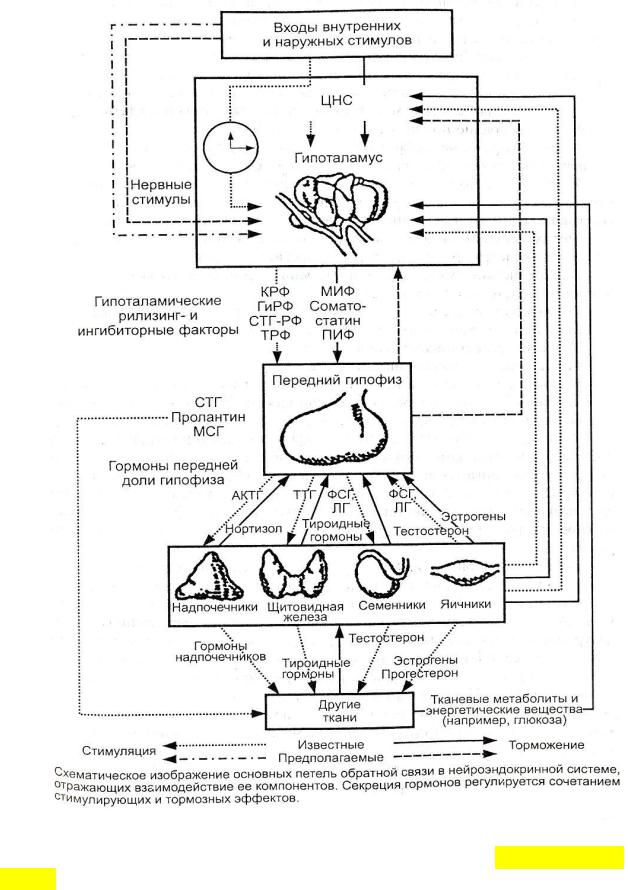
Рис. 116
Схема функционирования эндокринной системы (Findling J.W. с
соавт., 1982)
При обсуждении функции как длинных, так и коротких петель обратной связи следует несколько коснуться концепции
22

гематоэнцефалического барьера. Проникновение вещества через гематоэнцефалический барьер зависит от размера его молекул, связывания с белками плазмы, растворимости в жирах, присутствия специфических переносчиков и механизмов активного транспорта, а также рецепторов в центральной нервной системе. Гематоэнцефалический барьер непроницаем для белковых гормонов, но пропускает стероидные и тиреоидные гормоны. Однако, как адено-, так и нейрогипофиз располагаются вне гематоэнцефалического барьера. В то же время остается открытым вопрос − могут ли пептидные гормоны попадать в гипоталамус ретроградно по воротным венам гипофиза.
Наряду с прямыми и обратными связями внутри каждой оси имеются и «поперечные» связи, обеспечивающие межсистемные взаимодействия.
В результате большого количества экспериментов было установлено, что гипоталамус посылает эфферентную импульсацию ко всем железам (как гипофиззависимым, так и гипофизнезависимым) по нервным путям. Только в обычных условиях гипоталамическое влияние на гипофиззависимые железы осуществляется преимущественно трансгипофизарно.
Биологический смысл такого построения эндокринного звена нейроэндокринной системы определяется следующими факторами:
−благодаря системе дублирования повышается надежность системы;
−по направлению сверху вниз происходит усиление стимула;
−достигается минимальная инертность системы;
−достигается специфичность эффекта.
Интегральная эндокринная система состоит из трех осей (рис. 116): гипофизарно-адреналовой, гипофизарно-тиреоидной и гипофизарно-половой. Функциональное состояние каждой оси неизменно зависит от общего гормонального баланса в организме. Так, резкий дефицит или, напротив, избыточное количество в организме кортикостероидов влечет за собой угнетение функции половых органов и щитовидной железы. Недостаток или повышенный уровень половых гормонов сопровождается угнетением щитовидной железы и нарушением функции надпочечников. Наконец, флюктуации уровня тиреоидных гормонов синхронно изменяют продукцию стероидных гормонов.
Рассмотрим принципы работы системы. В нормальных условиях информация о метаболизме гормонов по нервным путям передается в ЦНС, в «акцептор результата действия» (согласно теории функциональных систем П.К. Анохина) системы. Показательно, что перерезка межуточного мозга на уровне четверохолмия, то есть прерывание этих импульсов, предупреждает типичную реакцию со стороны, например, гипоталамо-гипофизарно-адреналовой системы, обычно завершающуюся выбросом в кровь кортикостероидных гормонов. К образованиям ЦНС, входящим в «акцептор результата действия» нейроэндокринной системы имеются основания отнести гиппокамп, лимбические структуры,
23
миндалевидные тела, стриопаллидарный комплекс и ряд других структур, разрушение или стимуляция которых резко изменяет секретообразование в гипофизе и железах мишенях. Вполне вероятно, что в ЦНС дифференцированы «акцепторы результата действия» каждой субсистемы гипофиз-железа-мишень и они не ограничиваются названными выше структурами. На основании поступающей с периферии информации «акцептором результата действия» корректируется продукция гипоталамических релизинг-гормонов, тропных гормонов гипофиза и, наконец, гормонов желез-мишеней, необходимых для поддержания общего гормонального баланса в тканях.
Так функционирует нейроэндокринная система в нормальных условиях, когда все ее компоненты находятся на своих местах. Какие же изменения в работе системы происходят при выключении железы-мишени, например надпочечника? Сигнальная информация о дефиците кортикостероидов передается на «акцептор результата действия». В ответ на недостаток гормонов надпочечников усиливается образование и сброс в портальное русло гипофиза кортикотропин-релизинг гормонов, которые, в свою очередь, стимулируют продукцию АКТГ. Но надпочечники-то удалены, и, следовательно, своеобразная «рефлекторная дуга» не завершается адекватным выбросом кортикостероидов. С периферии в центр продолжают поступать сигналы о недостатке гормонов надпочечников.
Поскольку наступил дефицит гормонов надпочечников, то в компенсацию включаются прежде всего образования гипофиза, ответственные за регуляцию этой железы. Образование дополнительного количества АКТГ осуществляется сначала за счет гиперфункции имеющихся кортикотропов. Затем (или одновременно с кортикотропами) в продукцию АКТГ включаются клетки промежуточной доли гипофиза. Но их включение не приводит к приспособительному эффекту. Тогда количество элементов, продуцирующих АКТГ, начинает дополнительно увеличиваться за счет резервных клеток − хромофобов, которые дифференцируются в кортикотропы.
В условиях адреналэктомии из нейроэндокринной системы выключено финальное звено − надпочечники, через которые, собственно, и опосредуется действие АКТГ, система не может стабилизироваться. «Перебрав» все механизмы гипофиза, направленные на повышенную продукцию АКТГ, система включает другие «компенсаторные каналы» на уровне желез-мишеней и эффекторов. Так, у адреналэктомированных крыс угнетается функция щитовидной и половых желез, резко изменяется толерантность тканей к тиреоидным и стероидным гормонам.
Аналогичным образом функционирует гипоталамо-гипофизарно-половая и тиреоидная субсистемы, с той лишь разницей, что при этом используются другие степени свободы на уровне гипофиза, желез-мишеней и эффекторов для достижения полезного
24
результата. В частности, при дефиците половых гормонов система включает гипофизарно-адреналовую ось, то есть способствует частичной перестройке гормонопоэза в надпочечнике в направлении биосинтеза половых гормонов.
В нормальных условиях степень реализации гормональной информации в тканях определяется не только уровнем данного гормона, но и соотношением его с другими гормонами. Для регуляции гормонального баланса в пределах, когда каждый гормон несет к клеткам максимальную по объему информацию, в филогенезе и была создана нейроэндокринная суперсистема. Но гормоны находятся в конкурентном отношении за биосубстрат, что особенно четко проявляется в условиях, когда происходят резкие сдвиги в гормональном балансе. Например, при повышении уровня одного из гормонов другие гормоны могут выбывать из конкуренции за аденилатциклазу, которая частично или полностью блокируется гормоном, уровень которого оказался чрезмерно высоким. В этих условиях гормоны не утилизируются, и в результате обратной афферентации в «центр» ослабевает выброс соответствующего релизинг-гормона и тропного гормона гипофиза. С этих позиций можно объяснить обнаруженную в клинике гипофункцию гипофизарно-адреналовой системы при введении больших доз половых гормонов и гипофизарно-половой системы при избытке в организме кортикостероидов. Наоборот, удаление, например, половых желез и наступающий в результате резкий недостаток половых гормонов приводят к тому, что другие гормоны (и прежде всего кортикостероиды), по существу, без конкуренции занимают аденилатциклазные участки цитомембран клеток.
Показательно, что гипофизарно-тиреоидная субсистема угнетается как при избытке, так и при дефиците половых гормонов и кортикостероидов. Этот факт обусловлен рядом причин, главной из которых, вероятнее всего, является регуляция тиреоидными гормонами окислительного фосфорилирования с выходом АТФ. Поскольку АТФ является основным субстратом для реализации гормонального эффекта, то, естественно, состояние щитовидной железы четко коррелирует с функцией других желез-мишеней. При отсутствии конкуренции за биосубстрат между гормонами энергетические затраты для реализации гормонально зависимых эффектов снижаются, что и определяет состояние гипоталамо-гипофизарно-тиреоидной системы.
Важную роль в действии гормонов играют количество и активность в клетках трансформирующих гормоны веществ.
Эндокринная система и адаптивные реакции организма
Эндокринная система является одной из центральных систем, регулирующих практически все функции организма, поэтому нет ни одной его адаптивной реакции, которая в большей или меньшей степени от этой системы ни зависела. Наиболее ярко адаптивная роль эндокринной системы показана в стресс-реакциях. Правда, при их описании внимание уделяют
25