Магистерская работа: Сравнительное исследование микробных сообществ щелочных слабоминерализованных гидротерм Байкальской рифтовой зоны и щелочных минерализованных гидротерм озера Моно-Лейк на острове Паоха
Зона IV. Кроме проб отобранных из русла источника были отобраны пробы мата находящегося в стороне от основного русла. В этой зоне поступление воды из источника ограничено, при прохождении через мат вся вода испаряется с поверхности или просачивается в породу под матом (рис. 2в). Температура воды понижается с 44 до 30°С. Содержание сульфата в воде возрастает до 400 мг/л (по сравнению с 270 мг/л в основном русле), что, вероятно, связано с концентрированием в результате испарения и уменьшением вымывания из мата. Толщина мата около 1 см. Поверхность оранжево-бурого цвета, толща мата обесцвеченная. В поверхностном слое доминирует Phormidium angustissimum. В толще мата также доминирует Phormidium angustissimum, но обесцвеченный и с более толстыми чехлами. Также в мате встречаются Anabaena contorta и Anabaena minutissima. Литификация микробного мата не происходит. Микробный мат высыхает и образует тонкие постепенно разрушающиеся корки
Таким образом, по изливу источника происходит
смена микробных сообществ, вызванная изменением физико-химических параметров
среды обитания. С уменьшением температуры состав фототрофного сообщества
расширяется и достигает максимального разнообразия при 40°C.
При уменьшении поступления воды источника происходит снижение видового
разнообразия фототрофного сообщества. Во всех зонах цианобактерии доминируют в
составе микробного мата. Особенностью видового состава микробного сообщества
источника является доминирование цианобактерий рода Anabaena
в
некоторых точках. Аноксигенные фототрофные бактерии встречаются в меньшем
количестве, чем цианобактерии.
Таблица 3. Распространение цианобактерий в микробных матах Гаргинского источника
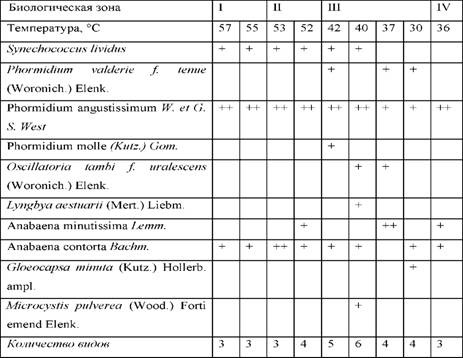
Примечание: "++" - доминирующий вид,
"+" - вид присутствует.
.1.2 Биогеохимическая активность
Исследование содержания пигментов в микробных матах источника было проведено в 1997 и 2000 годах. Анализ спектров in vivo микробных матов показывает, что в них доминирует хлорофилл а, что указывает на преобладание цианобактерий в составе мата. Измерение содержания хлорофилла а в этанольных экстрактах показывает, что с понижением температуры содержание пигмента в матах постепенно возрастает. В зоне I содержание хлорофилла а 7-108 мг/м2, тогда как в зонах II и III достигает 429 мг/м2 и 420 мг/м2 соответственно. В зоне IV - 32 мг хл а/м2. В различные годы содержание хлорофилла а колеблется в широком диапазоне. Так, указанное максимальное содержание хлорофилла было зафиксировано в 1997 году, тогда как в 2000 году содержание хлорофилла не превышало 35 мг/м2. Подобные колебания могут быть объяснены литификацией и захоронением микробного мата.
Определение скоростей продукционно-деструкционных процессов было проведено в 1997, 2000, 2001, 2002 годах. Результаты экспериментов с использованием 14 С-бикарбоната показали, что с понижением температуры скорость фотосинтеза в матах постепенно возрастает (таб. 4, рис. 3).
В зоне излива источника фотосинтез не обнаруживается. Далее по изливу источника в зоне I при температуре 57-54°С скорость оксигенного фотосинтеза составляла в различные годы от 0.01 гС/м2 до 0.303 гС/м2. Скорость аноксигенного фотосинтеза (от 0.032 до 0.2 гС/м2 сут) практически равна скорости оксигенного фотосинтеза. Доля оксигенного фотосинтеза колеблется от 24 до 60%, доля аноксигенного колеблется от 40 до 76%. В цианобактериальных матах, развивающихся в зоне II при температуре от 53 до 45°С, скорость оксигенного фотосинтеза составляет от 0.13 до 1.27 гС/м2 сут. Скорости аноксигенного фотосинтеза в значительно ниже (от 0.047 до 0.459 гС/м2 сут). Доля оксигенного фотосинеза составляет от 69 до 90%. Доля аноксигенного от 10 до 31%. При понижении температуры до 44°N в зоне III скорость оксигенного фотосинтеза понижается и составляет 0.86 гС/м2 сут. Скорость аноксигенного фотосинтеза составляет 0.102 гС/м2 сут. Доля оксигенного фотосинтеза составляет 89%, доля аноксигенного 11%. В зоне IV при температуре 44 до 30°С скорость оксигенного фотосинтеза падает до 0.128 гС/м2 сут, скорость аноксигенного фотосинтеза составляет 0.112 гС/м2 сут. Доля оксигенного фотосинтеза составляет 53%, аноксигенного 47%.
Скорость темновой фиксации в зоне излива составляет 0.19 гС/м2 сут. С дальнейшим понижением температуры постепенно возрастает и достигает максимума в зоне III при 40°С (1.2 гС/м2 сут).
Скорость сульфатредукции в микробных матах вдоль русла источника была исследована с применением 35S - сульфата. В зоне излива источника происходит образование сероводорода за счет сульфатредукции со скоростью 0.013 tS/м2 сут. Процессы идут, видимо, за счет доноров электронов, поступающих с водой (Н2, органическое вещество). По изливу скорость сульфатредукции в микробных матах постепенно возрастает (рис. ) и достигает максимума при 45°С (2.13 tS/м2 сут). При дальнейшем понижении температуры до 40°С скорость сульфатредукции падает до 0.293 tS/м2 сут. В зоне IV при температуре 36°С скорость сульфатредукции составляет 1.19 tS/м2 сут.
Скорость водородного метаногенеза незначительна. В зоне излива достигает 169 мкгС/м2 сут и достигает максимума (398 мкгС/м2 сут) при 45°С.
Доминирующим процессом терминальной деструкции в микробных матах источника является сульфатредукция. Максимальная величина расхода органического вещества через сульфатредукцию составляет 1.6 гС/м2 сут, тогда как через метаногенез расходуется максимум 1.4 мгС/м2 сут.
С понижением температуры продуктивность систем резко возрастает. Как следствие, суммарная деструкция также ускоряется, хотя и не так быстро, как продукция органического вещества. В зоне II, где скорости этих процессов максимальны, через метаногенез и сульфатредукцию минерализуется до 60% органического вещества. Большая часть оставшегося органического вещества микробных матов, очевидно, используется в процессах кислородного дыхания или захоранивается в процессе литификации мата. Обращает на себя внимание значительное превышение деструкции над продукционными процессами в зоне IV, где расход органического вещества составляет 370%. Это может быть объяснено временным снижением скоростей продукционных процессов в микробном мате вследствие уменьшения дебита поступающей в мат воды и последующим дисбалансом системы.
Таким образом, в Гаргинском источнике наиболее
продуктивными являются сообщества развивающиеся при температуре 53-45°С (зона II). Доминирующим
продукционным процессом является оксигенный фотосинтез. Высокой скорости
достигает темновая фиксация углекислоты. Доминирующим процессом терминальной
деструкции является сульфтредукция, роль метаногенеза незначительна.
.2 Уринский источник
.2.1 Распространение и видовой состав микробных сообществ в связи с изменением физико-химических условий среды
В Уринском источнике, в воде которого
отсутствует сульфид, невозможно выделить несколько биологических зон
последовательно сменяющих друг друга вдоль русла источника. Термальные воды
изливаются между глыбами биотитовых гранитов в нескольких, хаотично
расположенных местах. Поэтому мы выделяем 8 типов микробных сообществ и
объединяем их в 4 группы согласно температуре их обитания (таб.5).
Таблица 5. Физико-химические условия в биологических зонах Уринского источника.
|
Группа |
Точка |
Описание микробного мата |
Т, еС |
H2S, мг/л |
Eh |
рН |
|
Зона излива |
8 |
Микробные обрастания |
66-69 |
< 0.1 |
-33 |
8.8 |
|
65-60еС |
5 |
Двуслойный желто-зеленый мат |
64 |
|
70 |
8.8 |
|
|
6 |
Белые космы |
63 |
|
28 |
8.8 |
|
|
7 |
Ярко-оранжевые обрастания |
61 |
|
-130 |
8.8 |
|
45-50еС |
2 |
Оранжевый трехслойный мат |
47.6 |
|
178 -196 |
9.7 * |
|
|
1 |
Изумрудно-зеленый двуслойный мат |
46.5 |
|
138 * |
8.8, 9.1 * |
|
40-35еС |
4 |
Двуслойный желто-зеленый мат |
40 |
|
199 |
9.7 * |
|
|
3 |
Темно-коричневые космы |
38.5 |
|
168 |
9.2 |
Примечание: * - на поверхности мата.
Зона излива
В зоне излива при температуре 66-69°С значительные микробные обрастания отсутствуют (ст. Уро-8). Дно источника покрыто серым песком, микробные обрастания обнаруживаются только на поверхности занесенного человеком органического вещества (остатки макарон). Обрастания оранжевого цвета, занимают незначительную площадь.
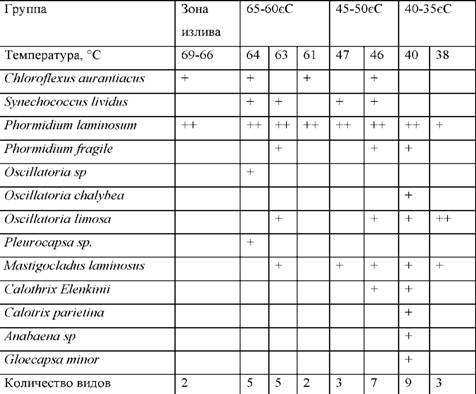
В составе обрастаний обнаружены Chloroflexus aurantiacus и цианобактерии Phormidium laminosum (таб. 6).
Группа 65-60°С.
При температуре 64°С у одного из выходов вдоль русла источника развивается двуслойный плотный мат желто-зеленого цвета толщиной около 1 см (ст. Уро-5). Верхний слой желто-зеленого цвета толщиной около 1 мм. В нем доминируют Phormidium laminosum и встречаются Synechococcus lividus, Oscillatoria sp., (2.5-3 мкм толщиной), Pleurocapsa sp. и Chloroflexus aurantiacus. Нижний слой толщиной 1 см многослойный, зеленого цвета с прожилками. В воде источника мат теряет зеленый цвет и образует розовый многослойный хрящ толщиной около 1 см. Из проб микробных матов был выделен штамм аноксигенной фототрофной бактерии Chloroflexus aurantiacus. При температуре 63°С у одного из выходов источника в русле развиваются длинные белые космы со слабо-розовым оттенком (ст. Уро-6.). Thermothrix sp. при микроскопировании не обнаружен. В обрастаниях преобладают пустые чехлы нитчатых цианобактерий (рис. 4д). Среди цианобактерий доминирует Phormidiym laminosum, встречается Mastigocladus laminosus, реже Phormidium fragile, Oscillatoria limosa, Synechococcus lividus .
На дне русла в большом количестве встречаются остатки пищи (ст. Уро-7). По остаткам макарон и по дну ручья при температуре 61°С развивается ярко-оранжевый налет Chloroflexus aurantiacus и цианобактерии Phormidiym laminosum. Из проб микробных обрастаний был выделен штамм аноксигенной фототрофной бактерии Chloroflexus sp. Анализ спектра in vivo микробного мата показывает доминирование хлорофилла а.
Группа 45-50°С. При температуре 47°С вдоль русла источника развивается трехслойный мат оранжевого цвета (ст.Уро-2). Верхний слой желтого цвета толщиной около 2 мм. В составе доминирует Phormidium laminosum и Synechococcus lividus, в меньшем количестве встречается Mastigocladus laminosus, Chloroflexus aurantiacus, диатомеи. Между верхним и средним слоями в большом количестве небольшие полости. Средний слой толщиной 4 мм светло-зеленого цвета, доминирует Phormidium laminosum, часто встречается Synechococcus lividus, в небольших количествах Mastigocladus laminosus. Нижний слой темно-зеленого цвета толщиной 3 мм. Под нижним слоем находится серая масса толщиной около 7 мм.
При температуре 46°С в русле источника развивается двуслойный мат изумрудно-зеленого цвета толщиной около 2 мм (ст. Уро-1). Верхний слой темный, толщиной 1 мм. Доминирует Phormidium laminosum (до 90 % по объему), в большом количестве встречается Synechococcus lividus, Oscillatoria limosa, Phormidium fragile, Chloroflexus aurantiacus. Единично встречаются Mastigocladus laminosus и Calothrix elenkinii. Нижний слой светлый, толщиной 1 мм, видовой состав и соотношение видов аналогично верхнему слою.
Группа 40-35°С.
При температуре 40°С развивается широкое поле матов. Мат двуслойный. Верхний слой толщиной 2-3 мм желтого цвета (ст. Уро-4). Доминирует Phormidium laminosum, часто встречается Phormidium phragile, реже Oscillatoria chalybea, Oscillatoria limosa, Anabaena sp., Calotrix Elenkinii и Mastigocladus laminosus. Нижний слой толщиной 5-6 мм темно-зеленого цвета. Доминируют Mastigocladus laminosus и Phormidium laminosum. Часто встречаются Gloecapsa minor. Редко встречается Oscillatoria limosa, Phormidium fragile и Calotrix parietina.
Уро-3. При температуре 38°С развиваются темно-коричневые, почти черные космы толщиной 2-3 мм. Доминирует Oscillatoria limosa (рис. 4а). Встречаются Mastigocladus laminosus и Phormidium laminosum.
Таким образом, с уменьшением температуры в
Уринском бессульфидном источнике состав фототрофного сообщества расширяется и
достигает максимального разнообразия при 40-35°C.
Исключение составляет станция Уро-3. В этой точке видовое разнообразие фототрофного
сообщества резко снижается, что может быть объяснено затенением микробного мата
нитями Oscillatoria
limosa с высоким
содержанием пигмента. Во всех зонах цианобактерии доминируют в составе
микробного мата. Аноксигенные фототрофные бактерии встречаются в меньшем
количестве, чем цианобактерии. Особенностью видового состава микробного
сообщества источника является присутствие цианобактерий Mastigocladus
laminosus, не встречающихся
более в других источниках.
Таблица 6. Распространение фототрофных бактерий в биологических зонах Уринского источника
.2.2 Биогеохимическая активность
Исследование содержания пигментов и определение скоростей продукционно-деструкционных процессов в микробных матах источника было проведено в 1997, 2000 и 2002 годах. Анализ спектров in vivo микробных матов показывает, что в них доминирует хлорофилл а, что указывает на преобладание цианобактерий в составе мата. Максимальное содержание хлорофилла а обнаруживается при температуре 45-50°С (892 мг/м2), при более высоких температурах (60-65°С) обнаруживается 35-82 мг/м2. При температуре 35-40°С содержание хлорофилла а достигает 463 мг/м2 (таб. 7).
Результаты экспериментов с использованием 14 С-бикарбоната показали, что с понижением температуры скорость фотосинтеза в матах постепенно возрастает (рис. 5). Доля оксигенного фотосинтеза увеличивается, а аноксигенного падает. В зоне излива источника скорость оксигенного фотосинтеза составляет 0.01-0.07 гС/м2 сут, скорость аноксигенного 0.05-0.14 гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 26 до 36%, доля аноксигенного от 64 до 74%.
При температуре 65-60°С скорость оксигенного фотосинтеза составляет от 0.002 до 0.16 гС/м2 сут, аноксигенного от 0.0076 до 1.16 гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 2 до 92%, доля аноксигенного от 8 до 98%. При температуре 45-50°С скорость оксигенного фотосинтеза составляет от 0.89 до 2.64 гС/м2 сут, аноксигенного от 0.14 до 0.6 гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 80 до 94%, доля аноксигенного от 6 до 20%. При температуре 35-40°С скорость оксигенного фотосинтеза составляет от 0.04 до 3.35 гС/м2 сут, аноксигенного от 0.04 до 0.51 гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 50 до 94%, доля аноксигенного от 6 до 50%. Высокая скорость аноксигенного фотосинтеза в высокотемпературных микробных матах может быть объяснена достаточно высокими величинами скорости сульфатредукции.
Скорость темновой фиксации в зоне излива составляет 0.31 гС/м2 сут. С понижением температуры возрастает и достигает максимума при 45-50°С (1.95 гС/м2 сут). При понижении температуры до 35-40°С скорость темновой фиксации падает до 0.2-0.45 гС/м2 сут.
Скорость сульфатредукции в микробных матах по изливу источника была исследована с применением радиоактивного 35S - сульфата. В зоне излива источника происходит образование сероводорода за счет сульфатредукции со скоростью 0.1-1.7 гё/ м2 сут. Процессы идут, видимо, за счет доноров электронов, поступающих с водой (Н2, органическое вещество) и за счет органического вещества накопленного в отложениях на дне русла. По изливу скорость сульфатредукции в микробных матах возрастает и достигает максимума при 65-60°С (0.0082-5.53 tS/м2 сут). При дальнейшем понижении температуры скорость сульфатредукции падает до 0.0041-1.49 г S/м2 сут, с небольшим максимумом при 45°С. Скорость водородного метаногенеза незначительна. В зоне излива достигает 131-562 мкгС/м2 сут, с понижением температуры падает до 14-18.3 мкгС/м2 сут при 35-40°С. Таким образом, доминирующим процессом терминальной деструкции в микробных матах Уринского источника является сульфатредукция. Максимальная величина расхода органического вещества через сульфатредукцию составляет 4.15 гС/м2 сут, тогда как через метаногенез расходуется максимум 2.2 мгС/м2 сут.
По изливу с понижением температуры продуктивность систем резко возрастает. Как следствие, суммарная деструкция также ускоряется, хотя и не так быстро, как продукция органического вещества. В зонах с температурами 35-40, 45-50°С где скорости продукционно-деструкционных процессов максимальны, через метаногенез и сульфатредукцию минерализуется до 61% органического вещества. Большая часть оставшегося органического вещества микробных матов, очевидно, минерализуется в процессах кислородного дыхания или захоранивается. Обращает на себя внимание значительное превышение деструкции над продукционными процессами в зоне излива и при температурах 65-60°С, где расход органического вещества составляет до 400% от продукции. Это дисбаланс может быть объяснен прекращением поступления доноров электронов при инкубировании изолированной пробы и занижением скорости темновой фиксации углекислоты, тогда как процесс сульфатредукции в пробе, скорее всего, продолжается за счет деструкции накопленного органического вещества. Таким образом, в Уринском источнике наиболее продуктивными являются сообщества развивающиеся при температуре 45-50°С. Следует отметить, что в этой зоне микробные маты Уринского источника обладают наибольшим содержанием хлорофилла а из всех исследованных нами источников (892 мг/м2). Доминирующим процессом терминальной деструкции является сульфтредукция, при этом в Уринском источнике было обнаружено максимальное значение скорости сульфатредукции из всех исследованных источников (до 5.53 tS/м2 сут). Роль метаногенеза в деструкции органического вещества незначительна.