Магистерская работа: Сравнительное исследование микробных сообществ щелочных слабоминерализованных гидротерм Байкальской рифтовой зоны и щелочных минерализованных гидротерм озера Моно-Лейк на острове Паоха
3.3 Сеюйский источник
.3.1 Распространение и видовой состав микробных сообществ в связи с изменением физико-химических условий среды
Выход источника приурочен к озеру размером 4*7
метров и глубиной 1.5 метра. Температура воды в озере 49.7°, содержание
сульфида 5 мг/л, рН воды на изливе 9.6. На дне озера и по поверхности воды
озера развиваются микробные обрастания. Далее по изливу развиваются
многослойные микробные маты, происходит уменьшение температуры и содержание
сульфида.
Таблица 8. Физико-химические условия в биологических зонах Сеюйского источника.
|
Биологическая зона |
Описание микробного мата |
Т, еС |
H2S, мг/л |
О2, мг/л |
Eh |
рН |
|
Озеро |
Обрастания на дне озера |
49, 7 |
5 |
0.4 |
-45 |
9.6 |
|
I |
Тонкий двуслойный темно-зеленый мат |
49-47 |
1.95 |
17 |
9.6 |
|
|
II |
Толстый многослойный мат |
47-43 |
0.6 |
2.56 |
146 |
9.7 |
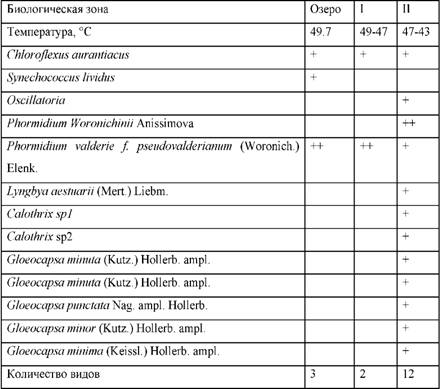
По дну озера, образованного на выходе источника, развиваются микробные обрастания темно-зеленого цвета. В составе мата доминирует Phormidium valderie f. pseudovalderianum, также присутствуют Synechococcus lividus и Chloroflexus aurantiacus. (рис. 6г, таб. 9).
Кроме того, на поверхности озера находится буро-зеленый плавающий мат, температура которого на поверхности составляет 30-40°С (рис. 6а). В прогибах этого мата обнаруживается белесый налет, образованный в результате развития редко встречаемых бесцветных серобактерий Thiophysa sp (рис. 6ж). При температуре 49-47еС в протоке изливающегося из озера источника развивается двухслойный мат толщиной до 3 мм (Зона I). Верхний слой оливкового цвета, толщиной около 1 мм. Нижний слой темно-зеленого цвета, толщиной до 2 мм. В составе мата доминирует Phormidium valderie f. pseudovalderianum, в небольшом количестве представлены колониальные цианобактерии. Из проб микробных матов был выделен штамм аноксигенной фототрофной бактерии Chloroflexus aurantiacus.
При температуре 47-43°С развивается обширное поле микробных матов площадью до 40 м2 (Зона II). Толщина матов достигает 13 см. Поверхность мата покрыта небольшими пурпурными пятнами. Видовой состав микроорганизмов, формирующих пурпурные пятна, определить не удалось. Но при микроскопировании были обнаружены крупные (1.5*3 мкм) палочковидные бактерии неизвестной физиологии.
Из проб микробных матов был выделен штамм аноксигенной фототрофной бактерии Chloroflexus aurantiacus. В мате различается до 6 слоев (2000 год). В разных точках зоны и в различные годы может выделяться меньшее число слоев, но общие закономерности структуры мата остаются неизменными.
Первый слой (0-6 мм), темно-зеленого цвета. В верхнем слое мата доминирует Phormidium Woronichinii, редко встречаются Lyngbya aestuarii, единично Gloeocapsa minuta и Gloeocapsa minor. Часто Phormidium valderie f. Pseudovalderianum, Gloeocapsa punctata. и Oscillatoria sp. Много диатомовых водорослей. По объему биомассы в этом слое 80% составляет Phormidium Woronichinii, 10% Phormidium valderie f. pseudovalderianum, 5% Lyngbya aestuarii и 5% - диатомовые водоросли.
Второй слой (6-17 мм), зеленого цвета, с полостями. В составе мата доминирует Phormidium Woronichinii, часто встречается (до 20% биомассы) Phormidium valderie f. pseudovalderianum, единично Lyngbya aestuarii, Calothrix sp1, Gloeocapsa minor.
Третий слой (17-27 мм), темно-зеленого цвета. Видовой состав и соотношение между видами аналогично второму слою.
Четвертый слой (27-32 мм), темно-зеленого цвета. Доминирует Phormidium Woronichinii, его цвет становится интенсивнее, возрастает доля Phormidium valderie f. pseudovalderianum (до 30%). Обнаруживаются также Gloeocapsa minor, Calothrix sp1, Gloeocapsa punctata,. Gloeocapsa minima, редко Calothrix sp2, Lyngbya aestuarii.
Пятый слой (32-57 мм), светло-зеленого цвета. Видовой состав и соотношение между видами аналогично четвертому слою.
Шестой слой (57-67 мм), серая плотная масса, по нижней поверхности покрыта слоем серы. При микроскопировании серобактерии не обнаружены, но в большом количестве обнаруживаются палочковидные бактерии, размерами около 0.5*3 мкм, вероятно деструкторы. Под матом на глубине ниже 67 мм ил черного цвета.
Ниже по течению источника развивается обширное поле низкотемпературного (35-40°С) цианобактериального мата буро-зеленого цвета, по поверхности которого вырастают белесые скопления нитей серобактерий Thiothrix sp.
Таким образом, с уменьшением температуры в
Сеюйском сульфидсодержащем источнике состав фототрофного сообщества расширяется
и достигает максимального разнообразия при 47-43°C.
В этой зоне развивается цианобактериальный мат толщиной до 13 см. Во всех зонах
цианобактерии доминируют в составе микробного мата. Аноксигенные фототрофные
бактерии встречаются в меньшем количестве, чем цианобактерии. Особенностью
видового состава микробного сообщества источника является массовое развитие
бесцветных серобактерий Thiophysa
sp. и Thiothrix
sp.
Таблица 9. Фототрофные бактерии в биологических зонах Сеюйского источника
.3.2 Биогеохимическая активность
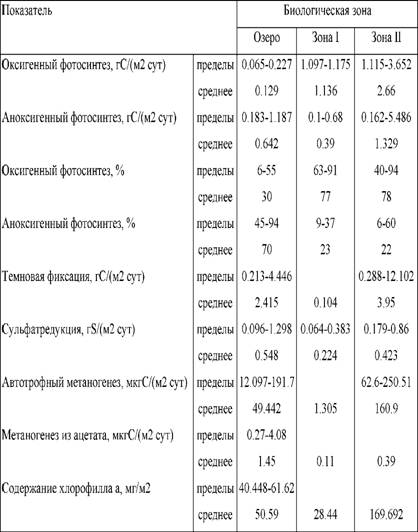
Исследование содержания пигментов и определение скоростей продукционно-деструкционных процессов в микробных матах источника было проведено в 2000 и 2002 годах (рис. 7, таб. 10). Анализ спектров in vivo микробных матов показывает, что в них доминирует хлорофилл а, что указывает на преобладание цианобактерий в составе мата. Максимальное содержание хлорофилла а обнаруживается в зоне II источника при температуре 45еС (169 мг/м2), при более высоких температурах обнаруживается 28-61 мг/м2.
Результаты экспериментов с использованием 14 С-бикарбоната показали, что с понижением температуры скорость фотосинтеза в матах постепенно возрастает. Доля оксигенного фотосинтеза увеличивается, а аноксигенного падает. В матах на дне озера скорость оксигенного фотосинтеза составляет 0.065-0.22 гС/м2 сут, скорость аноксигенного 0.18-1.18 гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 6 до 55%, доля аноксигенного от 45 до 94%. В зоне I скорость оксигенного фотосинтеза составляет 1.09-1.17 гС/м2 сут, аноксигенного 0.1-0.67гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 63 до 91%, доля аноксигенного от 9 до 37%. В зоне II скорость оксигенного фотосинтеза составляет от 1.1 до 3.65 гС/м2 сут, аноксигенного от 0.16 до 5.48 гС/м2 сут. Доля оксигенного фотосинтеза колеблется от 40 до 94%, доля аноксигенного от 6 до 60%.
Скорость темновой фиксации в матах на дне озера составляет 0.21-4.4 гС/м2 сут. С понижением температуры скорость темновой фиксации падает до 0.1 гС/м2 сут при 47 С в зоне I и снова возрастает достигая максимума при 45°С (12.1 гС/м2 сут). Наибольшая скорость темновой фиксации наблюдается в самом нижнем серосодержащем слое мата.
Скорость сульфатредукции в микробных матах по изливу источника была исследована с применением радиоактивного 35S - сульфата. В матах на дне озера происходит образование сероводорода за счет сульфатредукции со скоростью 0.096-1.29 tS/м2 сут. Процессы идут, видимо, за счет доноров электронов, поступающих с водой (Н2, органическое вещество). По изливу скорость сульфатредукции в микробных матах падает до 0.06-0.38 tS/м2 сут при 47°С и возрастает до 0.86 г S/м2 сут в зоне II.
Скорость водородного метаногенеза незначительна. В матах на дне озера достигает 17.2-191 мкгС/м2 сут, с понижением температуры возрастает до 250 мкгС/м2 сут в зоне II. Скорость ацетокластического метаногенеза незначительна. В матах на дне озера достигает 0.27-4.08 мкгС/м2 сут, в зоне II - 0.39 мкгС/м2 сут.
Таким образом, доминирующим процессом терминальной деструкции в микробных матах источника является сульфатредукция. Максимальная величина расхода органического вещества через сульфатредукцию составляет 0.97 гС/м2 сут, тогда как через метаногенез расходуется максимум 833 мкгС/м2 сут. По изливу с понижением температуры продуктивность систем резко возрастает. Как следствие, суммарная деструкция также ускоряется, хотя и не так быстро, как продукция органического вещества. В зоне II, где скорости продукционных процессов максимальны, через метаногенез и сульфатредукцию минерализуется до 30% органического вещества. Большая часть оставшегося органического вещества микробных матов, очевидно, минерализуется в процессах кислородного дыхания или захоранивается. Обращает на себя внимание значительное превышение деструкции над продукционными процессами в матах на дне озера, где расход органического вещества составляет до 129% от продукции. Как и в случае с Уринским источником этот дисбаланс может быть объяснен занижением скорости темновой фиксации при инкубировании пробы, тогда как процесс сульфатредукции продолжается за счет деструкции органического вещества.
Таким образом, в сульфидсодержащем Сеюйском
источнике наиболее продуктивными являются сообщества развивающиеся при
температуре 47-43°С (зона II).
В этой зоне обнаружена максимальная скорость оксигенного, аноксигенного
фотосинтеза и темновой фиксации углекислоты из всех исследованных нами
источников (3.65; 5.48; 12.1 гС/м2 сут соответственно). Высокая
скорость аноксигенного фотосинтеза при доминировании в составе мата
цианобактерий может быть объяснена использованием ими сульфида в качестве
донора электронов. Высокая интенсивность темновой фиксации может быть объяснена
деятельностью бесцветных серобактерий. Обращает на себя внимание относительно
низкое содержание хлорофилла а в цианобактериальных матах источниках на фоне
значительной толщины мата и высокой скорости оксигенного фотосинтеза (169 мг/м2).
Доминирующим процессом терминальной деструкции является сульфтредукция, роль
метаногенеза незначительна.
Таблица 10. Изменение некоторых микробиологических показателей по изливу Сеюйского источника
.4 Аллинский источник
.4.1 Распространение и видовой состав микробных сообществ в связи с изменением физико-химических условий среды
Нами был исследован источник, изливающийся
непосредственно в правую боковую протоку реки на каменистой отмели около
подножья террасы высотой в 15-20 м. Максимальная температура на выходе 70-79°С,
рН 9.0-9.9, содержание сульфида 12 мг/л. Минерализация 0.5 г/л.
Физико-химические параметры источника изливающегося на дне протоки, скорее
всего, определяются смешиванием термальных вод с речными водами (таб. 11).
Температура речной воды обычно составляет 2-7°С, рН речной воды 8.3.
Таблица 11. Физико-химические условия в биологических зонах Аллинского источника.
|
Биологическая зона |
Описание микробного мата |
Т, °С |
H2S, мг/л |
Eh |
рН |
|
Зона излива |
Обрастания отсутствуют |
<70-79 |
12 |
-185 |
9.3-9.9 |
|
Зона I |
Тонкий оливковый |
50-65 |
7.8 |
-60 |
9.2-9.9 |
|
Зона II |
Зеленый с пятнами серы |
45-24 |
2.6 |
-12 |
9.2-9.9 |
|
Зона III |
Космы Thiothrix |
35-20 |
|
20 |
9.2-9.7 |
|
Зона IV |
Темно-коричневые космы |
55 |
|
|
|
|
Зона V |
Желто-зеленый мат |
45 |
15.6 |
|
9.6 |
В зоне излива при температуре от 79-70°С до 65°С видимые микробные обрастания отсутствуют, дно покрыто песком и мелким гравием. Тем не менее при посевах проб песка из этой точки была выделена культура Chloroflexus aurantiacus.
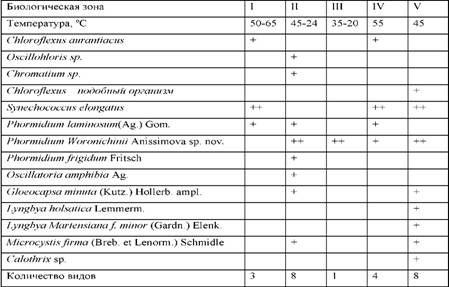
Микробные маты оливкового цвета начинаются при 65°С, толщина мата до 5 мм (Зона I). В 1999 году, когда уровень речных вод был минимальным и, вероятно, содержание сульфида в воде было максимальным, микробный мат в этой зоне состоял из одного слоя, в его составе доминировал Chloroflexus aurantiacus (рис. 8а,б, таб. 12). В остальные годы микробный мат не обнаруживался, либо состоял из двух слоев. В верхнем слое мата преобладают Chloroflexus aurantiacus, цианобактерии почти не наблюдаются. В нижнем слое мата доминирует Synechococcus elongatus, в меньшем количестве встречается Phormidium laminosum. При микроскопировании в пробах мата обнаруживаются диатомовые водоросли, вероятнее всего они были занесены течением реки. Из проб мата были выделены культуры Chloroflexus aurantiacus и Meiothermus ruber.
При температуре ниже 45°С развивается микробный мат зеленого цвета с толщиной до 2 см (Зона II). При 40°С в толще мата появляться хорошо различимый слой пурпурных бактерий. При температурах ниже 35°С поверхность мата покрывается белым слоем тионовых бактерий и элементной серы. Под ним находится зеленый слой цианобактерий, еще ниже пурпурный. В составе мата доминирует Phormidium Woronichinii, в меньшем количестве встречается аноксигенная фототрофная бактерия Oscillohloris sp., цианобактерии Phormidium laminosum, диатомеи и серная бактерия Thiothrix sp. Единично встречается цианобактерии Gloeocapsa minuta, Microcystis firma, Phormidium frigidum, Oscillatoria amphibia. В пурпурном слое в большом количестве встречается серная пурпурная бактерия Chromatium sp. Из проб мата были выделены культуры мезофильных аноксигенных фототрофных бактерий Heliobacterium sp., Chromatium sp., Thiocapsa sp., несерные пурпурные бактерии Rhodopseudomonas palustris и Rhodobacter sp., использующие сульфид и откладываюшие внеклеточную серу, и культуры сульфатредукторов.
При температуре ниже 35°С (Зона III) в русле протоки в виде длинных белых нитей, прикрепляющихся к камням, развивается обрастания серных бактерий Thiothrix sp., Beggiatoa sp. и цианобактерий Phormidium Woronichinii (рис. 8д).
Также был исследован источник изливающийся из склона правобережной террасы на высоте около 1.5 метров над уровнем протоки. Температура воды на выходе достигает 55°С, рН около 9.6, содержание сульфида около 15.6 мг/л (таб. 11).
При температуре 55°С развивается тонкий (толщина до 0.5 см) микробный мат темно-коричневого цвета (Зона IV). Мат литифицируется. В составе мата доминирует Synechococcus elongatus, в меньшем количестве встречается Chloroflexus aurantiacus и цианобактерии Phormidium Woronichinii, Phormidium laminosum.
На 30 см ниже зоны IV при температуре 45°С развивается микробный мат желто-зеленого цвета толщиной до 0.5 см (Зона V). В верхнем слое толщиной до 1 мм доминирует Chloroflexus - подобный организм, по способности к доминированию в аэробных условиях может быть близким к аноксигенной фототрофной бактерии Heliothrix oregonensis. В более глубоких слоях мата доминируют цианобактерии Phormidium Woronichinii и Synechococcus elongatus. Также в составе мата обнаружены цианобактерии Lyngbya holsatica, Gloeocapsa minuta, Calothrix sp., Lyngbya Martensiana f. minor, единично Microcystis firma, гетеротрофная бактерия Isosphaerapallida (рис. 8г).
Цианобактерии обнаруживаются в значительном
количестве, либо доминируют в микробных матах Аллинского источника. Но обращает
на себя внимание доминирование, либо массовое развитие термофильной АФБ Chloroflexus
aurantiacus в
высокотемпературной зоне источника. Также, обращает на себя внимание массовое
развитие пурпурных АФБ в мезофильной зоне источника с образованием визуально
различимого слоя в мате, и развитие Chloroflexus
- подобного организма в поверхностном слое мата развивающегося в зоне V. Столь
массовое развитие АФБ в исследованных нами источниках обнаружено только в
Аллинском источнике.
Таблица 12. Фототрофные бактерии в биологических зонах Аллинского источника
3.4.2 Биогеохимическая активность