Курсовая работа (т): Таксономическая группа слизевиков
Образованию спор и спорангиев предшествует
редукционное деление диплоидных ядер плазмодия. Гаплоидные споры, попав на
субстрат, прорастают в гаплоидные зооспоры с двумя гладкими жгутиками на
переднем конце. Зооспоры могут размножаться делением, затем теряют жгутики и
превращаются в гаплоидные миксоамебы, которые также могут размножаться
делением, затем эти миксоамебы попарно сливаются и образуется диплоидная
миксоамеба. У некоторых видов этот цикл укорочен и сливаются попарно зооспоры.
Диплоидная миксоамеба разрастается, число ядер в ней увеличивается за счет
митотических делений диплоидных ядер и таким образом вновь образуется
плазмодий, уходящий вглубь субстрата (рисунок 2) [2].
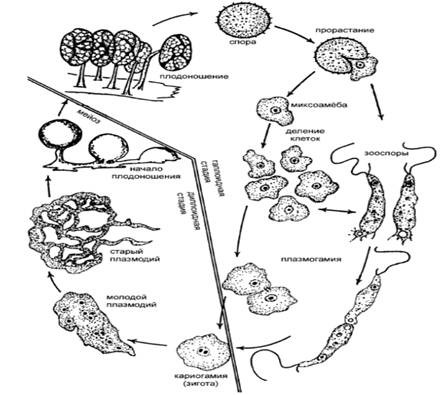
Рисунок 2- Цикл развития миксомицетов (Л. Г.
Переведенцева, 2012)
4.2.1 Типы спороношения
При переходе к расселительной стадии физаровые слизевики образуют плодовые тела - спорофоры. Они очень разнообразны, могут иметь различную форму, окраску и размеры. Выделяют четыре основных типа спорофоров:
• плазмодиокарпы;
• спорокарпы;
• эталии;
• псевдоэталии.
Плазмодиокарпы представляют собой сидячие плодовые тела неправильной формы. При их образовании плазмодий не претерпевает морфологических перестроек и лишь покрывается оболочкой (перидием). Встречаются у низших представителей лициевых, трихиевых и физариформных слизевиков.
Спорокарпы - дифференцированные споровместилища, состоящие из спороносной головки (спорангия), имеющей округлую, овальную, реже удлиненную форму. Часто спорангии расположены на ножке (стебельке), имеющей у различных групп неодинаковое строение. Иногда на одном стебельке располагается несколько спорангиев (Metatrichia). При образовании спорокарпов крупный плазмодий обычно дифференцируется на несколько зачатков, каждый из которых затем образует отдельное плодовое тело. Спорокарп - самый распространённый тип плодовых тел физаровых слизевиков. У протостелиевых и эхиностелиевых плодовые тела всегда являются спорокарпами, а у миксогастрид спорокарпы известны у представителей всех отрядов.
Эталий - группа спорокарпов, слившихся в единое крупное плодовое тело, покрытое общей оболочкой - кортексом. Обычно эталии не имеют стебелька. Встречаются нечасто, но известны во всех отрядах миксогастровых слизевиков.
Псевдоэталий представляет собой группу
спорокарпов, сросшихся боковыми стенками. Внешне псевдоэталий выглядит единым
плодовым телом, но при этом спорокарпы в нем не теряют индивидуальности, и
между отдельными споровместилищами сохраняются перегородки. Псевдоэталии обычно
не имеют общего покрова. Встречаются редко, среди лициевых и физариформных
слизевиков [3, 7, 9].
4.3 Распространение
Миксомицеты довольно обычны в наших лесах, но плохо заметны на стадии плазмодия. Как правило, обращают на себя внимание их спороношения, например ярко-розовые одиночные спорангии слизевика ликогала Lycogala, или группы узких коричневых спорангиев слизевика из рода стемонитис Stemonitis (рисунок 3).
Леокарпус Leocarpus имеет яркий желтый
плазмодий. Плазмодии леокарпуса можно часто увидеть, когда они выползают на
поверхность почвы. За короткое время плазмодий этого слизевика заползает на
невысокие предметы - мхи, травы, основания стволов деревьев, и образует группы
мелких блестящих коричневых спорангиев на коротких ножках. [3],
[4]
.
ОТДЕЛ ПЛАЗМОДИОФОРОВЫЕ (PLASMODIOPHOROMYCOTA)
Виды имеют внутриклеточный (паразитический)
плазмодий. Отличаются сложным циклом развития, включающим продолжительные по
времени гаплоидную и диплоидную стадии. Включает один класс Плазмодиофоромицеты
- Plasmodiophoromycetes [2].
5.1 Особенности
строения
Вегетативное тело в виде многоядерного
протопласта, не способного к самостоятельному движению и находящегося внутри
клетки растенияхозяина. Специальные спороношения не образуются. Зимующая стадия
представлена спорами, образующимися при распаде внутриклеточного плазмодия. При
наступлении благоприятных условий споры прорастают двужгутиковыми зооспорами.
Жгутики гладкие, прикреплены к переднему концу, один из них длинный, другой - короткий.
Пораженные ткани разрастаются и формируют наросты неправильной формы на
подземных органах растений [7].
5.2 Цикл развития
Жизненный цикл плазмодиофорид характеризуется наличием двух трофических и двух расселительных стадий. Первые трофическая и расселительная стадии составляют спорогенную фазу жизненного цикла, а вторые трофическая и расселительная стадии - цистогенную фазу. В ходе спорогенной фазы происходит лишь бесполое размножение, а на цистогенной фазе осуществляется половой процесс в виде изогамии [3].
Оказавшиеся в почве споры прорастают, образуя
двужгутиковые зооспоры, которые теряют жгутики и превращаются в гаплоидные
миксоамёбы. Такие миксамебы живут в почве, затем проникают в корневой волосок,
и разрастаясь, образуют первичный гаплоидный плазмодий. Он не проникает глубоко
в ткани корня и не образует опухолей. Затем он выходит из корневых волосков и
формирует гаплоидные зооспоры (которые можно трактовать как гаметы), попарно
копулирующие и образующие сначала двуядерную, а затем, после слияния ядер,
диплоидную зооспору, которая теряет жгутики и превращается в диплоидную
миксоамебу. Последняя заражает клетки корня и разрастается в нем в диплоидный
вторичный плазмодий. После периода вегетативного роста и мейотического деления
ядер вторичный плазмодий распадается на гаплоидные споры (рисунок 4). Именно
вторичные миксамебы способны вызвать заражение [2,
5].
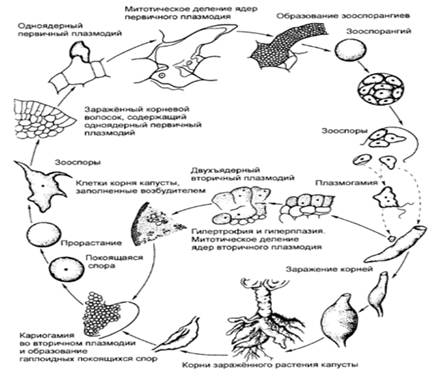
Рисунок 4 - Цикл развития Plasmodiophora brassicae
(Л. Г. Переведенцева, 2012)
5.3 Распространение
Плазмодиофориды - облигатные внутриклеточные
паразиты зеленых растений (включая зеленые водоросли и сосудистые растения) и
гетероконтных протистов (оомицетов и желтозеленых водорослей). Средой для
распространения плазмодиофорид служит вода. Поэтому они паразитируют либо на
водных организмах, либо, используя почвенную влагу, проникают в подземные, а
через них - и в надземные органы высших растений. Распространение
плазмодиофорид по Земному шару изучено недостаточно. Известно лишь, что многие
виды являются космополитами. [3]
5.4 Плазмодиофоромицеты
как возбудители заболеваний культурных растений
Поражая некоторые культурные растения
(картофель, томаты, капусту) плазмодиофориды наносят значительный вред
сельскому хозяйству. Пораженные ткани, как правило, подвергаются гипертрофии, в
результате чего образуются опухоли и пустулы [3].
5.4.1 Plasmodiophora brassicae Woronin
Этот организм является возбудителем опасного заболевания крестоцветных, известного под названием кила. Зараженные растения вырастают слабыми и не образуют кочанов. Их корни покрыты бесформенными наростами, в которых имеются мертвые клетки капусты с плазмодиями паразита и активно делящиеся живые клетки, вызывающие разрастания корней (рисунок 5).
Гриб проникает в растения через корневые
волоски. Развитию этого заболевания способствуют температура почвы 18-24°С,
влажность 75-90%, кислотность почвы (рН 5,6-6,5). Часто возбудитель болезни
заносится в поле с рассадой, т.к. поражённые килой растения по внешнему виду
ничем не отличаются от здоровых. В почве споры сохраняют жизнеспособность 4-6
лет и более [8].
5.4.2 Spongospora subterranea (Wallr.) Lagerheim
Этот слизевик является возбудителем порошистой парши клубней картофеля. Многоядерные плазмодии спонгоспоры развиваются в периферических клетках клубня. Затем плазмодий распадается на споры, плотно склеивающиеся в губчатые комочки. Пораженный клубень покрыт язвочками с коричневым порошистым содержимым, представленным скоплением этих комочков (рисунок 6). Цикл развития похож на цикл развития Plasmodiophora brassicae. Иногда поражаются стебли и столоны. Кроме картофеля, поражаются томаты и другие растения семейства пасленовые [7].
Порошистая парша является широко распространённым заболеванием клубней, которое может причинять существенный ущерб, в т. ч. снижение товарных качеств клубней и их лёжкости в период хранения, поскольку через язвы, вызванные паршой, проникают возбудители различных гнилей - грибов и бактерий [11].
Оптимальные условия для развития заболевания: Высокая влажность почвы (70% ППВ), температура 12-18°С, слабокислая реакция среды. Патоген чаще встречается на тяжёлых и сырых почвах, где сохраняется до 5 лет.
Источники инфекции: заражённые клубни, почва,
навоз [12].
. ОТДЕЛ ДИКТИОСТЕЛИДЫ (DICTYOSTELIOMYCOTA)
6.1 Особенности строения
6.2 Цикл развития
Цикл развития включает в себя бесполый и половой процесс (рисунок 7). При переходе к бесполому размножению вегетативные клетки сползаются в группу, не теряя своей обособленности - образуется псевдоплазмодий. В пределах псевдоплазмодия клеточных делений уже не происходит. Псевдоплазмодий двигается, выползая на более открытое место. Здесь отдельные амебы в пределах псевдоплазмодия начинают заползать друг на друга в строгой последовательности, образуя «ножку», и «головку» - спорокарп. Спорокарп напоминает спорангий, однако в отличие от настоящего спорангия, каждая клетка спорокарпа, как и ножки, представляет собой отдельный организм. Амебы в середине спорокарпа округляются и одеваются плотной оболочкой, превращаясь в споры. Спорокарп вскрывается, и споры рассеиваются [5].
В условиях, неблагоприятных для образования
плодовых тел (повышенная влажность, темнота, измененный состав среды и др.),
некоторые виды диктиостелид способны к половому процессу и образованию
диплоидной зиготы. В ходе полового процесса, миксамебы попарно сливаются, в
результате чего образуются двуядерные клетки. Параллельно с этим происходит
сначала набухание, а затем и слияние обоих ядер, в результате чего образуется
диплоидное ядро. Клетка, в которой произошло слияние ядер, называется зиготой
или гигантской клеткой. Показано, что одноядерные амебоидные особи, участвующие
в половом процессе, представляют собой специализированные гаметы, и
соответственно, половой процесс диктиостелид можно считать изогамией.
Сформировавшиеся гигантские клетки начинают привлекать к себе гаплоидных
миксамеб, выступая, фактически, в роли центров агрегации. У миксамёб D.
discoideum агрегация связана с положительным хемотаксисом к цАМФ (рисунок 8). В
результате образуется плотный агрегат, в центре которого расположена гигантская
клетка, а на периферии - гаплоидные амебы, служащие, впоследствии для питания
зиготы. Вокруг агрегата образуется так называемая первичная оболочка. Окружение
многоклеточного агрегата оболочкой знаменует его превращение в молодую
макроцисту. После образования первичной оболочки гигантская клетка приступает к
фагоцитозу окружающих ее амебоидных особей, а после окружается целлюлозной
вторичной оболочкой. Во время формирования вторичной оболочки диплоидное ядро
макроцисты делится мейозом с образованием четырех гаплоидных ядер. После этого
макроциста окружается третичной оболочкой и претерпевает множественные деления
ядер. Зрелая многоядерная макроциста, окруженная трехслойной обоблочкой,
вступает в период покоя.
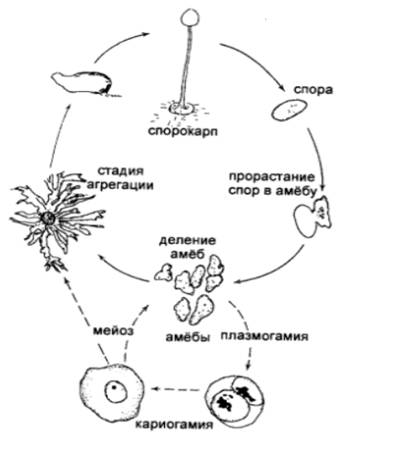
Рисунок 7 - Цикл развития диктиостелид (Л. В. Гарибова
и др., 2005)
В процессе прорастания цитоплазма макроцисты
сперва распадается на крупные одноядерные клетки, называемые проамебами.
Последние многократно делятся, образуя трофические амебоидные особи нормального
размера [2 , 3].
6.3 Распространение
Диктиостелиды - сапротрофы, обитающие в листовой подстилке, на почве, мертвых частях растений, разлагающихся плодовых телах грибов или навозе, а также в ризосфере многих растений. Распространены они повсеместно, но из-за микроскопических размеров, утончённого строения и эфемерности плодовых тел плохо сохраняются в коллекциях и редко привлекают внимание специалистов.
Наибольшее число диктиостелиевых слизевиков
обитает в листовой подстилке и почвах листопадных лесов в зоне умеренного
климата. Среди них наиболее часто встречается Dictyostelium mucoroides.
Основным фактором влияющим на встречаемость и распространение диктиостелид
служит наличие пищевых ресурсов в виде почвенных бактерий, составляющих основу
их пищевого рациона. Впрочем, известны виды, способные поглощать не только
бактерий, но и миксамеб других слизевиков, нападая даже на клетки более
крупные, чем они сами, и поглощая их фрагменты. Миксамебы Dictyostelium
сaveatum способны привлекать с помощью аттрактантов клетки других видов и
поедать их. Нередки и случаи каннибализма [3].
6.4 Значение
Диктиостелиды легко культивируются на бактериях
в агаровых средах. Кроме того, ряд видов (например Polysphondilium pallidum и
Dictyostelium discoideum) удается культивировать в питательных средах, лишенных
бактерий. Диктиостелиды используются в качестве модельных объектов при изучении
таксисов, межклеточных взаимодействий, возникновения гетерокариона и других
вопросов клеточной биологии [16].
.ОТДЕЛ АКРАЗИЕВЫЕ СЛИЗЕВИКИ
7.1 Особенности
строения
Трофическая стадия жизненного цикла акразид
представлена амебоидными клетками (миксамебами). Это одиночные клетки овальной
формы, изредка образующие дольчатые псевдоподии, более широкие, чем у
диктиостелид. Передний край миксамебы содержит прозрачную цитоплазму, лишенную
включений - гиалоплазму, а задний конец представлен уроидной зоной - концевой
лопастью, которая содержит выделительные вакуоли. жгутиконосные клетки известны
не у всех видов. Миксамебы способны образовывать неподвижный псевдоплазмодий.
Псевдоплазмодий формирует плодовые тела - сорокарпы, в которых происходит
экзогенное спорообразование. Сорокарпы состоят либо из шаровидных спороносных
головок, либо из ветвящихся цепочек спор; при этом они могут быть стебельчатыми
или сидячими. При созревании, сорокарп полностью распадается на споры. Стенки
спор содержат целлюлозу. Споры прорастают новыми миксамёбами или жгутиконосными
клетками. Жизненный цикл проходит в гаплофазе. Половой процесс не обнаружен
[2].
7.2 Цикл развития
Трофическая стадия: миксамебы передвигаются по субстрату, питаясь бактериями, простейшими и миксамебами слизевиков, включая представителей своего вида. Их образ жизни мало отличается от такового у других свободноживущих слизевиков. В процессе вегетации, трофические клетки акразид активно делятся путем митоза. При исчерпании запасов пищи, наступлении неблагоприятных условий среды, или достижении «критической плотности» трофических клеток, они приступают к образованию псевдоплазмодия путем агрегации.
В результате агрегации миксамебы образуют псевдоплазмодий. В отличие от диктиостелид, псевдоплазмодий акразид не способен передвигаться как единый организм, и поэтому сохраняет неподвижность. Неподвижность псевдоплазмодиев свидетельствует о том, что у этих слизевиков не выработаны механизмы согласованного движения клеток, свойственные диктиостелидам. Псевдоплазмодии акразид не способны к фаготрофному питанию, и являются кратковременной структурой, переходной между трофической и расселительной стадиями.
Расселительная стадия: вскоре после своего формирования,
псевдоплазмодий начинает приподниматься над субстратом, приобретая
полусферическую форму. На стадии формирования плодового тела псевдоплазмодий
называют сорогеном. Иногда один псевдоплазмодий образует несколько сорогенов. У
некоторых видов (Copromyxa) полусферический сороген не меняя формы превращается
в примитивное плодовое тело - сорус. У других акразид сороген развивается в
более дифференцированное плодовое тело - сорокарп. При этом миксамебы,
сосредоточенные в верхней части сорогена, образуют сферический спороносный
отдел, а клетки основания сорогена формируют цилиндрическую ножку. У
большинства видов развитие прекращается на этом этапе, и сороген становится
зрелым сорокарпом. Спороносный отдел при этом остается сферическим, и образует
головку, состоящую из большого числа округлых спор. Ножка также сохраняет
первоначальную цилиндрическую форму. У представителей рода Acrasis, развитие
плодового тела не прекращается на этапе сферической головки. Напротив,
спороносный участок сорогена начинает формировать лопасти, направленные
радиально от его центра. Постепенно лопасти становятся все тоньше и длиннее, и
начинают дихотомически ветвиться. Ветвление происходит до тех пор, пока не
образуются ветви толщиной в одну клетку - цепочки спор, напоминающие бусы. В
результате образуется древовидный сорокарп. Степень его разветвленности зависит
от числа клеток, составлявших псевдоплазмодий (рисунок 9) .