Материал: zadachi_vse
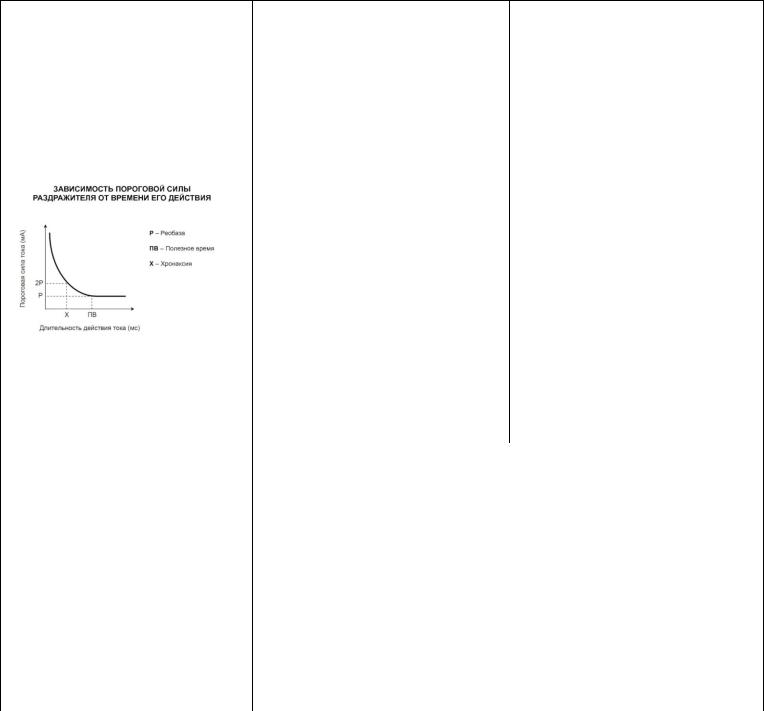
ТЕМА 2 |
Задача 2 Лабильность нервного волокна А – 900 |
Задача 3 В эксперименте на двух нервных волокнах (№1 |
|
Задача 1 В эксперименте для характеристики |
импульсов/с, волокна В – 300 импульсов/с. Объясните, |
и №2) расстояние между раздражающими и |
|
возбудимости тканей учитывают пороговую силу |
одинакова ли продолжительность ПД указанный |
отводящими электродами составляло 10 см. Потенциал |
|
раздражителя и время действия раздражителя на |
нервных волокон? |
действия (ПД) волокна №1 зарегистрирован через 1 мс |
|
ткань. Известно, что одна реобаза составляет 10 мВ, |
1. Лабильность 900 импульсов в секунду означает, что |
после раздражения, ПД волокна №2 – через 100 мс. |
|
полезное время -2 с. Используя эти данные, постройте |
нервное волокно способно воспроизводить 900 потенциалов |
1. |
На основании скорости распределения возбуждения. |
график зависимости минимального времени действия |
действия в единицу времени (в секунду) в соответствии с |
2. |
Расстояние между раздражающими и отводящими |
тока (ось абсцисс) от его величины (ось ординат). |
ритмом действующих раздражителей. |
электр. -10 см, ПД на волокне №1 – зарегистрирован через |
|
1. Реобазаэто минимальная сила тока, вызыв. |
Мера лабильностимаксимально кол-во циклов |
1 мс, на №2- через 100 мс. Скорость распределения |
|
возбуждение. |
возбуждения, которое способно воспроизвести нервное |
возбуждения для волокна №1 10см:1мс=100м\с, для №2 |
|
Хронаксияминимальное время действия раздражающего |
волокно в единицу времени без трансформации ритма |
10см:100мс=1 м\с. |
|
импульса силой в 2 реобазы необходимой для |
раздражителя. |
3. |
Волокно №1-А, №2-С. |
возникновения ПД (потенциал действия) |
2. Лабильность определяется длительностью пика ПД, то |
4. |
Частота ПД зарегистрированная при выс.частоте |
Полезное время -это минимальное время действия |
есть фазой абсолютной рефрактерность. Большая |
раздражения для волокна №1 больше, чем для волокна №2. |
|
раздражителя силой в одну реобазу за которое возникает |
длительность фазы абсолютной рефрактерности означает, |
5. |
Волокно №1 способно генерировать потенциалы |
возбуждение. |
что часть стимулов попадает в эту фазу и не вызывает ПД. |
действия с большей частотой чем волокно № 2. Это связано |
|
2. |
Чем меньше длительность пика ПД (а соотв. и фазы |
с тем, что продол. потенциала действия для №1 меньше, |
|
|
абсолютной рефрактерности) тем больше потенциалов |
чем №2 .Значит у №1 лабильность больше. |
|
|
действия в единицу времни может воспроизвести волокно, а |
|
|
|
соответственно лабильность выше. |
|
|
|
3. Продолжительность ПД для волокна А меньше чем |
|
|
|
продолжительность ПД волокна В. (Лабильность нервного |
|
|
|
волокна А-900 импульсов\с, В-300 импульсов/с) |
|
|
Х=2Р=2*10 мВ=20 мВ |
|
|
3. Чем больше хронаксия, тем меньше возбудимость. |
|
|
4. Даже сильные раздражители, но малой длительности, не |
|
|
способные вызывать возбуждение. Так же как и слабые |
|
|
подпороговые раздражители не вызывают возбуждение |
|
|
при длительном воздействии. |
|
|
|
|
|
ТЕМА 3 |
Задача 2 |
Задача 3 |
Задача 1 |
Задачей эксперимента на двух мышцах (А и Б) являлось |
Изолированные икроножные мышцы одной и той же |
В эксперименте на двух мышцах (А и Б) отдельное |
получение суммарного мышечного сокращения. |
лягушки раздражали с частотой 8 стимулов/с. Одна из мышц |
мышечное волокно раздражали внутриклеточно над |
Предварительно было установлено, что длительность |
была предварительно утомлена, остальные условия |
пороговым током. Было установлено, что на мышце А |
периода укорочения мышцы А – 50 мс, мышцы Б – 500 мс. |
проведения эксперимента были одинаковыми. Оказалось, |
регистрировались ПД не только раздражаемого волокна, |
1.Для получения слитного суммарного сокращения |
что сокращения одной из мышц были одиночными, другая |
но и других мышечных волокон; на мышце Б были |
мышцы А и Б необходимо их раздражать с высокой |
отвечала суммарными сокращениями. |
обнаружены ПД только непосредственно раздражаемого |
частотой. |
1. Неутомленная мышца отвечала на раздражения |
волокна. |
2.Для возникновения суммации необходимо, чтобы |
одиночными, а утомленная – суммарными сокращениями. |
1. Между клетками волокон существует система |
интервал между раздражением имел определенную |
2. Неутомленная мышца не может в данных условиях |
межклеточных контактов(нексусы), через которые |
длительность: он должен быть длиннее рефрактерного |
отвечать на раздражение суммарным сокращением, ведь |
распространяется ПД. |
периода, иначе на второе раздражение не будет ответа, и |
осуществляется воздействие на мышцу раздражений с |
2. А – гладкая висцеральная мышца(унитарная), Б – |
короче всей длительности сократительного ответа, чтобы |
большим интервалом, при котором всякое следующее |
скелетная |
второе раздражение подействовало на мышцу раньше, чем |
раздражение попадает в период после окончания фазы |
3. В гладкой мышце нет концевых пластиной и отдельных |
она успеет расслабиться после первого раздражения. |
расслабления. |
нервных окончаний, по всей длине разветвлений адрен- и |
Причем для возникновения слитного суммированного |
3. Утомленная мышца может в данных условиях отвечать на |
холинэргических нейронов имеются варикозные |
сокращения раздражение должно приходиться в фазу |
раздражение суммарным сокращением. При утомлении |
утолщения, содержацие гранулы медиатора. Поэтому по |
укорочения. |
нарастает латентный период сокращения и удлиняется |
ходу следования нервного волокна могут возбуждаться |
3.Слитное сокращение мышцы А и мышцы Б – гладкий |
период расслабления мышцы, следовательно, последующие |
многие гладкомышечные клетки, а клетки не имеющие |
тетанус. |
сокращения могут попадать в фазу расслабления, вызывая |
контакта с варикозами возбуждаются посредством ПД, |
4.Мышца А относится к медленным красным, Б – к |
суммарное сокращение. |
распространяющегося на них через нексусы. |
быстрым белым. |
4. Вывод: неутомленная мышца отвечала на раздражения |
4. В скелетной мышце нет связей между отдельными |
5.Продолжительность суммарного сокращение мышцы А |
одиночными, а утомленная – суммарными сокращениями. |
мышечными волокнами, поэтому пд не распространяется |
будет большей, нежели мышцы Б, т.к. медленные |
|
на соседние волокна. |
мышечные волокна обладают большей выносливостью, |
|
|
чем быстрые. |
|
ТЕМА 1 |
|
|
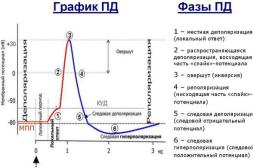
Задача 2 Представьте схему развития ПД и соответствующими |
|
Задача 3 Известно, что фермент мембранная АТФ-аза |
|||||||
Задача 11 Нервное волокно поместили в раствор, в |
|
|
цифрами обозначьте на ней следующие компоненты. |
|
с внутренней стороны мембраны активируется |
|||||||
котором содержание отдельных ионов |
|
|
Обозначьте изменение ионной проницаемости клеточной |
|
ионами Na+, с внешней – ионами К+. Объясните |
|||||||
соответствовало их содержанию в тканевой жидкости. |
|
мембраны в разные фазы ПД. |
|
|
|
почему при возбуждении усиливается работа |
||||||
В этих условиях (контрольное исследование) был |
|
|
|
|
|
|
|
|
натриевого насоса. |
|||
измерен мембранный потенциал (МП) нервного |
|
|
|
|
|
|
|
|
|
|
|
|
волокна. Затем измерение МП повторяли при |
|
|
|
|
|
|
|
|
1. АТФ-аза обесп. перенос 3 ионов Na из клетки в обмен |
|||
постепенном увеличении концентрации К+ в растворе |
|
|
|
|
|
|
|
на 2 иона К в клетку. |
||||
до 50 раз по сравнению с исходной концентрацией. |
|
|
|
|
|
|
|
|
2. Насос обесп. поддержание МП клеточного объема, |
|||
Каковы результаты измерения МП по мере |
|
|
|
|
|
|
|
|
обменных процессов клетки. Работа насоса – активный |
|||
увеличения концентрации К+ в растворе? |
|
|
|
|
|
|
|
|
транспорт, т.к. он происх. с испол. энергии против |
|||
|
|
|
|
|
|
|
|
|
|
градиента концентрации. |
||
1. |
|
|
|
|
|
|
|
|
|
3. Связь АТФ-азы и работы насоса: сам белок мембраны |
||
|
|
|
|
|
|
|
|
|
|
явл. АТФ-азой, только благодаря которой при гидролизе |
||
|
|
|
|
|
|
|
|
|
|
АТФ и присоединении фосфатной группы к белку- |
||
|
|
|
|
|
|
|
|
|
|
переносчику, может осущ. присоед. ионов и их перенос. |
||
|
|
|
|
|
|
|
|
|
|
4. При возбуждении (генерации ПД) роль насоса состоит |
||
2. Величина МПП для нерв. волокна приб. -50- -80 мВ. |
|
|
|
|
|
|
|
|
в выкачивании ионов Na из клетки- в восстановлении |
|||
3. При увеличю. концентрации К во внешней среде |
|
|
|
|
|
|
|
|
МПП. |
|||
градиент концентрации К уменьшается, что приводит к |
|
|
|
|
|
|
|
|
5. Работа насоса: |
|||
ослаблению диффузного тока его из клетки и |
|
|
|
|
|
|
|
|
1) с внутр. стороны мембраны к молекуле белка- |
|||
уменьшению МПП. |
|
|
|
|
|
|
|
|
переносчика поступают АТФ и ионы Na , а снаружи К |
|||
4. При увел. Концентрации К в 50 раз вне вне клетки ( с |
|
|
|
|
|
|
|
|
2) молекула переносчика осущ. Гидролиз одной |
|||
учетом того, что в клетке его(в норме) в 40 раз больше, |
|
|
|
|
|
|
|
|
молекулы АТФ |
|||
чем вне ее) МПП исчезает. |
|
|
|
|
|
|
|
|
3) при участии трех ионов Na за счет энергии АТФ к |
|||
|
|
|
|
|
|
|
|
|
|
переносчику присоед. остаток фосфорной кислоты; сами |
||
|
|
|
|
|
|
|
|
|
|
эти 3 иона Na присоед. к переносчику. |
||
|
|
|
|
|
|
|
|
|
|
4) в результате присоед. остатка фосфорной кислоты |
||
|
|
|
|
|
|
|
|
|
|
происх. такое изменения формы молекулы переносчика, |
||
|
|
|
|
|
|
|
|
|
|
что ионы Na оказываются вне клетки. |
||
|
|
|
|
|
|
|
|
|
|
5) 3 иона Na выделяются во внеш.среду, а вместо них с |
||
|
|
|
|
|
|
|
|
|
|
фосфолированным переносчиком соед.2 иона К |
||
|
|
|
|
|
|
|
|
|
|
6) присоед.2-х ионов К вызывает отдачу им остатка |
||
|
|
|
|
|
|
|
|
|
|
фосфорной кислоты |
||
|
|
|
|
|
|
|
|
|
|
7) десфолирование выхывает, что ионы К оказываются |
||
|
|
|
|
|
|
|
|
|
|
внутри клетки |
||
|
|
|
|
|
|
|
|
|
|
8) ионы К высвобожлают внутри клетки и весь процесс |
||
|
|
|
|
|
|
|
|
|
|
повторяется |
||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||
ТЕМА 4 Задача 1 Хорошо известно, что человек |
|
Задача 2 С помощью микроэлектродной техники в эксперименте на |
|
|
Задача 3 В эксперименте на лягушке изучали |
|||||||
носит на себе одежду, практически не замечая её. |
|
животном при раздражении отдельных участков волокон разных |
|
|
|
реакцию мышечных групп на раздражители |
||||||
Отчётливые ощущения возникают только в |
|
групп изучали их свойства. Какие особенности были при этом |
|
|
|
различного характера. Вызывался |
||||||
момент надевания и в момент снимания одежды. |
|
обнаружены? |
|
|
|
|
|
|
сухожильный рефлекс и реакция конечности на |
|||
Объясните физиологический механизм этого |
|
1. Миелиновые волокна 12-20 мкм |
|
|
|
|
|
болевой раздражитель. |
||||
явления. |
|
Безмиелиновые 0.2-1.5 мкм |
|
|
|
|
|
|
1. Моносинаптический рефлекс |
|||
1. Это явление называется адаптацией рецепторов. |
|
По классификации Эрлангера-Гассера |
|
|
|
|
|
|
||||
В основе механизма развития адаптации |
|
Типволокна |
Диаметр |
Ф-ция |
Миелинов.оболочка |
|
|
|||||
большинства рецепторов лежит изменение |
|
|
|
|
мкм |
|
|
|
|
|
|
|
проницаемости мембраны, благодаря чему |
|
Аа |
|
12-22 |
Проприорецепция |
+ |
|
|
|
|
|
|
пороговый ур-нь деполяризации либо отодвигается |
|
|
|
|
|
|
|
|
|
|
|
|
дальше, либо становится ближе к ур-ню |
|
Ав |
|
8-12 |
Тактильная |
+ |
|
|
|
|
|
|
мембранного потенциала, пониж. амплитуды РП, |
|
Ау |
|
4-8 |
Двигательная |
+ |
|
|
|
|
|
|
повыш. возбудимости. Бывают |
|
|
|
|
|
|
|
|||||
|
Аб |
|
1-4 |
Болевая+тактильная |
+ |
|
|
|
|
|
||
быстроадаптирующиеся (фазные), |
|
|
|
|
|
|
|
|||||
|
В |
|
1-3.5 |
Пригангл, |
+/- |
|
|
|
|
|
||
медленноадаптирующиеся (тонические), |
|
|
|
|
|
|
|
|||||
|
|
|
|
|
вегет.волокна |
|
|
|
|
|
|
|
промежуточные (фазнотонические) |
|
|
|
|
|
|
|
|
|
|
|
|
|
С |
|
0.5-2.0 |
Симпатич.ф-ция |
- |
|
|
|
|
|
||
2. Фазные рецепторы |
|
|
|
|
|
|
|
|||||
|
3. Афферентные – миелиновые, Аа, Ав, Ау, Аб, В. |
|
|
|
|
|
|
|||||
3. Ответственны механорецепторы. В основном |
|
|
|
|
|
|
|
|||||
|
Эфферентные – безмиелиновые – С. |
|
|
|
|
|
|
|||||
представлены тельцами Мейснера, обеспеч. |
|
|
|
|
|
|
|
|||||
|
4. В миелиновых ПД короче (=0,2-1)-длительность пика |
|
|
|
|
|||||||
временные снижения чувств. Быстро-адаптир. |
|
|
|
|
|
|||||||
|
В безмиелиновых ПД дальше (2мс)-длит.пика |
|
|
|
|
|
|
|||||
рецепторы (БА рецепторы). Тельца Пачини при |
|
|
|
|
|
|
|
|||||
|
Чем меньше миелиновых волокон, тем короче скорость проведения |
|
|
|
|
|||||||
адаптации перестают передавать сигналы. |
|
|
|
|
|
|||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
4. Рецепторы прикосновений – фазные рецепторы, |
|
|
|
|
|
|
|
|
|
|
|
|
они возбуждаются только в момент прикосновения |
|
|
|
|
|
|
|
|
|
|
|
|
и удаления раздражителя. Т.е. они адаптируются во |
|
|
|
|
|
|
|
|
|
|
|
2. Время рефлекса полисинаптической дуги |
время умеренного длительного воздействия. |
|
|
|
|
|
|
|
|
|
|
|
зависит от интенсивности стимуляции: чем |
5. Тоническая адаптация – температура |
|
|
|
|
|
|
|
|
|
|
|
сильнее, тем раньше активируется эффектор. |
|
|
|
|
|
|
|
|
|
|
|
|
Центр время рефлекса – моно -1.5-2 мс; - поли - |
|
|
|
|
|
|
|
|
|
|
|
|
более 3 мс |
|
|
|
|
|
|
|
|
|
|
|
|
3. Лабильность- Св-во нервн. центров. Это время, в |
|
|
|
|
|
|
|
|
|
|
|
|
течении которого восст. работоспособность |
|
|
|
|
|
|
|
|
|
|
|
|
очередного возбужд. В нервном центре |
|
|
|
|
|
|
|
|
|
|
|
|
лабильность мала из-за множества |
|
|
|
|
|
|
|
|
|
|
|
|
высоколабильных нервн. волокон с большим |
|
|
|
|
|
|
|
|
|
|
|
|
количеством стимулов |
|
|
|
|
|
|
|
|
|
|
|
|
4. В нервном волокне лабильность больше, чем у |
|
|
|
|
|
|
|
|
|
|
|
|
нервн. центра. |
|
|
|
|
|
|
|||||||
ТЕМА 5 Задача 1 Явление центрального торможения |
|
|
Задача 2В ходе эксперимента под кожу на спине |
|
Задача 3 В ходе эксперимента опустили кончик пальцев |
|||||||
обнаружено И.М. Сеченовым в эксперименте на |
|
|
лягушки было введено 0.2- 0.3 мл 0.1% раствора |
|
ступни задней лапки лягушки (при этом соблюдали |
|||||||
лягушке, в холе которого головной мозг перерезали, и |
стрихнина в разведении 1:1. Затем её поместили под |
|
маленькую площадь рецептивного поля) в 0.3% |
|||||||||
на обнажившуюся таламическую область накладывали |
стеклянный колпак. Через 10 минут нанесли |
|
раствор серной кислоты. Затем, отмыв водой лапку, |
|||||||||
кристаллик поваренной соли. После этого наносилось |
раздражение путем постукивания по колпаку. |
|
повторили опыт, опуская в этот раствор всю ступню |
|||||||||
болевое раздражение на лапку лягушки. Что наблюдал |
1. Стрихнин оказывает блокирующее действие на |
|
задней лапки лягушки (большая площадь рецептивного |
|||||||||
И.М. Сеченов в этом эксперименте? |
|
|
глицинергические синапсы. |
|
|
поля). |
||||||
1. У нее наблюдается болевой рефлекс. |
|
|
2. Резко повыш. возбудимость нервных центров. Самые |
|
1. Сгибательный рефлекс. |
|||||||
2. Через 5 мин. после перерезки мозга реакция лягушки не |
слабые раздражители могут вызвать сильнейшие |
|
2. Сила рефлекса во 2-ом опыте была больше, чем в 1-ом, |
|||||||||
изменилась, т.к рефлекторная дуга не задета. |
|
|
возбуждения. Через незначительное время набл. |
|
т.к площадь рецепторного поля во 2-ом опыте была |
|||||||
3. Увеличилось время рефлекса после накладывания |
|
|
судорожный период при малейшем раздражении все |
|
больше, чем в 1-ом. |
|||||||
кристаллика поваренной соли на таламус, т.к увеличение |
мышцы будут напрягаться |
|
|
3. Изменения свидетельствуют о иррадиации возбуждения. |
||||||||
Cl усиливает тормозной постсинаптический потенциал |
|
|
3. Иррадиация возбуждения – процесс распространения |
|
4. При активации мотонейронов противоположной стороны |
|||||||
(ТПСП). |
|
|
возбуждения от одного нейрона на множество др. нейронов |
|
тела наблюдается не сгибание, а разгибание мышц задней |
|||||||
4. После устранения кристаллика поваренной соли и |
|
|
4. Структура торможения в обеспечении иррадиации |
|
конечности – перекрестный разгибательный рефлекс. |
|||||||
промывания мозга время рефлекса стало прежним |
|
|
обеспечивает упорядоченность торможения, |
|
|
5. |
|
|
|
|||
5. Наличие тормозных нейронов обусловило описанные |
|
|
согласованность взаимодействия центров |
|
|
|
|
|
|
|||
выше реакции (в таламусе). Медиаторы торможения |
|
|
|
|
|
|
|
|
|
|
|
|
ГАМК, глицин, катехоламины и т.д. Механизмы |
|
|
|
|
|
|
|
|
|
|
|
|
функционирования: пресинаптическое торможение и |
|
|
|
|
|
|
|
|
|
|
|
|
постсинаптическое торможение. |
|
|
|
|
|
|
|
|
|
|
|
|
ТЕМА 6 Задача 1 В офтальмологическом |
Задача 2 При обследовании состояния спортсмена |
Задача 3 Студент случайно прикоснулся пальцами к горячему утюгу |
||||
кабинете пациенту закапали в глаза раствор |
непосредственно перед началом соревнования у |
и отдернул руку (соматическая реакция). Через некоторое время |
||||
атропина. При этом у него расширились зрачки. |
него было отмечено изменение ряда |
пальцы покраснели(вегетативная реакция). Чем обусловлена более |
||||
Влияние какого отдела вегетативной нервной |
вегетативных показателей: повышение |
медленная реакция нейронов рефлекторных дуг вегетативной |
||||
системы было устранено на мышцы радужной |
артериального давления, учащение дыхания и |
нервной системы по сравнению с соматической? |
||||
оболочки глаза? |
частоты сердечных сокращений, усиленное |
1. Рефлекторная дуга |
|
|||
1. В преганглионарных волокнах выделяется |
потоотделение. Какие структуры мозга |
|
|
|
|
|
ацетилхолин (как синаптической, так и |
принимали участие в данной реакции организма |
|
|
|
|
|
парасимпатической). Он взаимодействиует с Н- |
спортсмена, и какой отдел вегетативной системы |
|
|
|
|
|
холинорецепторами (никотинчувствительные |
был активирован? |
|
|
|
|
|
рецепторы) нейронов вегетативных ганглиев |
1Надсегментарные центры – гипоталамус, |
|
|
|
|
|
2. Н-холинорецепторы ганглиев блокируются под |
мозжечок, базальные ганглии, кора больших |
|
|
|
|
|
влиянием ганглиоблокаторов, например, |
полушарий, лимбическая система. Надсегментарные |
|
|
|
|
|
бензогексония, никотина в больших концентрациях |
центры оказывают влияние только через |
|
|
|
|
|
3. Основной медиатор – норадреналин – 90%, |
нижележащие сегментарные центры |
|
|
|
|
|
адреналин -7% и дофамин – 3%. Норадреналин |
2. Сегментарные центры – спинной, продолговатый |
|
|
|
|
|
выступает во взаимодействие с адренорецепторами. |
и средний мозг. При участии нейронов ЦНС |
|
|
|
|
|
Исключение – в постганглионарных симпатических |
сегментарных и надсегментарных нервных центров |
|
|
|
|
|
волокнах потовых желез выделяется ацетилхолин, |
осуществляются центральные рефлексы. |
|
|
|
|
|
который взаимодействует с М-холинорецепторами, |
3. Переферический отдел включает микроганглии |
|
|
|
|
|
вызывает возбуждение потовых желез и |
метасимпатической нервной системы, пара- и |
|
|
|
|
|
потоотделение |
превертебральные ганглии, преганглионарные и |
|
|
|
|
|
4. Выделяют альфа и бета адренорецепторы. При |
постганглионарные волокна ВНС. Переферические |
признаки |
вегетативная |
|
соматическая |
|
взаимодействии норадреналина с альфа- |
вегетативные рефлексы при участии ганглионарных |
Органы- |
Гладкие мышцы,миокард, |
|
Скелетные мышцы |
|
адренорецепторами меняется проницаемость |
нейронов, расположенных вне ЦНС – в |
мишени |
железы, жировая ткань, |
|
|
|
мембраны для ионов натрия, происходит |
вегетативных ганглиях |
|
органы иммунитета |
|
|
|
деполяризация и, как следствие возбуждение и |
4. Гипоталамус. Гипоталамус регулирует |
ганглии |
Паравентрикулярные, |
|
Локализованы в |
|
усиление функции органа. При взаимодействии с |
гомеостатическую деятельность ВНС и является |
|
превертебральные и |
|
ЦНС |
|
бета-адренорецепторами происходит увеличение |
высшим центральным органом регуляции |
|
органные |
|
|
|
потока калия, гиперполяризация и соответственно |
симпатической и парасимпатической систем. |
Число |
2 |
|
1 |
|
торможение и снижение функции органа. |
Активность ВНС и функции эндокринной системы |
|
||||
эфферентных |
|
|
|
|||
Исключение – взаимодействие норадреналина с |
находятся под контролем гипоталамуса, который |
|
|
|
||
нейронов |
|
|
|
|||
бета-АР сердца вызывает усиление деятельности |
является частью мозга и регулирует в основном те |
|
|
|
||
Эффект |
Возбужд. Или подавляющ |
|
возбуждающий |
|||
сердца |
функции, которые связаны с поддержанием |
|
||||
стимуляции |
|
|
|
|||
5. Блокаторы аальфа-АР-фентоламин, бета-АР- |
гомеостаза организма. |
|
|
|
||
Типы |
Тонкиемиэминезированные |
|
Миэлинизированные |
|||
анаприлин (широко применяется для понижения |
5. Активация адренорецепторов. Кора больших |
|
||||
нервных |
или немиалинизированные, |
|
быстрые |
|||
ЧСС и АД. Оба типа рецепторов делятся на два |
полушарий |
|
||||
волокон |
медленнные |
|
|
|||
подтипа альфа-1 и альфа-2, бета-1 и бета-2-АР. |
6. Симпатический отдел ВНС отвечает за |
|
|
|||
2. Соматические НС. Нервные волокна покидают головной и спинной |
||||||
Антагонисты: |
повышение АД, учащение ЧСС и усиленное |
|||||
мозг сегментарно, перекрывают иннервируемые области приблизительно |
||||||
Альфа-1-АР_ празозин, дропаридол |
потоотделение. Т.к. именно эта система |
|||||
трех сегментов |
|
|
|
|||
Альфа-2-АР-раувольегин, йохилибин |
осуществляет экстренные реакции и возбужденные |
|
|
|
||
Вегетативная – выходят их трех отделов мозг – тораколюмбального |
||||||
Бета-1-АР-практолол, Атеполол |
процессы. Структура, которая оказала пусковое |
|||||
(симпатические) краниального и сокрального (парасимпатического) |
||||||
Бета-2-АР- бутокслины |
влияние на повышение тонуса симпатической |
|||||
3. Соматические – толстые миелинизированные диаметр до 20 мкм А-тип |
||||||
|
системы – кора больших полушарий |
|||||
|
Вегетативные – преганглионарные – миелинизированные типа В до 5 |
|||||
|
|
|||||
|
|
мкм. Постганглионарные – безмиелиновые С-тип, до 2мкм |
||||
|
|
4. Соматические до 120 м/сек |
|
|||
|
|
Вегетативные В тип 3-18 м/сек ., С тип 0.5-3м/сек |
|
|||
|
|
5. Соматические – лабильность до 200 лит/сек, высокая малый |
||||
|
|
рефрактерный период |
|
|||
|
|
Вегетативная – лабильность 10-15 лит/сек низкое. Возбудимость – |
||||
|
|
низкая, большой рефрактерный период |
|
|||
|
|
6. Соматическая – пусковое влияние на эффекторные органы: есть |
||||
|
|
импульс – есть реакция (сокращение скелетной мышцы) |
||||
|
|
Вегетативная – корригирующие (модулирующие) действие: орган может |
||||
|
|
работать автономно, а ВНС повышает или снижает его активность. |
||||
ТЕМА 7 Задача 1 В эксперименте на лягушках |
Задача 2 Экспериментально с помощью перерезки |
Задача 3 Какие характерные особенности |
|||||||||||||
производили перерезку переднего или заднего |
определенных структур спинного мозга установили, что |
поведения были у животного после перерезки мозга |
|||||||||||||
корешков спинного мозга и раздражали их |
перерезка определенных структур спинного мозга в одних |
выше продолговатого (бульбарное животное)? |
|
||||||||||||
периферические отрезки, при этом в одном случае |
случаях нарушает чувствительность в определенных |
1. |
Бульбарное |
животное |
может |
стоять |
в |
||||||||
наблюдали двигательную реакцию, а в другом – она |
участках тела, а в других – делает невозможными движения. |
|
карикатурной позе |
с |
разогнутыми |
||||||||||
отсутствовала. С чем это связано? |
Какая функция спинного мозга исследовалась? |
|
|
конечностями. Возвращается с изменённой |
|||||||||||
1.Да, наблюдалась. |
1.Повреждались сегменты спинного мозга; Сегментчасть |
|
позы к исходному состоянию не может. |
|
|||||||||||
2.Связано с наличием в переднем корешке спинного мозга |
спинного мозга, которая имеет 2 задних и 2 передних корешка |
|
2. |
Отсутствие |
тонуса |
фиксаторов |
и |
||||||||
эффекторных(двиг.) волокон, выходящих, содержащих |
2.Проводящие пути спинного мозга классифицируются в связи с |
|
повышеный тонус экстензоров. |
|
|
||||||||||
мотонейрон. Передние корешки являются |
функциональными особенностями: |
|
|
|
3. |
Ретикулярная |
|
|
|
формация |
|||||
эфферентными двигательными, а задние — |
• |
Проекционные |
|
|
|
|
моста(вестибулярные ядра) |
|
|
|
|||||
афферентными чувствительными |
• |
Коммисуральные |
|
|
|
|
|
Мотонейроны |
|
(спинного |
|||||
3.Нет, не наблюдалась. |
|
|
|
|
|
мозга) α, j – разгибатели |
|
||||||||
• |
Ассоциативные |
|
|
|
|
|
|
||||||||
4.(+5) Это связано с наличием в задних (чувств.) корешков |
|
|
|
|
|
Мотонейроны спинного мозга |
|||||||||
Классификация путей: |
|
|
|
|
|||||||||||
спинного мозга афферентных входящих волокон, |
|
|
|
|
|
α,J – сгибатели |
|
|
|
||||||
|
a) |
Восходящие(центростремительные, |
|
|
|
|
|
||||||||
содержащих вставочные нейроны. |
|
4. |
Сохранено |
дыхание |
и |
рефлекторная |
|||||||||
|
|
чувствительные) |
|
|
|||||||||||
5.Закон Мажанди характеризует их функциональное |
|
|
|
|
|
регуляция, саморегуляторная деятельность |
|||||||||
|
b) |
Нисходящие |
|
(двигательные, |
|
||||||||||
распределение. |
|
|
|
сердца и |
тонуса |
сосудов, |
регуляция |
||||||||
|
|
эфферентные) |
|
|
|
||||||||||
Передние и задние корешки спинного мозга отвечают за |
|
|
|
|
|
отделения |
пищеварительных |
секретов,, |
|||||||
|
c) |
Собственные |
( |
ассоциативные, |
|
||||||||||
передачу импульса от мозга к рабочему органу и |
|
|
жевания. |
|
|
|
|
|
|
||||||
|
|
коммисуральные волокна) |
|
|
|
|
|
|
|
|
|||||
наоборот. |
|
|
|
5. |
Спинальное |
животное |
в |
отличие |
от |
||||||
3.В основном спинной мозг соединяется с головным мозгом, |
а |
||||||||||||||
|
|
бульбарного самостоятельно существовать |
|||||||||||||
|
именно со структурами, такими ка таламус, мозжечок, пирамиды, |
|
|||||||||||||
|
|
не может:ходить |
не |
может, |
функции |
||||||||||
|
продолговатый мозг и образует соответствующие пути – тракты. |
|
|||||||||||||
|
|
внутренних органов сохранены, нарешена |
|||||||||||||
|
4.Пучки Голля |
и |
клиновидные |
пучки |
Бурдаха |
– |
|
||||||||
|
|
АД система |
|
|
|
|
|
|
|||||||
|
быстропроводящие пути чувствительности и чувства положения и |
|
|
|
|
|
|
|
|||||||
|
|
|
|
|
|
|
|
|
|||||||
|
движения. |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Пучки Голля от нижних конечностей и нижней половины |
|
|
|
|
|
|
|
|
||||||
|
туловища (8 нижних грудных, 5 поясничных, 5 крестцовых, 1 |
|
|
|
|
|
|
|
|
||||||
|
копчиковый). |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Пучки Бурдаха – верхние конечности, верхняя часть туловища и |
|
|
|
|
|
|
|
|
||||||
|
шеи. |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
5.Кортико-спинальный ( пирамидный тракт) перекрёст в области |
|
|
|
|
|
|
|
|
||||||
|
пирамид продолговатого мозга – латеральные и передние пучки, |
|
|
|
|
|
|
|
|
||||||
|
перекрещёные на уровне соответствуещего спинного мозга |
|
|
|
|
|
|
|
|
||||||
|
сегмента. |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Те, что начинаются в соматосенсорной коре, тормозят |
|
|
|
|
|
|
|
|
||||||
|
афферентную сенсорную активность в задних рогах. |
|
|
|
|
|
|
|
|
|
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
ТЕМА 8 задача 1 У животного, находящегося под |
Задача 2 В экспериментальных исследованиях |
Задача 3 В морфологических исследованиях, с |
||||||||||||||
наркозом, в эксперименте была произведена перерезка |
обосновано, что компонент ориентировочного рефлекса, |
использованием |
импрегнации |
серебром, |
Наута |
|||||||||||
ствола мозга ниже красных ядер. Какие изменения в |
т.н. |
сторожевой |
рефлекс |
или |
старт-рефлекс, |
установил, что срединное положение в стволе мозга |
||||||||||
распределении мышечного тонуса произошли? |
осуществляется с участием структур среднего мозга. |
занимали нейроны с сетевидным разветвлением |
||||||||||||||
1. |
Функции среднего мозга: поддержание тонуса, |
Какое значение имеет осуществление этого рефлекса для |
дендритов, за эту особенность названные ретикулярной |
|||||||||||||
|
отвечает за ориентировачные, сторожевые и |
организма? |
|
|
|
|
формацией. Какие специфические и неспецифические |
|||||||||
|
оборонительные рефлексы на зрительные и |
|
1. |
Ядра блокового нерва( IV) и глазодвигательного |
влияния доказывает эта структура? |
|
|
|
||||||||
|
звуковые раздражители. |
|
|
|
нерва(III) расположены в среднем мозге. |
1. |
1862г. – Сеченов- в опыте с торможением |
|||||||||
|
Красное ядро – перераспределение мышечного |
|
|
Благодаря |
этим |
ядрам |
осуществляется |
|
открыл эту структуру. |
|
|
|
||||
|
тонуса для обеспечения их координации в |
|
|
управление |
глазодвигательным |
аппаратом: |
|
1949г.- Джузеппе Моруцци и Гораций Мэгун- в |
||||||||
|
поддержании определённой позы тела. |
|
|
поворот глаза, аккомодация глаза, фиксация |
|
опыте раздражали медиальные структуры |
||||||||||
|
Чёрная субстанция – координация движений |
|
|
зрения на ближнем предмете, путём сведения |
|
продолговатого мозга импульсами 100 Гц. |
||||||||||
|
пальцев рук, актов глотания и жевания, |
|
|
зрительных осей, реагирование на свет/темноту- |
|
Наблюдали у кошки сначала пробуждение, |
||||||||||
|
регуляция |
точных |
целенаправленных |
|
|
«зрачковый рефлекс». |
|
|
|
|
настороженность, а при усилении импульса- |
|||||
|
движений. |
|
|
|
2. |
Сторожевой рефлекс обеспечивают ядра задних |
|
реакцию убегания. |
|
|
|
|||||
2. |
Ретикулярная формация моста |
|
|
бугров |
четверохолмия; |
|
компонент |
2. |
Нейроны |
обеспечивают |
|
интегрированную |
||||
|
альфа,γ мотонейроны, разгибатели; |
|
|
ориентировочного рефлекса, осуществляемого с |
|
функцию. Эти нейроны образуют сетевидные |
||||||||||
|
альфа,γ мотонейроны, сгибатели; |
|
|
участием |
коры |
больших |
|
полушарий. |
|
разветвления дендритов, а аксоны длинные |
||||||
|
|
|
|
|
|
Перераспределение мышечного тонуса. |
|
опускаются до спинного мозга и поднимаются к |
||||||||
|
Вестибулярное ядро |
|
|
3. |
Осуществляется с участием коры больших |
|
коре обратно вверх. |
|
|
|
||||||
|
Состояние после перерезкидецеребральная |
|
|
полушарий. |
|
|
|
3. |
Ну структуры коры больших полушарий влияют |
|||||||
|
регидность(резкое повышение тонуса мышц- |
|
4. |
Перераспределение |
мышечного |
тонуса – |
|
восходящие пути РФ. Повышает тонус, |
||||||||
|
разгибателей) |
|
|
|
усиление тонуса мышц-сгибателей, что |
|
регулирует возбудимость |
нейронов |
коры |
|||||||
|
|
мотонейроны: α-мотонейроны |
|
|
способствует бегству или нападению; за счёт |
|
больших полушарий мозга, не изменяя |
|||||||||
|
иннервируют экстрафузальные волокна, тем |
|
|
статических и статокинетических рефлексов, в |
|
специфику на адекватные раздражения, цикл |
||||||||||
|
самым обеспечивая мышечное сокращение; α- |
|
|
зависимости от положения тела в пространстве. |
|
сна и бодрствования. |
|
|
|
|||||||
|
большие - обеспечивают фазные сокращения, |
|
5. |
Значениесамосохранение. |
|
|
4. |
Координация работы разных центров ствола |
||||||||
|
α-малые - тоническое напряжение; γ - |
|
|
|
|
|
|
|
|
мозга. Связь с гипоталамусом. |
|
|||||
|
мотонейроны - рассеяны среди α, не имеют |
|
|
|
|
|
|
|
5. |
Влияние РФ на структуры спинного мозга |
||||||
|
прямых контактов с афферентными, но |
|
|
|
|
|
|
|
|
отвечают нисходящие пути по вестибулярному |
||||||
|
моносинаптически получает информацию от |
|
|
|
|
|
|
|
|
пути, руброспинальном пути, облегчающие и |
||||||
|
восходящих трактов; - преганглионарные |
|
|
|
|
|
|
|
|
тормозящие компоненты. |
|
|
|
|||
|
нейроны вегетативной нервной системы; |
|
|
|
|
|
|
|
|
|
|
|
|
|
||
3.Децеребральная регидность носит рефлекторный характер. Резкое повышение тонуса мышц-разгибателей.
4.Усиление децеребральной регидности.
5.Доказывает, что децеребральная регидность несёт рефлекторный характер, т.к. поддерживается с периферии, что покажет и докажет эксперимент( исчезнет децеребральная регидность).
ТЕМА 9 задача 1 В экспериментах и клинических |
|
Задача 2 При поражении мозжечка, возникает целый ряд |
Задача 3 Базальные ганглии принимают участие в |
|||||||||||||||
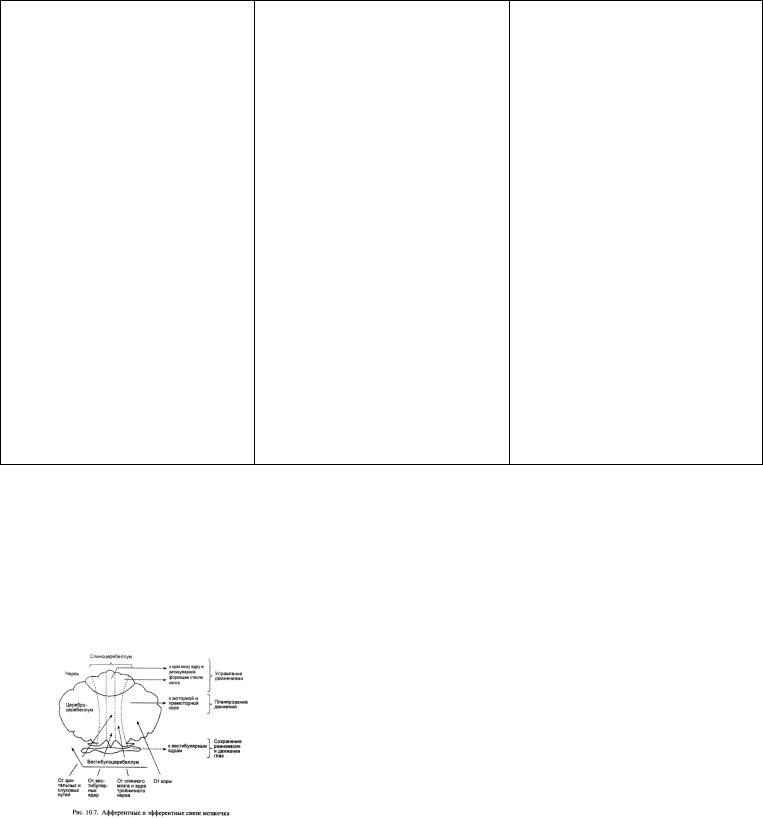
исследованиях установлено, что мозжечок является |
|
симптомов. В чем их диагностическое значение? |
координации |
движений, |
выполнении сложных |
|||||||||||||
надсегментарным органом, входящим в систему |
|
1. |
Астения – повреждение или удаление |
стереотипных движений, построении и запоминании |
||||||||||||||
регуляции движений. Какие функции он выполняет? |
|
мозжечка. Могут быть затронуты клубочки |
двигательных программ в механизмах памяти и |
|||||||||||||||
1. |
входит в |
латеральную |
зону( получение |
|
зернистого слоя коры мозжечка. Симптомы: |
обучения. Благодаря каким связям это осуществляется? |
||||||||||||
|
импульсов преимущественно из ассоциативных |
|
повышенная утомляемость, утрата способности |
1. |
Базальные ганглии – полосатое тело(хвостатое |
|||||||||||||
|
зон коры больших полушарий через ядра моста)- |
|
к |
продолжительному |
физическому или |
|
ядро и скорлупа), бледный шар, ограда. |
|||||||||||
|
латеральный мозжечок. |
|
|
|
умственному напряжению, вызывает астению |
2. |
Онсовная часть аксонов хвостатого ядра и |
|||||||||||
|
Входящие сигналы: через мостовое ядро и |
|
мышц. Причина в блокировании тормозящего |
|
скорлупы идёт к бледному шару, отсюда- к |
|||||||||||||
|
гранулярные |
волокна, |
информация |
от |
|
влияния |
на |
различные |
произвольные |
|
таламусу, а от него к сенсорным полям + есть |
|||||||
|
кортикальных центров или от кортикальных и |
|
двигательные акты. Движения становятся |
|
связь с черны веществом, красным ядром, |
|||||||||||||
|
подкорковых |
двигательных |
центров |
через |
|
резкими |
|
подавление |
активности φ- |
|
мозжечком; |
интегрированные |
процессы, |
|||||
|
нижнюю оливу и извитые волокна. |
|
|
мотонейронов. |
|
|
|
|
условно-рефлекторная |
|
деятельность, |
|||||||
|
Выходящие: из латеральног мозжечка |
через |
2. |
Гипотонус мускулатуры. В 2 раза уменьшается |
|
двигательная активность. |
|
|
||||||||||
|
двигательные участки таламуса от зубчатого |
|
поднимаемый вес. В следствие гипотонии |
|
Бледный шар – связи с таламусов( ), средним |
|||||||||||||
|
ядра к двигательным участкам коры. |
|
|
происходит подавление активности φ- |
|
мозгом, гипоталамусом, соматосенсорной |
||||||||||||
|
|
|
|
|
|
мотонейронов. |
|
|
|
|
системой – простые и сложные формы |
|||||||
|
|
|
|
|
3. |
Триада Шарко: |
|
|
|
|
поведения. |
|
|
|
|
|||
|
|
|
|
|
Нистагм( тремор глаз) неконтролируемы ритмичные |
|
Ограда – преимущественно с корой большого |
|||||||||||
|
|
|
|
|
движения глазных яблок. |
|
|
|
|
мозга. |
|
|
|
|
||||
|
|
|
|
|
Тремор. |
|
|
|
|
|
|
3. |
Афферентные |
|
сигналы |
в |
большинстве |
|
|
|
|
|
|
Скандированная – речь медленная, четко разделена на |
|
поступают к нейронам полосатого тела. |
|||||||||||
|
|
|
|
|
слоги. |
|
|
|
|
|
|
4. |
Сигналы от больших полушарий, ядер |
|||||
|
|
|
|
|
4. |
Аплазия мозжечка – Синдром Арнольда-Клари |
|
таламуса, клеточных групп черной субстанции |
||||||||||
|
|
|
|
|
5. |
При |
повреждении мозжечка |
затрагивается |
|
промежуточного мозга. |
|
|
||||||
|
|
|
|
|
|
вегетативная нервная система. При дисфункции |
5. |
Эфферентные пути -полосатого тела: бледный |
||||||||||
|
|
|
|
|
|
мозжечка |
наблюдается |
головокружение, |
|
шар, черная субстанция, ретикулярная |
||||||||
|
|
|
|
|
|
нарушение |
|
мочеиспускания, |
нарушение |
|
формация. |
|
|
|
|
|||
|
|
|
|
|
|
потоотделения, иннервация сосудов. |
|
- бледного тела: красные ядра, субталамические |
||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
ядра, ядра гипоталамуса, зрительные бугры. |
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
Основной эфферентной |
структурой является |
||||
2. |
|
|
|
|
|
|
|
|
|
|
|
|
полосатое( от него пути начинаются) |
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
ТЕМА 10 задача 1 В многочисленных экспериментах |
Задача 2 Испытуемый, которого разбудили, сообщил, что |
Задача |
3 |
Сон |
представляет |
собой особым образом |
|||||||||||
как с удалением, так и раздражением различных |
время пробуждения совпало со сновидением, |
организованную деятельность мозга в условиях |
|||||||||||||||
структур лимбической системы установлено участие |
содержание которого он подробно рассказал. |
максимального |
сокращения поступления |
сенсорных |
|||||||||||||
гипоталамуса в эмоциональных реакциях и |
1. |
Сон – это состояние мозга, характеризующееся |
сигналов. Какое самое кардинальное проявление сна? |
|
|||||||||||||
целенаправленном мотивационном поведении. |
|
торможением |
активного |
взаимодействия |
1. |
Сон |
- |
последствие |
прекращения |
или резкого |
|||||||
Взаимодействие гипоталамуса с какими структурами |
|
организма с окружающей средой и неполным |
|
приостановления афферентных импульсов в коре |
|||||||||||||
обеспечивает эту функцию? |
|
|
прекращением |
сознаваемой |
|
психической |
|
больших полушарий. Также сон развивается при |
|||||||||
1. |
За биоритмы |
отвечает супрахиазматическое |
|
деятельности. |
|
|
|
|
действии на корковые клетки раздражителей |
||||||||
|
ядро гипоталамуса. |
|
|
Фазы: медленный сон( ортодоксальный); |
|
продолжительное время или чрезмерной силой. |
|
||||||||||
2. |
Раздражение |
латеральной |
части базальной |
|
Быстрый сон(парадоксальный). |
|
Во сне тонус мышц резко понижен, увеличение |
||||||||||
|
преоптической области вызывает сон и |
2. |
Быстрый сон |
характеризуется |
повышением |
|
потоотделения. |
|
|
|
|
||||||
|
сопутствует |
изменениям |
биоэлектрической |
|
тонуса парасимпатического отдела ВНС, |
2. |
Гипногенные |
центры |
ответственны |
за |
|||||||
|
активности головного мозга ( у животных). |
|
активизацией синтеза белковых молекул. |
|
формирование медленного сна, тормозят центры |
||||||||||||
3. |
Передний и задний гипоталамус. Задний – |
3. |
Наличие медленных высокоамплитудных волн |
|
бодрствования. |
|
|
|
|
|
|||||||
|
бодрствование. |
|
|
на ЭЭГ характерно для медленного сна. |
|
В |
состоянии |
бодрствования |
активность |
||||||||
4. |
Симпатическая нервная система. |
4. |
Медленный сон( около 90 минут) |
|
|
гипногенных центров подавлена корой больших |
|||||||||||
5. |
Гипоталамус отвечает за такие эмоции как |
|
Бытрый сон( около 10-20 минут) |
|
|
полушарий, в основном передний базальный |
|||||||||||
|
удовольствие, агрессия, ярость. Центр |
|
Здоровый сон начинается с медленного сна |
|
мозг. |
|
|
|
|
|
|
||||||
|
удовольствия – в заднем гипоталамусе, |
|
приблизительно 5-10 минут. Диафрагмальное |
3. |
Ограничение поступления афферентных импульсов |
||||||||||||
|
взаимодействует с лимбической системой, |
|
дыхание, благодаря которому кровь в большей |
|
в кору больших полушарий. Активируется |
||||||||||||
|
участвует в организации эмоциональной сферы |
|
степени обогащается кислородом, улучшает |
|
гипногенные структуры, отвечает за медленный сон. |
||||||||||||
|
и полового поведения. Центр страха и ярости – |
|
метаболизм хорошего сна. |
|
|
4. |
Медленный сон: гипногенные структуры, передний |
||||||||||
|
в переднем гипоталамусе. |
|
5. |
У новорожденного фаза медленного глубокого |
|
отдел гипоталамуса, неспецифические ядра |
|||||||||||
|
|
|
|
|
сна наступает не сразу, спустя только 20-30 |
|
таламуса, ядра срединного шва, тормозной центр |
||||||||||
|
|
|
|
|
минут. Глубокий сон длится около 1 часа, а |
|
Дж. Морруци ( средняя часть варолиевого моста). |
|
|||||||||
|
|
|
|
|
дальше идёт фаза только быстрого сна. Именно |
|
Быстрый сон: голубое пятно, вестибулярные |
||||||||||
|
|
|
|
|
поэтому сон младенцев более чуток, чем у |
|
ядра продолговатого мозга, ретикулярная |
||||||||||
|
|
|
|
|
взрослых, у которых фаза медленного сна |
|
формация, верхнее двухолмие среднего мозга. |
|
|||||||||
|
|
|
|
|
главенствует над фазой быстрого сна. |
|
|
|
|
|
|
|
|
|
|||
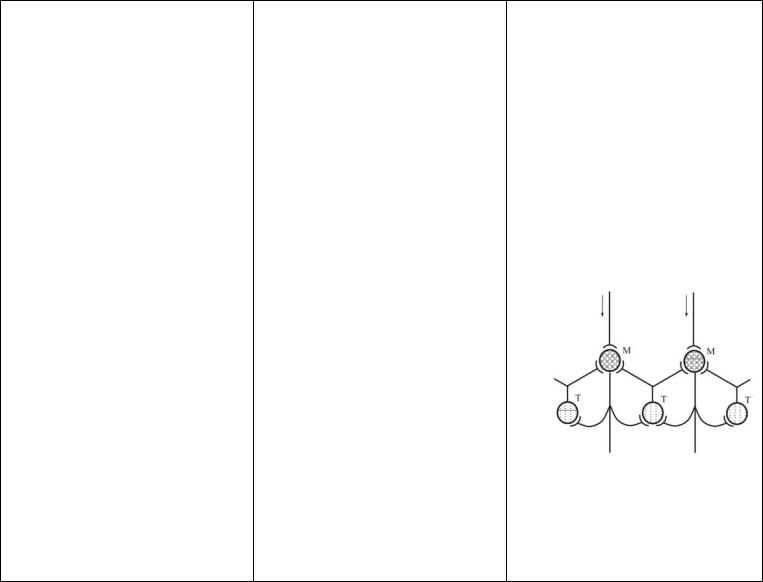
5.
М- мотонейроны, Т – тормозные вставочные нейроны. В системе поддержания бодрствования встроен механизм положительной обратной связи, функция их торможения активирующих нейронов.