Реферат: Зміни деяких морфометричних показників на прикладі мальків коропових риб
Зміни деяких морфометричних показників на прикладі мальків коропових риб
Зміст
1. Вступ
2. Сімейство коропові
3. Розвиток коропових риб
3.1 Ембріональний період
3.1.1 І етап. Активація яйця і утворення бластодиска.
3.1.2 ІІІ етап. Бластуляція
3.1.3 ІV етап. Гаструляція.
3.1.4 Презумптивні зачатки
3.1.5 V етап. Органогенез у карпа
3.1.6. VI етап. Відокремлення хвостового відділу від жовткового мішка
3.1.7 VII етап. Розвиток ембріональної судинної системи
3.1.8 VIII етап. Розвиток зяберно-щелепного апарату
3.2 Личинковий період
3.2.1 І етап. Змішане харчування
3.2.2 ІІ етап. Повне зовнішнє харчування, диференціація непарної плавцевої складки
3.2.3 ІІІ етап. Розвиток променів в непарних плавцях
3.2.4 ІV етап. Розвиток променів в парних плавцях
3.3 Мальковий період
3.3.1 І етап. Розвиток лускатого покриву
4. Антропогенні фактори, що можуть впливати на розвиток мальків коропових риб
4.1 Вплив важких металів та їх солей на розвиток мальків коропових риб
4.2 Вплив рентгенівського випромінювання та радіоактивних речовин на розвиток мальків
4.3 Вплив пестицидів на розвиток мальків коропових риб.
5. Найбільш поширені аномалії розвитку мальків коропових риб
6. Висновок
7. Перелік посилань
1.
Вступ
У риб, найдавнішої з груп хребетних тварин, існує сувора система пристосувальницьких взаємодій з абіотичними факторами. Кожен живий організм, в тому числі і риби, володіє відносно будь-якого діючого на нього фактора генетично детермінованим, філогенетично набутим, унікальним діапазоном толерантності, в межах якого цей фактор є для нього стерпним. Антропогенні впливи, з одного боку, представляють собою нові параметри середовища існування, з іншого - обумовлюють антропогенну модифікацію вже наявних природних факторів і тим самим роблять значний вплив на стійкість організмів до цих чинників. [1]
Період ембріонально-личинкового розвитку є найбільш чутливим етапом в онтогенезі риб не тільки до дії абіотичних факторів природного характеру (температура води, вміст кисню, величина pH, швидкість течії, освітленість тощо), але і до впливу різних токсичних речовин. У цілому ряді експериментальних робіт виявлено різні порушення у личинок риб під впливом окремих факторів.
Аналізуючи численні експериментальні роботи, можна говорити про те, що під впливом різноманітних за походженням забруднювачів (сира нафта, пестициди, важкі метали тощо) у риб виявляються одні і ті ж види аномалій розвитку.
Без сумніву можна говорити про те, що наявність різного виду аномалій у риб є відповідною неспецифічною реакцією на дію комплексу несприятливих факторів абіотичного походження та різного походження токсичних речовин. Таким чином, різні морфологічні порушення, які виявляються у молоді риб, можна ефективно використовувати в якості надійного критерію екологічного стану водойми.
У своїй роботі я приведу приклади зміни деяких
морфометричних показників на прикладі мальків коропових.
2. Сімейство коропові
В даний час до цього загону коропоподібних відносять більше 2000 видів прісноводних (рідше - прохідних) риб, поширених в Євразії, Північній Америці та Африці. Їх характерною особливістю є відсутність зубів на щелепах (але так звані глоткові - розташовані на нижньоглоточних кістках - зуби розвинені у них дуже добре.) Рот у коропоподібні часто висувний, у багатьох видів з вусиками. Тіло зазвичай вкрита циклоїдною лускою, рідше голе. Плавальний міхур великий і складається з 2-3 камер.
Загін включає кілька сімейств, в число яких входить, наприклад, сімейство в*юнові (cob itidae). Але більша частина видів коропоподібні відноситься до сімейства коропових (Cyprinidae). Це найбільше сімейство серед риб взагалі, воно включає близько 1800 видів. Більшість коропових воліє теплі води, але у деяких видів (краснопірок, язей) ареал простягається до Заполяр'я. Найбільшим представником сімейства є гігантський вусач (Catlocarpio siamensis), що досягає 3 м у довжину, мешкає в Південно-Східній Азії. А серед самих дрібних можна назвати дионду (Dionda diaboli), безбарвного нотрописа (Notropis perpallidus) і цілий ряд інших американських коропових, чия довжина не перевищує 5 см.
Ікра у більшості коропоподібні клейка - риби відкладають її на камені, рослинність або інший відповідний субстрат. Але у деяких видів, наприклад у білого амура (Ctenopharyngodon idella), ікра розвивається, плаваючи в товщі води.
Для ряду видів коропоподібні характерна турбота про потомство. Наприклад, живе в Америці чорний толстоголов (Pimephales promelas) відкладає ікринки в збудоване гніздо, а потім охороняє і піклується про кладці. Широко відома турбота про потомство у нашого горчака (Rhodeus sericeus) - самка цього виду з допомогою довгого яйцеклада відкладає ікру в мантийную порожнину двостулкових молюсків. Серед коропових зустрічаються і "зозулі", підкидають свою ікру в гнізда інших риб. Однак у більшості представників загону турбота про потомство не виражена.
Молодь більшості коропових харчується зоопланктоном, а ось раціони дорослих риб цієї групи досить різноманітні. Наприклад, головень (Leuciscus cephalus) і жерех (Aspius aspius) - активні хижаки, що полюють на дрібних риб, білий амур (Ctenopharyngodon idella) воліє рослинну дієту, підуст (Chondrostoma nasus) і храмуля (Varicorhinus capoeta) зскрібають обростання з підводних каменів і корчів. Чимало серед коропових і риб, які харчуються бентосом, збираючи його з дна і викопуючи з грунту. А ось уклейка (Alburnus alburnus) харчується в основному комахами - причому не обмежується водними формами і тими, які падають у воду, але і спритно ловить, вистрибуючи з води, літаючих над поверхнею комарів і мушок.
Багато коропові риби, навіть відносно невеликих розмірів, - важливий об'єкт промислу в прісних водах. Це лящ (Abramis brama), вобла (Rutilus rutilus caspicus), язь (Leuciscus idus), краснопірка (Scardinius erythrophthalmus) та ін Деякі представники цього сімейства є об'єктами штучного розведення в ставкових господарствах.
Найбільш відомий серед них, звичайно, короп (Cyprinus carpio) (рис.1), але дуже давно - вже більше 2 тис. років - у Китаї розводять і товстолобика (Hypophthalmichthys molitrix)
Досить тривала і історія розведення і селекції декоративних коропових - численних порід золотої рибки, виведених в Китаї з срібного карася (Carasius auratus). За деякими даними, початок їх розведення було покладено майже 2 тис. років тому, в I ст., а до масової селекції приступили в X-XIII ст. Приблизно таку ж, якщо не більш довгу, історію має розведення коропів і їх декоративних порід (коі) в Японії. [8]
коропова риба аномалія адаптаційний
3. Розвиток коропових риб
Для кращого відстеження змін в морфометричних показниках мальків коропових під впливом антропогенних факторів, розглянемо розвиток коропових від ембріонального до малькового періоду в нормальних умовах.
3.1 Ембріональний період
3.1.1 І етап. Активація яйця і утворення бластодиска.
Після з'єднання гамет починається активація яйця,
що помітно по виділенню вмісту кортикальних альвеол (гранул) і утворення
перивителлінового простору. Цитоплазма стягується на анімальний полюс і утворює
горбик бластодиск (рис. 1 А). Протягом етапу завершується друге ділення мейозу,
зближуються чоловічий і жіночий пронуклеуси і незабаром з'являється веретено
першого поділу дроблення. Протягом етапу відбувається затвердіння, тобто
збільшення міцності оболонки.
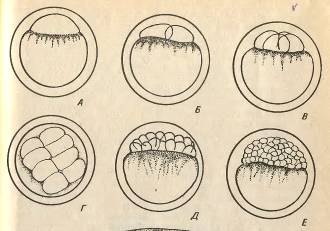
Рис.1. Ранні етапи розвитку карпа: А - І перший
етап - активація яйця та утворення плазмового горбика. ІІ етап - дроблення: Б -
2 бластомери, В - 4 бластомери, Г - 8 бластомерів, Д - 32 бластомери, Е - 128
бластомерів. ІІ етап. Дроблення
Дробленням називається серія міотичних поділів ядра і цитоплазми зиготи, що не супроводжуються зростанням клітин. Це призводить до утворення багатоклітинного зародка. Перша борозна дроблення проходить через центр бластодиска в меридіональному напрямку і поділяє бластодиск на два, зазвичай, різних за величиною, бластомера (рис.3 Б). Друга борозна дроблення, також меридіональна, проходить перпендикулярно першій борозні, і в результаті утворюються чотири бластомера (рис.3 В). Друга борозна представляє собою площину білатеральної симетрії зародка. Дві борозни третього поділу дроблення проходить паралельно одна іншій через центри розташовані в два ряди бластомерів, утворюючи 8 клітин (рис.3 Г). Дві наступні борозни четвертого поділу призводять до утворення 16 бластомерів. Особливість перших чотирьох поділок, полягає в тому, що ділення клітин не завершуються і плазмалемма в нижній частині бластомерів не утворюється. Всі клітини з'єднані в нижній частині загальним цитоплазматичним шаром, утворюючи синтицій.
Борозна п'ятого ділення дроблення проходить вже не меридіонально, а паралельно екватору жовтка і це призводить до появи 32 бластомерів і поділу їх на верхні, що не межують з жовтком, і нижні, підстави яких раніше з'єднані загальним шаром цитоплазми (рис.3 Д). Сполучені нижні бластомеры утворюють перибласт, який переходить у тонкий цитоплазматичний шар, що оточує жовток. В результаті шостого ділення дроблення утворюється 64 бластомера, сьомого - 128 (рис.3 Е). Наступні поділи бластомерів призводять до утворення великої кількості клітин, званих бластодермою.
3.1.2 ІІІ етап. Бластуляція
На етапі бластуляції ще продовжується дроблення бластомерів і вперше стає помітною диференціація клітин. Поверхневі клітини бластодерми ущільнюються і набувають полігональну форму. Їх бічні клітинні мембрани прилягають один до одного і між ними виникають контакти. В результаті цього на поверхні бластодерми з'являється епітеліальний пласт - перидерма. Під перидермою знаходяться глибокі клітини, які нещільно прилягають один до одного, між ними є щілини і порожнини, що представляють собою порожнину дроблення - бластоцель (або первинну порожнину тіла).
В ембріології коропових умовно виділяють ранню, середню та пізню бластули. Для ранньої бластули характерний високий купол клітин бластодерми, середньої - невелика його сплощення, пізньої - значне сплощення і вп*ячування в бластодерму в верхній частині жовчного мішка.
Глибоким клітинам бластодерми вже властиві слабкі рухи. Вони виражаються в періодичній появі в них коротких виступів - лобоподій, якими клітини торкаються одна одну, не утворюючи між собою контакту і не здійснюючи спрямованих рухів.
Для процесу бластуляції характерне подовження клітинного циклу, а саме інтерфази за рахунок збільшення фази S і появи фази G 1, відсутньої на етапі дроблення. В ядрах виникають ядерця і активізується синтез РНК, в цитоплазмі зростає число клітинних органел і білкових гранул. Перебудова клітинних циклів - важлива подія в ранньому ембріогенезі коропових. Ця перебудова створює умови для морфогенетичної функції ядер самого зародка і означає перехід від дроблення до бластуляції.
3.1.3 ІV етап. Гаструляція.
Гаструляцією традиційно називають процес розділення однорідної бластодерми бластули на два шари клітин - зародкові листки. Розрізняють внутрішній і зовнішній листки, - ентодерму і ектодерму відповідно. Пізніше між цими листками з'являється третій листок - мезодерма. Гаструляція здійснюється завдяки інтенсивним морфогенетичним переміщенням клітин, і результат завжди один - утвориться комплекс осьових зачатків, розташованих відповідно до основного плану будови тварини.
У коропових риб гаструляція здійснюється двома
типами переміщення клітин бластодерми: обростанням жовтка, тобто епіболією, при
якій клітини мігрують в меридіональному напрямку (рис.2 А), і осьової
конвергенцією, при цьому клітини рухаються в широтному напрямі - до майбутньої
осі зародка (рис.2 Б). При переході до гаструляції відбуваються суттєві зміни в
структурі і властивостях клітин бластодерми. В їх цитоплазмі зростає число клітинних
органел і ускладнюється їх будова. Це призводить до збільшення активності
клітин, встановленню між ними контактів і їх злипанню. Короткі виступи глибоких
клітин - лобоподії - перетворюються на довгі відростки з віялоподібними
мембранами на кінцях - філоподії, завдяки яким і здійснюються контакти і
переміщення клітин.
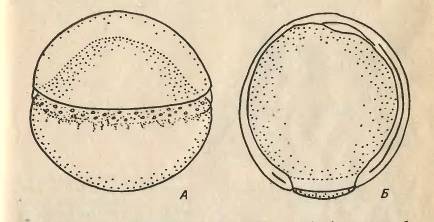
Рис.2. Гаструляція у карпа. А - початок обростання. Б - завершення обростання.
3.1.4 Презумптивні зачатки
Протягом гаструляції глибокі клітини бластодерми
рухаються по своїх траекторіях до зародкового щитка. Досягнувши його, клітини
розсортовуються і займають певне положення: верхню частину зародка являє
ектодерма, середню - мезодерма і матеріал хорди, нижній шар, що лежить на
перибласті, представлений ентодермою (рис.3).
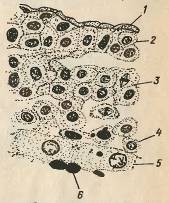
Рис.3. Зріз через зародковий щиток карпа 1 -
перидерма, 2 - ектодерма, 3 - мезодерма, 4 - ентодерма, 5 - перибласт, 6 -
жовток.
Це свідчить про те, що в ранньому ембріогенезі, на бластулі, відбувається детермінація цих клітин. Вона виникає, очевидно, у результаті якісних відмінностей клітин, розташованих у різних ділянках бластодерми.
3.1.5 V етап. Органогенез у карпа
До початку органогенезу тіло зародка у вигляді валика розташовується на жовтковому мішку (рис.6 А). Висота тіла, особливо передньої частини, протягом етапу помітно зростає. Диференціація органів відбувається в краніально-каудальному напрямку. Завершується етап утворенням зачатка хвостового відділу - хвостової нирки.
Диференціація мезодерми. На самому початку етапу під головним відділом зародків у вигляді валиків розташовується головна мезодерма і мезодерма передніх тулубових сомітів (рис.4 А). Головна мезодерма далі тоншає і розпадається на мезенхімні клітини. Мезодерма передніх сомітів у вигляді двох тяжів продовжує просуватися в каудальному напрямку.
Тулубова мезодерма, що мігрувала з зародкового кільця праворуч і ліворуч від осі зародка, утворює два пласта, що зливаються з мезодермою, що надійшла в зародок спереду. Мезодерма розташовується у вигляді пластів по обидва боки від хорди, представлена потовщеною частиною верхньої і звуженої середньою частиною, яка переходить у тонкий вентральний шар - спланхнотом, або бічну пластину.
Сегментації, тобто розчленування на окремі блоки - соміти, піддається лише потовщена дорсальна частина мезодерми. При цьому відбувається об'єднання мезодермальних клітин в групи, розділені вузькими щілинами. Число сомітів поступово зростає, завдяки відокремленню їх із задньої несегментованої частини мезодерми (рис.4 Б-Г).
Протягом етапу відбувається диференціація соміта.
Насамперед від нього відділяється спланхнотом, і в області його відділення від
"ніжок соміта" відособлюється проміжна мезодерма. Частина її,
називається нефротомом, утворює видільну систему зародка і личинки. Передній
короткий відрізок тяжа формує переднирку, а решта, довгий відрізок - вивідний
проток. Інша частина проміжної мезодерми у вигляді мезенхімних клітин
зміщується під хорду і зливається в поздовжній тяж клітин, що утворюють пізніше
магістральні судини - спинну аорту і задні кардинальні вени. Третя частина
мезенхімних клітин являє собою склеротомну мезенхіму. Вона мігрує до хорди і
охрящуває згодом на її оболонці в чотирьох місцях на кожен майбутній хребець:
праворуч і ліворуч у верхній і нижній частинах. Два дорсальний хрящових зачатка
утворюють пізніше, вже у личинок, невральну дугу хребця, а два вентральних -
нижні відростки хребців. тіла хребців утворюються в личинковому періоді життя.
Ще деяка кількість відокремленої від соміта мезенхіми, званої дерматомною,
переміщується під епітелій і утворює сполучнотканинний шар шкіри. Після
відокремлення від сомітів нефро-, склеро- і дерматома, а також мезенхіми
кровоносних судин залишаються їх осі, які утворюють тулубову мускулатуру.