Материал: Биохимия теория
2. Физико-химические свойства ак.
Ответ. Аминокислоты относятся к гетерофункциональным соединениям: за счёт карбоксильной группы они проявляют свойства кислот, за счёт аминогруппы — свойства оснований. Таким образом, аминокислоты являются амфотерными органическими соединениями. По физическим свойствам аминокислоты резко отличаются от соответствующих кислот и оснований. Все они кристаллические вещества, лучше растворяются в воде, чем в органических растворителях, имеют достаточно высокие температуры плавления. Эти свойства отчётливо указывают на солеобразный характер аминокислот. Многие аминокислоты имеют сладкий вкус. Особенности физических и химических свойств аминокислот обусловлены их строением — присутствием одновременно двух противоположных по свойствам функциональных групп: кислотной и основной. В растворах с нейтральным значением рН аминокислоты практически всегда находятся в виде биполярных ионов, или цвиттер-ионов, в которых противоположные заряды пространственно разделены. Образование биполярного иона в молекулах аминокислот связано с тем, что карбоксильная группа может отщеплять ион водорода, а аминогруппа — присоединять его. Вследствие этого в молекуле происходит перенос протона и образуется двойной биполярный ион: атом азота в нём заряжен положительно, а карбоксильная группа — отрицательно. В зависимости от числа функциональных групп в молекуле водные растворы аминокислот могут иметь нейтральную, щелочную или кислую среду. Например, так как глутаминовая кислота содержит две карбоксильных группы и одну аминогруппу, то её водный раствор имеет кислую среду. Лизин содержит одну карбоксильную группу и две амингруппы, поэтому образует щелочной раствор. Карбоксильная группа обусловливает кислотные свойства аминокислот, которые проявляются в их способности взаимодействовать, например, с щелочами. Кислотные свойства аминокислот проявляются также при их взаимодействии со спиртами (реакция этерификации) с образованием сложных эфиров. В присутствии щелочей аминокислоты, как и все органические кислоты, вступают в реакцию декарбоксирирования. Аминогруппа обусловливает основные свойства аминокислот, которые проявляются в их способности взаимодействовать с кислотами с образованием комплексных ионов по донорно-акцепторному механизму. Аминогруппа обусловливает также способность аминокислот реагировать с азотистой кислотой, в результате чего происходит замещение аминогруппы на гидроксигруппу и образование гидроксикислоты. Аминокислоты способны к конденсации друг с другом, что обусловлено взаимодействием карбоксильной группы одной молекулы с аминогруппой другой молекулы. В результате такого взаимодействия происходит отщепление молекулы воды и соединение молекул аминокислот за счёт образования пептидной связи. Образующийся в результате реакции продукт называют дипептидом. Так как дипептид содержит карбоксильную группу и аминогруппу, то он способен присоединять ещё одну молекулу аминокислоты, образуя трипептид, и т. д. Процесс удлинения пептидной цепи за счёт реакции поликонденсации приводит к образованию полипептида, обладающего очень большой молекулярной массой. Белки являются природными полипептидами.
Биохимия теория
1. Аминокислоты. Классификация (по структуре, по характеру r-групп, заменимые и незаменимые).
Ответ. Аминокислоты являются структурной единицей белков. Аминокислоты содержат аминогруппу (-NH2), карбоксильную группу (- СООН), атом водорода и боковую цепь, связанную с α-углеродным атомом. Одна из 20 аминокислот, пролин, является, иминокислотой (-NH-), остальные 19 являются α-аминокислотами. Существует несколько классификаций аминокислот, основанные на структуре и химической природе, заменимости, путях метаболизма и т.д. Классификация аминокислот по полярности радикалов: 1. Неполярные аминокислоты (аланин, валин, лейцин, изолейцин, метионин, фенилаланин, триптофан, пролин). Эти аминокислоты гидрофобны. Имеют незаряженный радикал. 2. Полярные, гидрофильные, незаряженные аминокислоты (глицин, треонин, цистеин, тирозин, серин, аспарагин, глутамин). Содержат такие полярные функциональные группы как гидроксильная, сульфгидрильная и амидогруппа. 3. Кислые аминокислоты (отрицательно заряженные аминокислоты) имеют отрицательный заряд (аспартат, глутамат) при рН 7,0. 4. Основные аминокислоты (положительно заряженные аминокислоты) имеют положительный заряд при рН 7,0. Аминокислоты классифицируются на заменимые и незаменимые (эссенциальные). 1. Незаменимые (эссенциальные) аминокислоты не могут синтезироваться в организме и должны поступать с пищей. Они необходимы для обеспечения и поддержания роста: аргинин, гистидин, изолейцин, лейцин, лизин, метионин, фенилаланин, треонин, триптофан, валин. 2. Заменимые аминокислоты. Организм может синтезировать около 10 аминокислот для обеспечения биологических потребностей, поэтому поступление их с пищей не обязательно (аланин, аспарагин, аспартат, цистеин, глутамат, глутамин, глицин, пролин, серин, тирозин). Аминокислоты являются производными карбоновых кислот с общей формулой NH2-R-COOH. R – углеводородный радикал, который также может содержать другие элементы. Чаще всего это сера или фосфор. Аминокислота может включать несколько аминогрупп. В зависимости от положения аминогруппы. Атомы углерода, образующие аминокислоту, принято обозначать по порядку греческими буквами, считая от карбоксильной группы (сама она в счет не идет). Таким образом, первый атом углерода после карбоксила - это альфа-атом, второй - бета-атом, третий - гамма-атом и так далее. В состав белков входят только альфа-аминокислоты. Кроме указанных, существуют и другие аминокислоты, обнаруживаемые в составе белков. В процессе синтеза белков они не участвуют, а синтезируются из протеиногенных аминокислот, уже находящихся в составе белковой цепи. Это нестандартные аминокислоты. По строению радикала. Алифатические (гли, ала, вал, лей, иле). Гидроксиаминокислоты (сер, тре). Дикарбоновые (асп, глу). Амиды дикарбоновых кислот (асн, глн). Серосодержащие (мет, цис). Циклические (фен, тир, три, гис). Диаминомонокарбоновые (лиз, арг). Иминокислота (про). По кислотно-основным свойствам. Нейтральные. Кислые. Основные. По полярности радикала. Неполярные (ала, вал, лей, мет, про, иле, три, фен). Полярные: незаряженные (сер, тре, цис, гли, тир,асн, глн); заряженные: отрицательно заряженные (глу, асп); положительно заряженные (лиз, арг, гис). Нестандартные АК в составе белков: гамма-карбоксиглутаминовая кислота (протромбин: свертывание крови); 4-гидроксипролин, 5-гидроксилизин (белок соединительной ткани: коллаген); десмозин (конденсация 4-х молекул лизина: белок соединительной ткани — эластин); дийодтирозин (гормоны щитовидной железы).
7. Кооперативный эффект связывания кислорода гемоглобином..
Ответ.
Взаимовлияние протомеров олигомерного
белка друг на друга называется
кооперативное взаимодействие. В легких
такое взаимодействие субъединиц
гемоглобина повышает его сродство к
кислороду и ускоряет присоединение
кислорода в 300 раз. В тканях идет обратный
процесс, сродство снижается и ускорение
отдачи кислорода также 300-кратное.
Объясняется такой феномен тем, что в
легких при присоединении первой молекулы
кислорода к железу (за счет 6-й
координационной связи) атом железа
втягивается в плоскость гема, кислород
остается вне плоскости. Это вызывает
перемещение участка белковой цепи и
изменение конформации первого протомера.
Такой измененный протомер влияет на
другие субъединицы и облегчает связывание
кислорода со второй субъединицей. Это
меняет конформацию второй субъединицы,
облегчая присоединение последующих
молекул кислорода и изменение других
протомеров. Дезоксиформа гемоглобина
обозначается как Т-форма, напряженная,
она обладает существенно более низким
сродством к кислороду. Оксигенированная
форма, или R-форма, обладает высоким
сродством к кислороду. Влияние рН на
сродство гемоглобина к кислороду носит
название эффекта Бора. При закислении
среды сродство снижается, при защелачивании
– повышается. При повышении концентрации
протонов (закисление среды) в тканях
возрастает освобождение кислорода из
оксигемоглобина. В легких после удаления
угольной кислоты (в виде СО2) из крови и
одновременном увеличении концентрации
кислорода высвобождаются ионы Н+ из
гемоглобина. Реакция взаимодействия
кислорода с гемоглобином упрощенно
имеет вид:
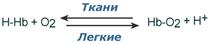 Изменение
сродства гемоглобина к кислороду в
тканях и в легких при изменении
концентрации ионов H+ и О2 обусловлено
конформационными перестройками
глобиновой части молекулы. В тканях
молекула О2 отрывается от железа и ионы
водорода присоединяются к остаткам
гистидина (глобиновой части), образуя
восстановленный гемоглобин (H-Hb) с низким
сродством к кислороду. В легких поступающий
в больших количествах кислород "вытесняет"
ион водорода из связи с остатком гистидина
гемоглобиновой молекулы. 2,3-Дифосфоглицерат
образуется в эритроцитах из
1,3-дифосфоглицерата, промежуточного
метаболита гликолиза, в реакциях,
получивших название шунт Раппопорта.
2,3-Дифосфоглицерат располагается в
центральной полости тетрамера
дезоксигемоглобина и связывается с
β-цепями, образуя поперечный солевой
мостик между атомами кислорода
2,3-дифосфоглицерата и аминогруппами
концевого валина обеих β-цепей, также
аминогруппами радикалов лизина и
гистидина. Функция 2,3-дифосфоглицерата
заключается в снижении сродства
гемоглобина к кислороду, что имеет
особенное значение при подъеме на высоту
и при нехватке кислорода во вдыхаемом
воздухе. В этих условиях связывание
кислорода с гемоглобином в легких не
нарушается, так как концентрация его
относительно высока. Однако в тканях
за счет 2,3-дифосфоглицерата отдача
кислорода возрастает в 2 раза.
8. Отличия ферментов от неорганических катализаторов.
Ответ. Ферменты по сравнению с неорганическими катализаторами обладают специфичностью действия к субстрату и наиболее высокой эффективностью. Благодаря ферментам реакция протекает быстрее в миллионы раз. Ферменты способны работать в ограниченном диапазоне температур (как правило, 37С). Скорость действия неорганических катализаторов с каждым увеличением температуры на 10 градусов повышается в 2-4 раза. Ферменты подвергаются регуляции (существуют ингибиторы и активаторы ферментов). Неорганическим катализаторам свойственна нерегулируемая работа. Для ферментов характерна конформационная лабильность (их структура подвергается незначительным изменениям, образующимся в процессе разрыва старых связей и образования новых связей, прочность которых слабее). Реакции с участием ферментов протекают лишь в физиологических условиях. Ферменты способны работать внутри организма, его тканей и клеток, где создаются необходимый температурный режим, давление и рН. Ферменты – высокомолекулярные белковые тела, они довольно специфичны. Ферменты способны катализировать всего лишь один-единственный тип реакции. Они являются катализаторами биохимических реакций. Неорганические катализаторы ускоряют разные реакции. Ферменты обладают специфичностью. Различают несколько видов специфичности. Абсолютная специфичность – фермент взаимодействует только с одним субстратом. Например, уреаза ускоряет гидролиз мочевины, но не расщепляет тиомочевину. Стереоспецифичность – фермент взаимодействует с определенным оптическим и геометрическим изомером. Абсолютная групповая специфичность – ферменты специфичны в отношении характера связи, а также тех соединений, которые образуют эту связь. Например, α-амилаза расщепляет α-гликозидную связь в молекуле мальтозы, состоящей из двух молекул глюкозы, но не расщепляет молекулу сахарозы, состоящую из молекулы глюкозы и молекулы фруктозы. Относительная групповая специфичность. В этом случае ферменты специфичны только в отношении связи, но безразличны к тем соединениям, которые образуют эту связь. Например, протеазы ускоряют гидролиз пептидных связей в различных белках, липазы ускоряют расщепление сложноэфирных связей в жирах.
6. Четвертичная структура белка. Понятия о денатурации и деструкции.
Ответ. Четвертичная структура — способ укладки в пространстве отдельных полипептидных цепей, обладающих одинаковой (или разной) первичной, вторичной или третичной структурой, и формирование единого в структурном и функциональном отношениях макромолекулярного образования. Специфичность четвертичной структуры белков проявляется в определенной конформационной автономии полипептидных фрагментов, входящих в состав макромолекулы белка. Вклад гидрофобных взаимодействий в стабилизацию третичной и четвертичной структуры белков весьма значителен: в случае третичной структуры на их долю приходится больше половины стабилизирующей силы. Примеры белков с четвертичной структурой включают гемоглобин, ДНК-полимеразу, ионные каналы. Номенклатура белков с четвертичной структурой также особая. Числа субъединиц в олигомерном комплексе описываются с помощью имен, которые заканчиваются на -мер (по-гречески «части, подразделения»). Хотя комплексы выше, чем октамер, редко наблюдаются у большинства белков, существует несколько исключений: вирусный капсид; протеосомы (четыре гептамерных кольца = 28 субъединиц), транскрипционный комплекс и сплайсосома. Рибосомы — крупнейшие молекулярные машины, состоящие из множества РНК и белковых молекул. В некоторых случаях белки образуют комплексы, которые затем собираются в еще большие комплексы. Четвертичная структура белков имеет отношение к существованию изоферментов. Особенно хорошо изучен в этом отношении благодаря исследованиям Каплана, Маркерта и их сотрудников фермент лактатдегидрогеназы; этот фермент был выделен из организма цыплёнка в двух основных формах, из которых одна характерна для скелетных мышц, а другая — для сердечной мышцы. Эти две формы заметно отличаются друг от друга как по аминокислотному составу, так и по некоторым физическим, иммунологическим и каталитическим свойствам. Четвертичная структура белков варьируется очень широко. На некоторых электронных микрофотографиях ясно видны агрегаты белковых молекул, однако их тонкую структуру установить не удаётся. Белки четвертичной структуры могут быть определены с использованием различных экспериментальных методов, которые требуют образца белка в различных экспериментальных условиях. Эксперименты часто обеспечивают оценку массы нативного белка и, вместе со знанием массы и/или стехиометрии субъединицы, позволяют предположить четвертичную структуру. Число субъединиц в белковом комплексе часто может быть определено путём измерения гидродинамического молекулярного объёма или массы интактного комплекса. Некоторые методы биоинформатики были разработаны для прогнозирования признаков четвертичной структуры белков на основе информации об их последовательности. Разрушение структуры белка и потеря им своих нативных свойств (биологических, физико-химических) называется денатурацией. Осажденный денатурированный белок, в отличие от белка, осажденного путём высаливания, утрачивает свои нативные свойства. Денатурирующие факторы делятся на: физические (температура, радиация, ультрафиолетовое излучение); механические (вибрация и т.д.); химические (концентрированные кислоты, щелочи, соли тяжелых металлов и т.д.). При непродолжительном действии и быстром удалении денатурирующих агентов возможна ренатурация белка с полным восстановлением исходной трехмерной структуры и нативных свойств его молекулы. Денатурация используется для определения белка в моче при заболеваниях почек (пиелонефрите), мочевого пузыря (цистите), предстательной железы (простатите), а также при отравлении солями тяжелых металлов. Деструкция. При длительной тепловой обработке белки подвергаются более глубоким изменениям, связанным с разрушением их макромолекул. На первом этапе изменений от белковых молекул могут отщепляться функциональные группы с образованием таких летучих соединений, как аммиак, сероводород, фосфористый водород, углекислый газ и др. Накапливаясь в продукте, они участвуют в образовании вкуса и аромата готовой продукции. При дальнейшей гидротермической обработке белки гидролизуются, при этом первичная (пептидная) связь разрывается с образованием растворимых азотистых веществ небелкового характера (например, переход коллагена в глютин).
4. Вторичная структура белка. Альфа- спираль и бета – складчатый слой.
Ответ. Вторичная структура белка — локальная конформация, обусловленная вращением отдельных участков полипептидной цепи вокруг одинарных ковалентных связей. Основные связи, которые стабилизируют вторичную структуру, — водородные. Виды вторичной структуры: α-спираль (правозакрученная); β-структура: β-слой, β-поворот. α-спирали — плотные витки вокруг длинной оси молекулы. Один виток составляет 3,6 аминокислотных остатка, шаг спирали равен 0,54 нм (на один аминокислотный остаток приходится 0,15 нм). Спираль стабилизирована водородными связями между H и O пептидных групп, отстоящих друг от друга на 4 звена. Хотя α-спираль может быть как левозакрученной, так и правозакрученной, в белках преобладает правозакрученная. Спираль нарушают электростатические взаимодействия глутаминовой кислоты, лизина, аргинина. Расположенные близко друг к другу остатки аспарагина, серина, треонина и лейцина могут стерически мешать образованию спирали, остатки пролина вызывают изгиб цепи и тоже нарушают α-спирали; β-листы (складчатые слои) — несколько зигзагообразных полипептидных цепей, в которых водородные связи образуются между относительно удалёнными друг от друга (0,34 нм на аминокислотный остаток) аминокислотами в первичной структуре или разными цепями белка (а не близко расположенными, как в α-спирали). Эти цепи обычно направлены N-концами в противоположные стороны (антипараллельная ориентация) или в одну сторону (параллельная β-структура). Также возможно существование смешанной β-структуры, состоящей из параллельной и антипараллельной β-структур. Для образования β-листов важны небольшие размеры боковых групп аминокислот, преобладают обычно глицин и аланин.
5. Третичная структура белка и силы ее стабилизирующие.
Ответ. Третичная структура — пространственное строение полипептидной цепи. Структурно состоит из элементов вторичной структуры, стабилизированных различными типами взаимодействий, в которых гидрофобные взаимодействия играют важнейшую роль. В стабилизации третичной структуры принимают участие: ковалентные связи (между двумя остатками цистеина — дисульфидные мостики); ионные связи между противоположно заряженными боковыми группами аминокислотных остатков; водородные связи; гидрофобные взаимодействия. При взаимодействии с окружающими молекулами воды белковая молекула сворачивается так, чтобы неполярные боковые группы аминокислот оказались изолированы от водного раствора; на поверхности молекулы оказываются полярные гидрофильные боковые группы. Исследования принципов укладки белков показали, что между уровнем вторичной структуры и атомарной пространственной структурой удобно выделять ещё один уровень — мотив укладки (архитектура, структурный мотив). Мотив укладки определяется взаимным расположением элементов вторичной структуры (α-спиралей и β-тяжей) в пределах белкового домена — компактной глобулы, которая может существовать или сама по себе или входить в состав более крупного белка наряду с другими доменами. Известно, что мотивы укладки являются довольно консервативными и встречаются в белках, которые не имеют ни функциональных, ни эволюционных связей. Определение мотивов укладки лежит в основе физической, или рациональной классификации белков (такой как CATH или SCOP). Для определения пространственной структуры белка применяют методы рентгеноструктурного анализа, ядерного магнитного резонанса и некоторые виды микроскопии.