Материал: Биохимия теория
15. Активный центр фермента и его свойства.
Ответ. В процессе формирования фермент-субстратного комплекса субстрат присоединяется к специфическому участку на молекуле фермента, который называется активным центром. Активный центр – участок молекулы фермента, который связывает субстраты и от которого зависит специфичность каталитического действия ферментов; активный центр содержит функциональные группы остатков аминокислот и коферментов, пространственно сближенных и определённым образом ориентированных. Несмотря на огромное разнообразие структуры ферментов, их специфичности и механизма действия, существует ряд общих закономерностей формирования активных центров. Во-первых, на активный центр приходится относительно малая часть объёма фермента. Роль остальных аминокислотных остатков, составляющих основную массу фермента, состоит в том, чтобы обеспечить молекуле фермента правильную глобулярную форму. Во-вторых, активный центр – это сложная трёхмерная структура, и в её образовании принимают участие группы, принадлежащие разным частям линейной последовательности аминокислот. Радикалы аминокислот, образующих активный центр, оказываются вблизи друг от друга в результате формирования третичной структуры белка. Поэтому при воздействии факторов, вызывающих денатурацию (нагревание, концентрированные кислоты и щёлочи) утрачивается конформация активного центра и фермент теряет свою активность. В-третьих, активный центр имеет форму узкого углубления или щели, в которую ограничен доступ воде, за исключением тех случаев, когда вода является одним из реагирующих веществ. В этом углублении присутствует несколько полярных аминокислотных остатков, необходимых для связывания субстрата и катализа. В-четвёртых, в составе активного центра можно условно выделить две части: а) контактный или якорный участок, где происходит связывание субстрата в нужной ориентации; б) каталитический участок, обеспечивающий протекание реакции. В-пятых, субстраты относительно слабо связываются с ферментами. В связывании и превращении субстрата принимают участие следующие группировки аминокислотных радикалов: полярные заряженные: карбоксильные группы глутамата и аспартата, аминогруппы лизина; гуанидиновые группы аргинина; имидазольные группы гистидина; полярные незаряженные: гидроксильные группы серина и треонина; сульфгидрильные группы цистеина; фенольные группы тирозина; неполярные группы: углеводородные цепи алифатических аминокислот; ароматические кольца фенилаланина и триптофана. У сложных ферментов в формировании активных центров принимают участие также функциональные группы коферментов. В образовании фермент-субстратных комплексов принимают участие те же молекулярные взаимодействия, что и обеспечивают формирование пространственной структуры макромолекул, межклеточные контакты и другие процессы в биологических системах: водородные связи между полярными незаряженными группировками субстрата и фермента; ионные связи между противоположно заряженными группировками субстрата и фермента; гидрофобные взаимодействия между неполярными группировками субстрата и фермента. Эти три основных типа нековалентных связей различаются по своей геометрии, энергии, специфичности. Коферменты относятся к сложным органическим веществам, их молекулы значительно меньше по размеру, чем молекулы ферментов. Коферменты могут проникать через биологические мембраны, нагревание обычно не вызывает изменения их структуры. Функцией кофермента является участие в катализируемой реакции, причём количество фермента и его химическое строение внешне остаются неизменными. В действительности кофермент является одним из субстратов ферментативной реакции, т.е. выступает как косубстрат. В ходе реакции кофермент претерпевает химические превращения, в точности противоположные тем, которые происходят в субстрате. Например, в окислительно-восстановительных реакциях молекула субстрата окисляется, а молекула кофермента восстанавливается. При последующих сопряжённых реакциях изменения в коферменте протекают в обратном направлении и он воспроизводится в первоначальной форме. Таким образом, коферменты могут быть охарактеризованы как переносчики определённых атомов, электронов или химических групп на соответствующий акцептор. Строение апофермента определяет специфичность этой реакции, а строение кофермента – её тип.
16. Кофакторы и коферменты. Классификация.
Ответ. Кофактор — небольшое небелковое (и не производное от аминокислот) соединение (чаще всего ион металла), которое присоединяется к функциональному участку белка и участвует в его биологической деятельности. Такие белки обычно являются ферментами, поэтому кофакторы называют «молекулами-помощниками», которые участвуют в биохимических превращениях. Кофакторы классифицируются на неорганические ионы и комплексные органические молекулы, называемые коферментами. Последние обычно являются производными от витаминов. Кофактор, который прочно связан с белком (например, ковалентно), называют простетической группой. Неактивный фермент без кофактора называют апоферментом, а фермент вкупе с кофактором — холоферментом. Только в комплексе с кофактором фермент приобретает свои активные свойства и способен участвовать в реакциях. Часто кофакторами являются ионы металлов. Поэтому в небольших количествах они должны поступать в организм с пищей. Для человека список основных металлов включает железо, марганец, магний, кобальт, медь, цинк, молибден. Хотя дефицит хрома и вызывает нарушение толерантности к глюкозе, не было найдено ни одного фермента, использующего хром как кофактор. Ещё одним жизненно необходимым элементом для человека является кальций, но кальций связывается с ферментами не в виде иона, а как белок кальмодулин. Медь - Цитохром с-оксидаза, железо – Каталаза, магний - Глюкозо-6-фосфатаза, никель – Уреаза, цинк – Алкогольдегидрогеназа. Железосерные кластеры — это комплексы железа и серы, связанные с белками. Они играют важную роль в транспорте электронов, окислительно-восстановительных реакциях, и как структурные блоки. Органические кофакторы или Коферменты — вещества, предшественниками которых являются витамины. Коферменты резко специфичны к определенным реакциям, т.к. имеют определенную структуру. К коферментам относятся биотин (витамин Н), ацетил-S-КоА (пантотеновая кислота), никотинамидные коферменты (ниацин) и др. Коферменты вместе с функциональными группами аминокислотных остатков фермента формируют активный центр фермента, на котором происходит связывание с субстратом и образование активированного фермент-субстратного комплекса. Комплекс кофермента и апофермента образует целостную, биологически активную молекулу фермента, называемую холоферментом. Наиболее распространенную группу составляют соединения нуклеотидной природы, а также коферменты, содержащие остатки фосфорной кислоты. Роль коферментов нередко играют витамины или их метаболиты (чаще всего — фосфорилированные формы витаминов группы B). Например, коферментом фермента карбоксилазы является тиаминпирофосфат, коферментом многих аминотрансфераз — пиридоксаль-6-фосфат. В металлоферментах роль, аналогичную роли коферментов, могут исполнять катионы металлов, однако коферментами их обычно не называют. Коферменты обычно непрерывно синтезируются, и их концентрация поддерживается на постоянном уровне внутри клетки. Например, НАДФ «пополняется» через пентозофосфатный путь и S-аденозилметионин с помощью метионинаденозилтрансферазы. Непрерывный синтез означает, что небольшие количества коферментов могут использоваться очень интенсивно. Например, человеческое тело переворачивает свой собственный жир в АТФ каждый день. ТИАМИНОВЫЕ (производные витамина В1): ТМФ - тиаминмонофосфат; ТДФ - тиаминдифосфат; ТТФ - тиаминтрифосфат. ФЛАВИНОВЫЕ (витамин В2): ФМН - флавинмононуклеотид; ФАД - флавинадениндинуклеотид. НИКОТИНАМИДНЫЕ (витамин РР): НАД - никотинамидадениндинуклеотид; НАДФ - никотинамиддинуклеотидфосфат. ПАНТОТЕИНОВЫЕ (витамин В5): KOF A (HS-KOA - HS, коэнзим А); ПИРИДОКСИНОВЫЕ (витамин В6): ПФ - пиридоксальфосфат; ПАФ – пиридоксаминофосфат.
17. Молекулярные механизмы ферментативного катализа.
Ответ. Механизмы ферментативного катализа определяются ролью функциональных групп активного центра фермента в химической реакции превращения субстрата в продукт. Выделяют 2 основных механизма ферментативного катализа: кислотно-основной катализ; ковалентный катализ. Концепция кислотно-основного катализа объясняет ферментативную активность участием в химической реакции кислотных групп (доноры протонов) и/или основных групп (акцепторы протонов). Кислотно-основной катализ - часто встречающееся явление. Аминокислотные остатки, входящие в состав активного центра, имеют функциональные группы, проявляющие свойства как кислот, так и оснований. К аминокислотам, участвующим в кислотно- основном катализе, в первую очередь относят цистеин, тирозин, серин, лизин, глутаминовая кислота, аспарагиновая кислота, гистидин. Радикалы этих аминокислот в протонированной форме - кислоты (доноры протона), в депротонированной - основания (акцепторы протона). Благодаря этому свойству функциональных групп активного центра ферменты становятся уникальными биологическими катализаторами, в отличие от небиологических катализаторов, Примером кислотно-основного катализа, в котором кофакторами являются ионы Zn2+, а в качестве кофермента используется молекула NAD+, можно привести фермент алкогольдегидрогеназу печени, катализирующую реакцию окисления спирта: С2Н5ОН + NAD+ → СН3-СОН + NADH + H+. Ковалентный катализ основан на атаке нуклеофильных (отрицательно заряженных) или электрофильных (положительно заряженных) групп активного центра фермента молекулами субстрата с формированием ковалентной связи между субстратом и коферментом или функциональной группой аминокислотного остатка (как правило, одной) активного центра фермента. Действие сериновых протеаз, таких как трипсин, химотрипсин и тромбин, - пример механизма ковалентного катализа, когда ковалентная связь образуется между субстратом и аминокислотным остатком серина активного центра фермента. Термин "сериновые протеазы" связан с тем, что аминокислотный остаток серина входит в состав активного центра всех этих ферментов и участвует непосредственно в катализе. Рассмотрим механизм ковалентного катализа на примере химотрипсина, осуществляющего гидролиз пептидных связей при переваривании белков в двенадцатиперстной кишке. Субстратами химотрипсина служат пептиды, содержащие аминокислоты с ароматическими и циклическими гидрофобными радикалами (Фенилаланин, Тирозин, Триптофан), что указывает на участие гидрофобных сил в формировании фермент-субстратного комплекса.
18. Способы определения активности фермента. Единицы измерения. Понятие об удельной и молярной активности.
Ответ. Для определения ферментативной активности используют следующие методы. Химический метод – количественное определение субстрата или продуктов с помощью химических реагентов (О-гликозилгидролазы – по образованию восстанавливающих сахаров). Спектрофотометрический метод – измерение скорости ферментативной реакции по изменению поглощения субстрата при характеристической длине волны (лиазы – по образованию двойной связи). Манометрический метод – определение количества газа, выделяющегося в процессе реакции (оксидазы – по поглощению О2, декарбоксилазы – по выделению СО2). Поляриметрический метод – фиксируется изменение оптического вращения (β-фруктофуранозидаза). Хроматографический – количественное определение субстрата или продуктов с помощью различных видов хроматографии: бумажной (анализ сахаров), тонкослойной (гликозидов со сложными агликонами), ВЭЖХ (аминокислотный анализ и др.). Катал — это количество фермента, которое обеспечивает превращение 1 моля субстрата в продукт за 1 секунду. Стандартная единица (U) — это количество фермента, которое превращает 1 мкмоль субстрата в продукт за 1 минуту. 1 U = 16,67 нкатал (нанокатал). В медицине активность ферментов выражают чаще всего в единицах активности на 1 л биологической жидкости. Удельная активность — выражается в единицах активности, рассчитанной на единицу массы белка (чаще всего на 1 мг). Для выражения активности в практической работе с ферментами часто пользуются произвольными понятиями удельной и молярной активности. Удельную активность фермента принято выражать числом единиц ферментативной активности на 1 мг белка (или числом каталов на 1 кг активного белка). Количество молекул субстрата, подвергающихся превращению одной молекулой фермента в продукт в процессе реакции в единицу времени при полном насыщении фермента субстратом, принято называть числом оборотов фермента, или молярной активностью (молярная каталитическая активность выражается в каталах на 1 г-моль фермента). Одна молекула каталазы эритроцитов способна, например, расщепить в 1 с 44000 молекул перекиси водорода. Принципы определения активности ферментов: по скорости исчезновения субстрата; по скорости накопления продуктов реакции.
20. Изоферменты.
Ответ.
Изоферменты
– это множественные формы одного
фермента, катализирующие одну и ту же
реакцию, но отличающие по физическим и
химическим свойствам (сродству к
субстрату, максимальной скорости
катализируемой реакции, электрофоретической
подвижности, разной чувствительности
к ингибиторам и активаторам, оптимуму
рН и термостабильности). Изоферменты
имеют четвертичную структуру, которая
образована четным количеством субъединиц
(2, 4, 6 и т.д.). Изоформы фермента образуются
в результате различных комбинаций
субъединиц. В качестве примера можно
рассмотреть лактатдегидрогеназу (ЛДГ),
фермент, который катализирует обратимую
реакцию: пируват ←ЛДГ→ лактат. ЛДГ
существует в виде 5 изоформ, каждая из
которых состоит из 4-х протомеров
(субъединиц) 2 типов М (muscle) и Н (heart). Синтез
протомеров М и Н типа кодируется двумя
разными генетическими локусами.
Изоферменты ЛДГ различаются на уровне
четвертичной структуры: ЛДГ1(НННН),
ЛДГ2(НННМ), ЛДГ3(ННММ), ЛДГ4(НМММ), ЛДГ5(ММММ).
Полипептидные цепи Н и М типа имеют
одинаковую молекулярную массу, но в
составе первых преобладают карбоновые
аминокислоты, последних – диаминокислоты,
поэтому они несут разный заряд и могут
быть разделены методом электрофореза.
Кислородный обмен в тканях влияет на
изоферментный состав ЛДГ. Где доминирует
аэробный обмен, там преобладают ЛДГ1,
ЛДГ2 (миокард, надпочечники), где анаэробный
обмен - ЛДГ4, ЛДГ5(скелетная мускулатура,
печень). В процессе индивидуального
развития организма в тканях происходит
изменение содержания кислорода и изоформ
ЛДГ. У зародыша преобладают ЛДГ4, ЛДГ5.
После рождения в некоторых тканях
происходит увеличение содержания ЛДГ1,
ЛДГ2. Существование изоформ повышает
адаптационную возможность тканей,
органов, организма в целом к меняющимся
условиям. По изменению изоферментного
состава оценивают метаболическое
состояние органов и тканей. Изоформы
креатинкиназы. Креатинкиназа (КК)
катализирует реакцию образования
креатинфосфата:
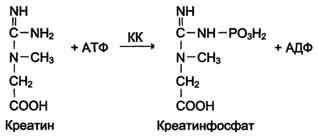 Молекула
КК - димер, состоящий из субъединиц двух
типов: М (от англ, muscle - мышца) и В (от англ,
brain - мозг). Из этих субъединиц образуются
3 изофермента - ВВ, MB, MM. Изофермент ВВ
находится преимущественно в головном
мозге, ММ - в скелетных мышцах и MB - в
сердечной мышце. Изоформы КК имеют
разную электрофоретическую подвижность.
Активность КК в норме не должна превышать
90 МЕ/л. Определение активности КК в
плазме крови имеет диагностическое
значение при инфаркте миокарда (происходит
повышение уровня МВ-изоформы). Количество
изоформы ММ может повышаться при травмах
и повреждениях скелетных мышц. Изоформа
ВВ не может проникнуть через
гематоэнцефалический барьер, поэтому
в крови практически не определяется
даже при инсультах и диагностического
значения не имеет.
21. Моносахариды. Представители и свойства. Функции углеводов.
Ответ.
Моносахариды (монозы) являются
бифункциональными соединениями. В их
молекулах одновременно содержатся
карбонильная (альдегидная или кетонная)
и несколько гидроксильных групп, т. е.
моносахариды представляют собой
полигидроксикарбонильные соединения
— полигидроксиальдегиды и полигидроксикетоны.
В зависимости от этого моносахариды
подразделяются на альдозы (в моносахариде
содержится альдегидная группа) и кетозы
(содержится кетогруппа). Например,
глюкоза — это альдоза, а фруктоза — это
кетоза. В зависимости от числа атомов
углерода в молекуле моносахарид
называется тетрозой, пентозой, гексозой
и т. д. Если объединить последние два
типа классификации, то глюкоза — это
альдогексоза, а фруктоза — кетогексоза.
Большинство встречающихся в природе
моносахаридов — это пентозы и гексозы.
Моносахариды являются углеводами,
которые не гидролизуются с образованием
более простых углеводов. Глюкоза,
или виноградный сахар, входит в состав
сока многих фруктов и ягод, в том числе
винограда, и является самым распространённым
углеводом. Глюкоза относится к шестиатомным
моносахаридам, то есть относится к ряду
гексоз. В свободном виде глюкоза
содержится в плодах, цветах и других
органах растений, в мёде, а также в
животных тканях (в крови, мозге, мышцах).
В природе глюкоза существует преимущественно
в виде Д–изомера и является важнейшим
источником энергии в организмах животных,
человека и микроорганизмов. Глюкоза —
бесцветное кристаллическое вещество
сладкого вкуса, хорошо растворимое в
воде. Растворы глюкозы используются в
медицине для внутривенных инъекций,
так как обеспечивают дополнительное
питание организма быстро усваиваемыми
углеводами. Повышение концентрации
глюкозы в крови приводит к усилению
выработки гормона поджелудочной железы
— инсулина, отвечающего за быстрый
метаболизм углеводов в организме. В
организме глюкоза подвергается сложным
биохимическим превращениям, в результате
которых образуется углекислый газ и
вода и выделяется энергия в соответствии
с итоговым уравнением:
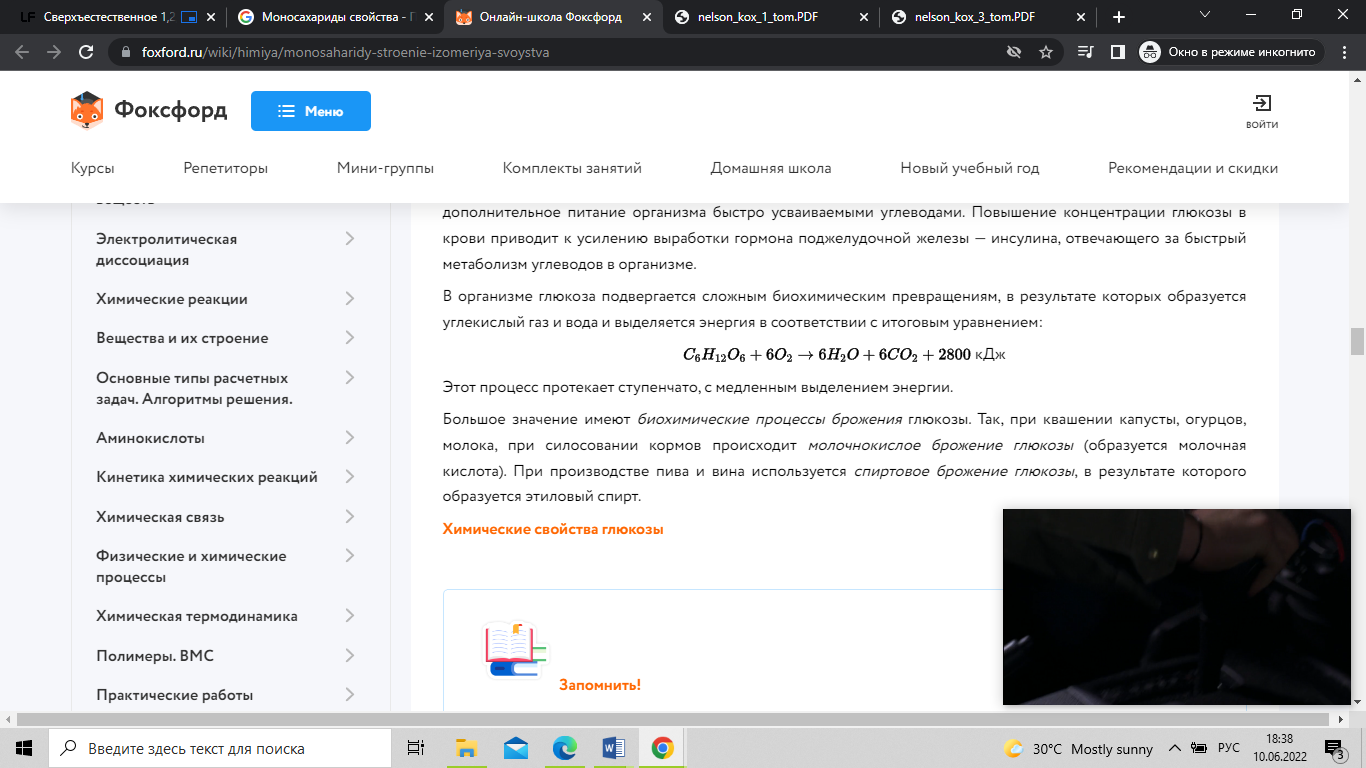 Этот процесс протекает ступенчато, с
медленным выделением энергии. Большое
значение имеют биохимические процессы
брожения глюкозы. Так, при квашении
капусты, огурцов, молока, при силосовании
кормов происходит молочнокислое брожение
глюкозы (образуется молочная кислота).
При производстве пива и вина используется
спиртовое брожение глюкозы, в результате
которого образуется этиловый спирт.
При взаимодействии глюкозы со спиртами
образуются простые эфиры:
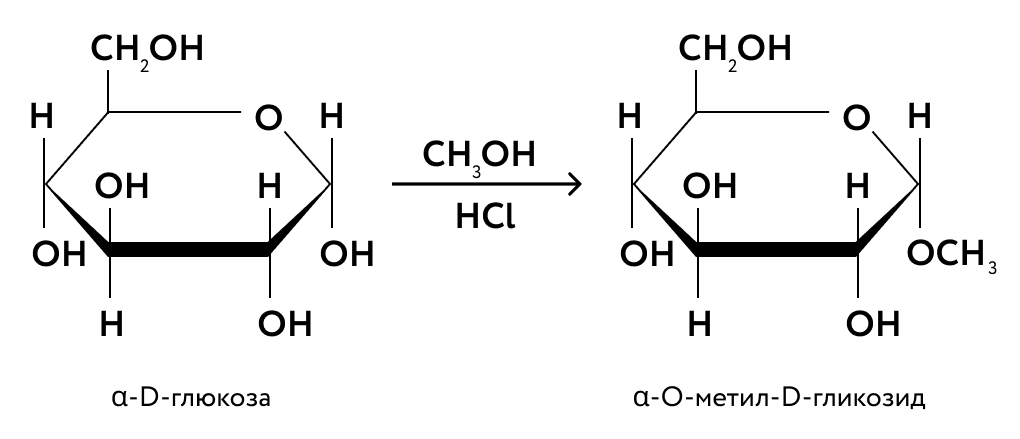 Глюкоза
реагирует с карбоновыми кислотами с
образованием сложных эфиров, то есть
пять гидроксильных групп глюкозы
вступают в реакцию с кислотами аналогично
спиртам. Как многоатомный спирт реагирует
без нагревания с гидроксидом меди (2) c
образованием алкоголята меди (2)
ярко-синего цвета (качественная реакция
на многоатомные спирты). Глюкоза легко
окисляется до глюконовой кислоты под
действием гидроксида меди (2) при
нагревании, в результате чего образуется
также оксид меди) красного цвета. Глюкоза
легко вступает в реакцию «серебряного
зеркала», окисляясь под действием
аммиачного раствора оксида серебра
(1). Глюкоза способна окисляться под
действием азотной кислоты и с бромной
воды.
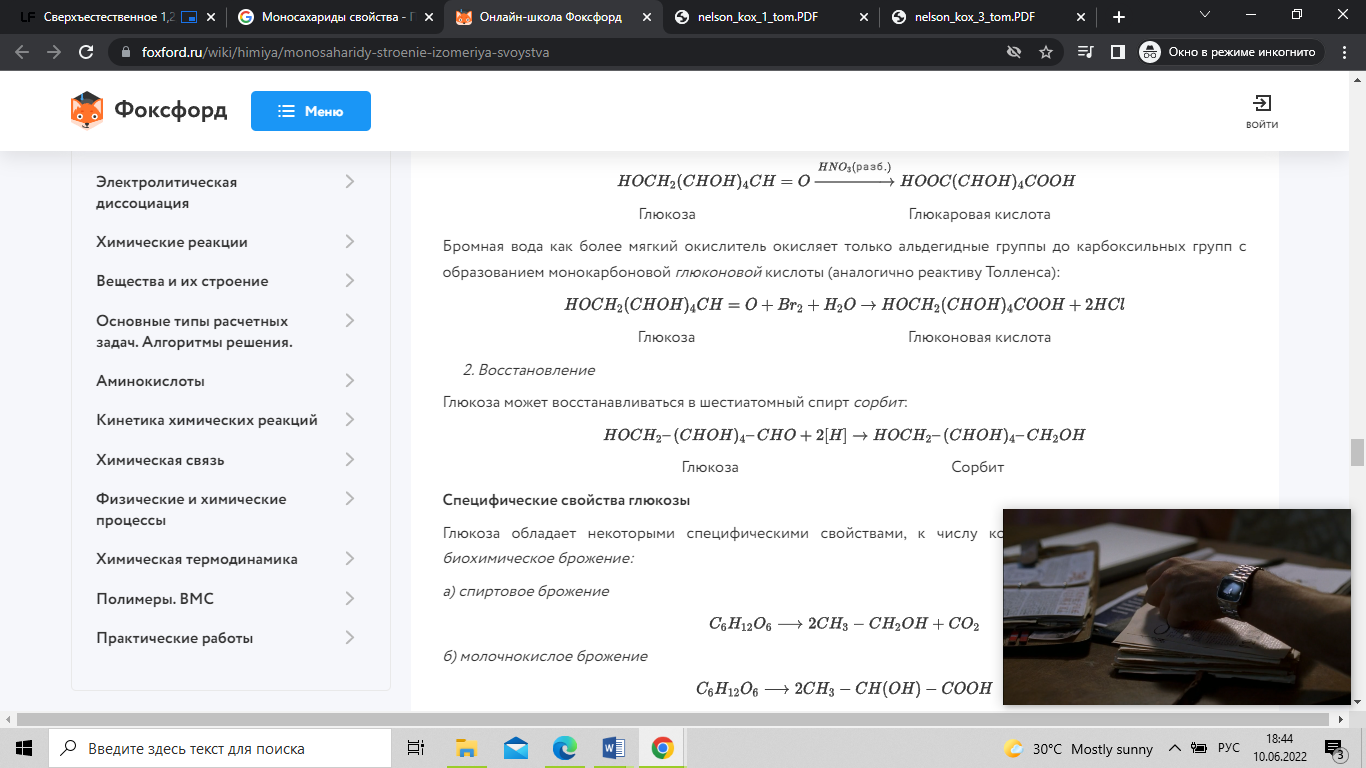 Азотная
кислота окисляет глюкозу до дикарбоновой
кислоты – глюкаровой (или сахарной)
кислоты.
Глюкоза
обладает некоторыми специфическими
свойствами.
Глюкоза может быть получена гидролизом природных веществ, в состав которых она входит. Её получают гидролизом картофельного и кукурузного крахмала кислотами. Фруктоза содержится во фруктах, в пчелином мёде, входит в состав сахара (сахарозы). Фруктоза является изомером глюкозы и имеет ту же молекулярную формулу. Она представляет собой кетогексозу, в которой кето-группа находится у второго углеродного атома в цепи. Фруктоза, как и глюкоза, существует в двух таутомерных формах — в открытой и замкнутой (циклической). От глюкозы фруктоза отличается меньшим размером цикла, который содержит не шесть, а пять атомов (включая кислород). Фруктоза хорошо растворима в воде и имеет более сладкий вкус, чем глюкоза. Поскольку фруктоза, как и глюкоза, является многоатомным спиртом, то вступает в те же реакции с участием гидроксильных групп. Особенностью фруктозы является невозможность окисления кетогруппы до кислоты. В живых организмах углеводы выполняют следующие функции. Структурная и опорная функции. Углеводы участвуют в построении различных опорных структур. Так, целлюлоза является основным структурным компонентом клеточных стенок растений, хитин выполняет аналогичную функцию у грибов, а также обеспечивает жёсткость экзоскелета членистоногих. Защитная роль у растений. У некоторых растений есть защитные образования (шипы, колючки и др.), состоящие из клеточных стенок мёртвых клеток. Пластическая функция. Углеводы входят в состав сложных молекул (например, пентозы (рибоза и дезоксирибоза) участвуют в построении АТФ, ДНК и РНК). Энергетическая функция. Углеводы служат источником энергии: при окислении 1 грамма углеводов выделяются 4,1 ккал энергии и 0,4 г воды. Запасающая функция. Углеводы выступают в качестве запасных питательных веществ: гликоген у животных, крахмал и инулин — у растений. Осмотическая функция. Углеводы участвуют в регуляции осмотического давления в организме. Так, в крови содержится 100—110 мг/л глюкозы, от концентрации глюкозы зависит осмотическое давление крови. Рецепторная функция. Олигосахариды входят в состав воспринимающей части многих клеточных рецепторов или молекул-лигандов.