Материал: Биохимия теория
3. Первичная структура белка. Характеристика пептидной связи.
Ответ. Первичная структура — это конфигурация полипептидной цепи, которая формируется в результате образования пептидной связи между остатками АК. Постулаты (принципы формирования пептидной связи), сформулированные Л. Поллингом и Р. Кори: атомы, образующие пептидную связь, копланарны (расположены в одной плоскости); вращение атомов или групп атомов вокруг пептидной связи невозможно; принцип эквивалентности вклада АК-остатков в образование пептидной связи и, тем самым, в образование полипептидной цепи (исключение пролин); принцип максимума водородных связей. Первичную структуру белка стабилизируют (поддерживают): пептидные связи (между АК-остатками); дисульфидные связи (между свободными –SH-группами цистеина). Первичная структура белка генетически детерминирована и несет информацию о его пространственной структуре. Пептидная связь имеет характеристику частично двойной связи, поэтому она короче, чем остальные связи пептидного остова, и вследствие этого мало подвижна. Электронное строение пептидной связи определяет плоскую жёсткую структуру пептидной группы. Плоскости пептидных групп расположены под углом друг к другу. Связь между α-углеродным атомом и α-аминогруппой или α-карбоксильной группой способна к свободным вращениям (хотя ограничена размером и характером радикалов), что позволяет полипептидной цепи принимать различные конфигурации. Пептидные связи обычно расположены в транс-конфигурации, т.е. α-углеродные атомы располагаются по разные стороны от пептидной связи. В результате боковые радикалы аминокислот находятся на наиболее удалённом расстоянии друг от друга в пространстве. Пептидные связи очень прочны и самопроизвольно не разрываются при нормальных условиях, существующих в клетках (нейтральная среда, температура тела). В лабораторных условиях гидролиз пептидных связей белков проводят в запаянной ампуле с концентрированной (6 моль/л) соляной кислотой, при температуре более 105 °С, причём полный гидролиз белка до свободных аминокислот проходит примерно за сутки. В живых организмах пептидные связи в белках разрываются с помощью специальных протеолитических ферментов (от англ, protein - белок, lysis - разрушение), называемых также протеазами, или пептидгидролазами. Для обнаружения в растворе белков и пептидов, а также для их количественного определения используют биуретовую реакцию (положительный результат для веществ, содержащих в своём составе не менее двух пептидных связей). Пептидами называются соединения, образованные из аминокислот с помощью пептидных связей. Условно считают, что пептиды содержат менее 50 АК, а более длинные полипептиды уже относят к белкам. В природе существует два вида пептидов, один из которых синтезируется и выполняет физиологическую роль в процессе жизнидеятельности организма, другой образуется за счет химического или ферментативного гидролиза белков в организме или вне его. Пептиды, образующиеся в процессе гидролиза вне организма (in vitro), широко используются для анализа аминокислотной последовательности белков. Ферментативное образование пептидов происходит в желудочно-кишечном тракте человека в процессе переваривания белков пищи. Оно начинается в желудке под действием пепсина, гастриксина и заканчивается в желудке под действием пепсина, гастриксина и заканчивается в кишечнике при участии трипсина, химотрипсина, амино- и карбоксипептидаз. Распад коротких пептидов завершается ди- и трипептидами с образованием свободных аминокислот, которые расходуются на синтез белков и других активных соединений. Пептиды часто являются гормонами (соматостатин, окситоцин, инсулин, гастрин). Пептиды – антибиотики (пенициллин, грамицидин).
9. Классификация ферментов с примерами реакций на каждый класс.
Ответ.
По типу катализируемых реакций ферменты
подразделяются на 6 классов согласно
иерархической классификации ферментов.
Каждый класс содержит подклассы, так
что фермент описывается совокупностью
четырёх чисел, разделённых точками.
Например, пепсин имеет название ЕС
3.4.23.1. Первое число грубо описывает
механизм реакции, катализируемой
ферментом: КФ
1:
Оксидоредуктазы,
катализирующие перенос электронов, то
есть окисление или восстановление.
Пример: каталаза, алкогольдегидрогеназа.
Реакции, катализируемые оксидоредуктазами,
в общем виде выглядят так: A− + B → A + B−.
Где A — восстановитель (донор электронов),
а B — окислитель (акцептор электронов)
В биохимических превращениях
окислительно-восстановительные реакции
иногда выглядят сложнее.
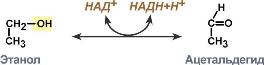 .
Здесь в качестве окислителя выступает
НАД+, а глицеральдегид-3-фосфат является
восстановителем. КФ
2:
Трансферазы,
катализирующие перенос химических
групп с одной молекулы субстрата на
другую. Среди трансфераз особо выделяют
киназы, переносящие фосфатную группу,
как правило, с молекулы АТФ. Реакции,
катализируемые трансферазами, в общем
случае выглядят так: A—X + B ↔ A + B—X.
Молекула A здесь выступает в качестве
донора группы атомов (X), а молекула B
является акцептором группы. Часто в
качестве донора в подобных реакциях
переноса выступает один из коферментов.
Многие из катализируемых трансферазами
реакций являются обратимыми.
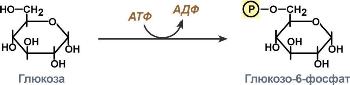 КФ
3:
Гидролазы,
катализирующие гидролиз химических
связей. Пример: эстеразы, пепсин, трипсин,
амилаза, липопротеинлипаза. Общий вид
реакции, катализируемой гидролазой,
выглядит следующим образом: A-B + H2O →
A-OH + B-H. Проявляют активность при наличии
неизменённых сульфгидрильных SH— групп,
если таковые занимают определённое
положение в полипептидной цепи.
Каталитическое действие заключается
в соединении гидролаз с расщепляемым
веществом и последующим отщеплением
продуктов реакции с высвобождением
самих гидролаз. Механизм имеет много
общего с действием трансфераз. Гидролазы
переносят отщепляемые группы на воду,
но некоторые способны переносить их и
на другие молекулы. Часть гидролаз
выделена в кристаллической форме
(уреаза, пепсин, трипсин, химотрипсин и
др.).
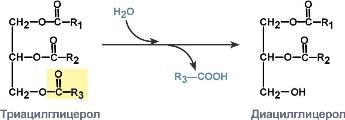 КФ
4:
Лиазы,
катализирующих реакции негидролитического
и неокислительного разрыва различных
химических связей (C—C, C—O, C—N, C—S и
других) субстрата, обратимые реакции
образования и разрыва двойных связей,
сопровождающиеся отщеплением или
присоединением групп атомов по её месту,
а также образованием циклических
структур.
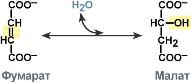 КФ
5:
Изомеразы,
катализирующие структурные или
геометрические изменения в молекуле
субстрата с образованием изомерных
форм.
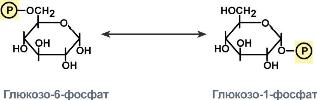 КФ
6:
Лигазы,
катализирующие образование химических
связей C—C, C—S, C—O и C—N между субстратами
за счёт реакций конденсации, сопряжённых
с гидролизом АТФ. Пример: лигаза
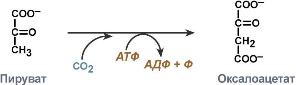 КФ
7:
Транслоказы,
катализирующие перенос ионов или молекул
через мембраны или их разделение в
мембранах. Например, при переносе
протонов из матрикса митохондрии в
межмембранное пространство через
комплекс I электрон-транспортной цепи
(7.1.1.2) происходит восстановление убихинона
до убихинола, и реакция описывается
следующей схемой: NADH
+ CoQ
+ 6 H+[side
1] = NAD+
+ CoQH2
+ 7 H+[side
2]. Второй пример — АТФ-синтаза,
катализирующая реакцию переноса протонов
из межмембранного пространства
митохондрии в матрикс с образованием
при этом молекулы АТФ из АДФ и
неорганического фосфата, реакция
описывается схемой[3]: АДФ + Фн + 4 H+[side
1] → АТФ + H2O
+ 4 H+[side
2]. Второе число в наименовании фермента
отражает подкласс, третье — подподкласс,
а четвёртая — порядковый номер фермента
в его подподклассе. Будучи катализаторами,
все ферменты ускоряют как прямую, так
и обратную реакции, поэтому, например,
лиазы способны катализировать и обратную
реакцию — присоединение по двойным
связям.
10. Влияние температуры, pH и концентрации фермента на скорость ферментативной реакции.
Ответ. Влияние количества субстрата: Кm - это концентрация субстрата, при которой скорость химической реакции составляет 1⁄2 от максимально возможной. Km для каждого энзима величина постоянная, она отражает сродство энзима и субстрата; Кm гексокиназы=0,1 мМ ⁄л, Кm глюкокиназы=10 мМ ⁄л. Биологических смысл различного сродства (Кm) гексокиназы и глюкокиназы к глюкозе и распределения этих ферментов по тканям (сохранение гомеостаза глюкозы). Количество фермента. Зависимость прямо пропорциональная, т.е. чем больше фермента в клетке, тем выше скорость ферментативной реакции. Количество энзима в клетке зависит от ее потребности в ферменте (гипотеза Жакоба и Моно. В покое в клетке функционирует лишь небольшая часть энзимов. В ситуации стресса в кинетике химической реакции участвует максимальное количество энзимов, что обеспечивает адаптацию клетки к экстремальным условиям. При увеличении температуры до 40С скорость ферментативной реакции возрастает (повышение температуры на 10С увеличивает скорость реакции в 1,5-2 раза), возрастание скорости ферментативной реакции при повышении температуры используется организмом как защитный механизм, понижение температуры (гипотермия организма и его отдельных тканей) используется в медицине для замедления ферментативных реакций при консервации органов и выполнении хирургических операций на «сухом» органе. Выше 40С скорость некоторых ферментативных реакций замедляется, т.к. начинается денатурация фермента. Каждый фермент проявляет максимальную активность при оптимальном для него значении рН среды. Оптимум рН среды для большинства ферментов лежит в нейтральной среде. Имеются исключения: пепсин – оптимум рН=1,5-2, щелочная фосфатаза – оптимум рН=9-10. Изменение рН в организме при патологиях нарушает функцию энзимов (изменяется степень ионизации функциональных групп активного и аллостерического центров и их архитектоника).
11. Влияние концентрации субстрата на скорость ферментативной реакции. Вывод уравнения Михаэлиса-Ментен.
Ответ.
Зависимость скорости ферментативной
реакции от концентрации субстрата носит
гиперболический характер. При постоянной
концентрации фермента скорость реакции
постепенно увеличивается достигая
максимума; когда дальнейшее увеличение
концентрации субстрата уже не влияет
на скорость реакции, в этом случае
говорят, что фермент насыщен, а субстрат
в избытке. Михаэлис и Ментен предположили,
что механизм ферментативных реакций
описывается моделью:
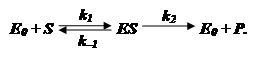 В которой скорость реакции определяется
распадом фермент-субстратного комплекса,
v0 = k2(ES). Модель предполагает, что равновесие
между свободными ферментом, субстратом
и фермент-субстратным комплексом
устанавливается быстро по сравнению
со скоростью реакции (быстро
устанавливающееся равновесие, k2<<
k1, k-1). В этом случае вторая стадия реакции
практически не влияет на первую, и для
выражения концентрации фермента можно
воспользоваться константой диссоциации.
Ks=(E)*(S)/(ES) ОТСЮДА (E)= Ks*(ES) /(S). Общая
концентрация фермента в реакционной
смеси выражается уравнением материального
баланса [E]0 = [E] + [ES] = [ES] (KS/[S] + 1). Тогда
концентрация фермент-субстратного
комплекса равна: [ES] = [E] 0*[S] / KS + [S]. Это
уравнение соответствует изотерме
адсорбции Ленгмюра, показывая, что
фермент действует как гетерогенный
катализатор. Реакция достигает
максимальной скорости, когда весь
фермент находится в комплексе с субстратом
Vmax=
k2[ES]max
= k2[E]0.
Это условие выполняется, если реакция
протекает при избыточной концентрации
субстрата: [S]0>>[E]0. Из уравнений
следует:
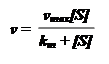 Это
и есть классическое уравнение
Михаэлиса-Ментен, которым и сегодня
пользуются для описания кинетики
ферментативных процессов. Михаэлис и
Ментен вывели уравнение с учетом двух
предположений (быстро устанавливающееся
равновесие и избыток субстрата). Позднее
было показано, что уравнение справедливо,
то есть хорошо описывает реакцию, при
выполнении всех следующих условий. 7
Основных постулатов
для выполнения уравнения Михаэлиса-Ментен.
В ходе реакции образуется кинетически
устойчивый фермент-субстратный комплекс.
Определяемая с помощью уравнения
константа Кs является константой
диссоциации фермент-субстратного
комплекса: это справедливо, только если
k2<< k1, k-1. Концентрация субстрата не
меняется в ходе реакции, то есть [S] =
[S]0. Продукт реакции быстро отщепляется
от фермента, то есть реакция двухстадийная.
Вторая стадия реакции необратима. Так
как это практически не выполнимо, мы
принимаем во внимание только начальные
скорости. C каждым активным центром
фермента связывается только одна
молекула субстрата. Для всех реагирующих
веществ вместо активностей можно
использовать их концентрации При
формулировке кинетического выражения
для скорости ферментативной реакции
Михаэлис и Ментен сделали три допущения:
1) Стационарное состояние реакции в
момент равновесия, когда скорости
образования и расходования ES равны; 2)
Весь фермент в условиях насыщающих
концентраций субстрата превращается
в энзимсубстратный комплекс ES; 3) Если
весь фермент в виде ES, то скорость реакции
максимальна и Vmax=k2[ES]. Образование ES:
[ES]=k1[S][E] (I) Расходование ES: [ES]=k-1[ES]+k2[ES]
(II) Приравнивая выражения (I) и (II) и
сокращая обе части на k1 получаем: [S][E] =
[ES](k-1 + k2)/k1 = [ES]Km, где Km = (k-1 + k2)/k1 Выразим
равновесную концентрацию [E] через
начальную [Eo]: [E] = [Eo] - [ES] [S]([Eo]-[ES])= [ES]Km,
переносим [S] в правую часть выражения
и делим обе части на [ES]: [Eo]/[ES]=Km/[S]+1=
(Km+[S])/[S] (III) Поскольку трудно (если не
невозможно) измерить [ES], произведем
замену с учетом того, что в насыщающих
концентрациях [S] весь [Eo] перейдет в [ES]
и максимальная скорость при этом будет
равна Vmax=k2[ES]=k2[Eo]. В это же время скорость
реакции равна V=k2[ES]. Через отношение
этих скоростей выразим [Eo]/[ES]: V/Vmax=
[ES]/[Eo] В уравнении (III) произведем замену
отношения [Eo]/[ES] на Vmax/V и получаем: V =
Vmax[S]/(Km+[S]) Это и есть уравнение
Михаэлиса-Ментен.
12. Ингибирование ферментов. Конкурентное ингибирование.
Ответ. Ингибитором называется вещество, вызывающее специфичное снижение активности фермента. Таким образом, неорганические кислоты и тяжелые металлы ингибиторами не являются, а являются инактиваторами, так как снижают активность многих ферментов, т.е. действуют неспецифично. Можно выделить два основных направления ингибирования: по прочности связывания фермента с ингибитором ингибирование бывает обратимым и необратимым; по отношению ингибитора к активному центру фермента ингибирование делят на конкурентное и неконкурентное. При необратимом ингибировании происходит связывание или разрушение функциональных групп фермента, необходимых для проявления его активности. Пример связан с ингибированием ацетилсалициловой кислотой (аспирином) ключевого фермента синтеза простагландинов – циклооксигеназы. Эта кислота входит в состав противовоспалительных средств и используется при воспалительных заболеваниях и лихорадочных состояниях. Присоединение ацетильной группы к гидроксильной группе серина в активном центре фермента вызывает инактивацию последнего и прекращение синтеза простагландинов. При обратимом ингибировании происходит непрочное связывание ингибитора с функциональными группами фермента, вследствие чего активность фермента постепенно восстанавливается. Примером обратимого ингибитора может служить прозерин, связывающийся с ферментом ацетилхолинэстеразой в ее активном центре. Группа ингибиторов холинэстеразы (прозерин, дистигмин, галантамин) используется при миастении, после энцефалита, менингита, травм ЦНС. При конкурентном ингибировании ингибитор по своей структуре похож на субстрат фермента. Поэтому он соперничает с субстратом за активный центр (за контактный участок), что приводит к уменьшению связывания субстрата с ферментом и нарушению катализа. В этом состоит особенность конкурентного ингибирования – возможность усилить или ослабить ингибирование через изменение концентрации субстрата. При данном ингибировании максимальная скорость реакции остается вполне достижимой при создании высоких концентраций субстрата. Ингибирование фермента цикла трикарбоновых кислот сукцинат-дегидрогеназы малоновой кислотой, структура которой схожа со структурой субстрата этого фермента – янтарной кислоты (сукцината). Также к конкурентным ингибиторам относят антиметаболиты или псевдосубстраты, например, антибактериальные средства сульфаниламиды, схожие по структуре с пара-аминобензойной кислотой, компонентом фолиевой кислоты. При лечении сульфаниламидами в бактериальной клетке возникает конкуренция между сульфаниламидом и пара-аминобензойной кислотой при синтезе дигидрофолиевой кислоты, что и вызывает лечебный эффект. В качестве других примеров лекарственных конкурентных ингибиторов можно привести ингибитор синтеза холестерина ловастатин, обратимо ингибирующий ГМГ-S-КоА-редуктазу, противоопухолевый препарат метотрексат, необратимо подавляющий дигидрофолатредуктазу, непрямой антикоагулянт дикумарол, конкурент витамина К, антигипертензивный препарат метил-ДОФА, подавляющий активность ДОФА-декарбоксилазы, средство для лечения подагры аллопуринол, ингибирующий ксантиноксидазу. Примером конкуренции, но не ингибирования, является взаимодействие этанола и метанола за активный центр алкогольдегидрогеназы. В данном случае ингибирование, как таковое, отсутствует, но с активным центром фермента связывается тот спирт, концентрация которого больше. Данный эффект используют у пациентов с отравлением метанолом для которого этиловый спирт является антидотом.
13. Ингибирование ферментов. Неконкурентное ингибирование.
Ответ. Ингибитором называется вещество, вызывающее специфичное снижение активности фермента. Таким образом, неорганические кислоты и тяжелые металлы ингибиторами не являются, а являются инактиваторами, так как снижают активность многих ферментов, т.е. действуют неспецифично. Можно выделить два основных направления ингибирования: по прочности связывания фермента с ингибитором ингибирование бывает обратимым и необратимым; по отношению ингибитора к активному центру фермента ингибирование делят на конкурентное и неконкурентное. При необратимом ингибировании происходит связывание или разрушение функциональных групп фермента, необходимых для проявления его активности. Пример связан с ингибированием ацетилсалициловой кислотой (аспирином) ключевого фермента синтеза простагландинов – циклооксигеназы. Эта кислота входит в состав противовоспалительных средств и используется при воспалительных заболеваниях и лихорадочных состояниях. Присоединение ацетильной группы к гидроксильной группе серина в активном центре фермента вызывает инактивацию последнего и прекращение синтеза простагландинов. При обратимом ингибировании происходит непрочное связывание ингибитора с функциональными группами фермента, вследствие чего активность фермента постепенно восстанавливается. Примером обратимого ингибитора может служить прозерин, связывающийся с ферментом ацетилхолинэстеразой в ее активном центре. Группа ингибиторов холинэстеразы (прозерин, дистигмин, галантамин) используется при миастении, после энцефалита, менингита, травм ЦНС. Неконкурентное ингибирование связано с присоединением ингибитора не в активном центре, а в другом месте молекулы. Но при этом меняется структура активного центра и связь с субстратом становится невозможной. Это может быть аллостерическое ингибирование, когда активность фермента снижается естественными модуляторами, или связывание с ферментом каких-либо веществ вне активного и аллостерического центра. Например: синильная кислота (цианиды) связывается с гемовым железом ферментов дыхательной цепи и блокирует клеточное дыхание, связывание ионов тяжелых металлов (Cu2+, Hg2+, Ag+) с SH-группами белков. Также примером может служить фруктозо-1,6-дифосфат, который ингибируя аденилосукцинатсинтетазу (синтез пуриновых нуклеотидов), синхронизирует в мышце функционирование пуриннуклеотидного цикла и гликолиза, поставлющего энергию для мышечного сокращения. Особенностью неконкурентного ингибитора является его способность связываться с ферментом независимо от субстрата, т.е. изменение концентрации субстрата никак не влияет на образование комплекса фермент-ингибитор.
14. Аллостерические ферменты.
Ответ. Наряду с обычными ферментами существуют ферменты, способные не только выполнять каталитическую функцию, но и способные повышать или понижать свою каталитическую активность в ответ на определённые сигналы. Благодаря действию подобных ферментов, скорость каждой последовательности метаболических реакций изменяется почти мгновенно, приспосабливаясь к изменению потребности клетки либо в энергии, либо в каких-то строительных блоках (молекулах), необходимых для роста и обновления клеток. По строению такие ферменты отличаются от обычных ферментов. Аллостерические ферменты, как правило, построены из двух или большего числа субъединиц. Наряду с активным и субстратным центрами, они имеют аллостерический центр. Этот центр может обратимо связывать определённые метаболиты, ингибирующие или активирующие фермент. Такие метаболиты называются эффекторами. При присоединении эффектора к аллостерическому центру изменяется конформация белка в целом и конформация активного центра. В результате активность фермента изменяется. Эффекторы имеют важное значение, т. к. с их помощью осуществляется один из главных механизмов регуляции каталитической активности. Продукты в живом организме обычно образуются в результате цепочки биохимических превращений. Если этот продукт оказывается в недостатке, необходимо усиление работы системы ферментов, приводящих к его образованию. В случае накопления достаточного количества этого продукта целесообразно выключение всей системы этих реакций. Поэтому в такие цепи включены аллостерические ферменты (это, как правило, фермент, катализирующий первую реакцию цепи), которые ингибируются конечным продуктом. Этот тип ингибирования получил название ингибирования по типу обратной связи – ретроингибирования. Рассмотрим в качестве примера реакцию синтеза уридинтрифосфата (УТФ). Метаболический путь синтеза УТФ включает восемь реакций. Первая реакция катализируется ферментом карбамоилфосфатсинтетазой II. Продукт реакции карбомаилфосфат – образуется изCO2, глутамина и АТФ, служащего источником энергии; конечный продукт метаболического пути синтеза (УТФ) является его аллостерическим ингибитором. Чем больше концентрация УТФ, тем меньше скорость первой реакции, а значит, и всех остальных реакций, поскольку для них образуется мало субстратов. Таким способом скорость синтеза УТФ уравнивается со скоростью его расходования, т.е. с потребностью клетки в этом веществе. Здесь мы имеем дело с регуляцией по механизму отрицательной обратной связи. Эффекторы аллостерических ферментов могут быть как ингибиторами, так и активаторами. Часто оказывается, что сам субстрат оказывает активирующий эффект. У одного и того же фермента может быть несколько аллостерических центров.