Материал: Экзамен по БиоХимии
29.Установить соответствие : дисахарид – свойства дисахаридов
1)мальтоза- восстанавливающие 2)сахароза- невосстанавливающие 3)целлобиоз- восстанавливающие 4)лактоза- восстанавливающие 5)трегалоза- невосстанавливающие
Свойства дисахаридов
30.Остаток фруктозы входит в состав:инулина
31.К гетерополисахаридам относятся: гепарин, гиалуроновая кислота
32.К гомополисахаридам относятся: крахмал, гликоген,целлюлоза
33.При полном гидролизе целлюлозы образуется: β-D-глюкоза
34.К линейным полисахаридам относится: амилоза
35.В кишечнике животных отсутствует фермент , гидролизующий связи: β(1->4)-гликозидные
36.К структурным полисахаридам не относится:гликоген
ОБМЕН ЛИПИДОВ
Сложноэфирные связи в молекулах триацилглицеролов подвергаются ферментативному гидролизу при участии – липазы
Первичные желчные кислоты образуются непосредственно из – холестерола
Систематическое название кислоты
- дезоксихолевая – 3,12-дигидроксихолановая
- литохолевая – 3-гидроксихолановая
- холевая – 3,7,12-тригидроксихолановая
- хенодезоксихолевая –3,7- дигидроксихолановая
В образовании парных желчных кислот участвуют: таурин, глицин
С участием желчных кислот происходит: эмульгирование липидов, всасывание высших жирных кислот
Желчные кислоты:
- дезоксихолевая - вторичная
- таурохолевая – вторичная
- хенодезоксихолевая – первичная
- гликохолевая – первичная
-синтез в кишечнике – вторичные желчные кислоты
- синтез в печени - первичные желчные кислоты
Гидролиз триацилглицеролов панкреатической липазой происходит: постадийно, вначале 1 и 3 связи, затем 2
Образование хиломикронов локализовано: в клетках эпителия кишечника
Липопротеинкиназа локализована – в эндотелии капилляров
Составные компоненты липопротеинов крови –
- хиломикроны – 2% белок, 8% холестерол, 7 % фосфолипиды, 80% триацилглицерол
- ЛПВП - 45% белок, 25% холестерол, 25 % фосфолипиды, 5% триацилглицерол
Локализация синтеза и функции липопротеинов –
- хиломикроны – образуются в эпителии тонкго кишечника , функция – транспорт триацилглицеролов
- ЛПВП – синтезируются в печени, функция – транспорт холестерола
В ресинтезе триацилглицеролов в клетках слизистой оболочки тонкого кишечника учавствуют - 2-моноацилглицерол и ацил-КоА
Установить соответствие:
гидролитическое расщепление фосфолипида
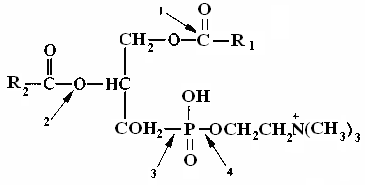
катализирует фермент:
а) фосфолипаза A1 1а, 2г, 3б, 4в
б) фосфолипаза С
в) фосфолипаза D
г) фосфолипаза A2
установить последовательность этапов формирования и транспорта хиломикронов в организме – эпителиальные клетки кишечника, лимфатическая система кишечника, грудной лимфатический проток, кровяное русло, поверхность клеток жировой ткани, клетки жироввой ткани
тканевая липаза (триглицеридлипаза) активируется гормонами – глюкогоном, адреналином
Основной путь катаболизма высших жирных кислот: β-окисление
Окисление жирных кислот локализовано: в матриксе митохондрий
Указать фермент:
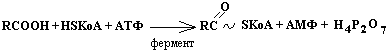
2) ацил-КоА-синтетаза
Транспорт активированных жирных кислот из цитозоля В митохондрии осуществляется главным образом с помощью:
1) карнитина
Установить последовательность реакций β-окисления жирных кислот:
1) тиолазная реакция
2) первое дегидирование
3) второе дегидрирование
4) активация жирной кислоты
5) гидратация
4,2,5,3,1
Фермент бета-окисления высших жирных кислот ацил-КоА дегидрогеназа содержит кофермент – фад
Соотнести процесс и регуляторный фермет, ингибитор –
- ацетил-КоА-карбоксилаза – синтез жирных кислот
- карнитинацетилтрансфераза – бета-окисление
- цитрат – синтез жирных кислот
- малонил-КоА – бета-окисление
Каждая стадия β-окисления высших жирных кислот сопровождается образованием количества АТФ: 5
Число стадий β-окисления жирной кислоты, содержащей число атомов углерода, равное n, составляет: n/2 - 1
Количество АТФ, образующихся при полном окислении пальмитиновой кислоты до СО2 и Н2О: 131
К кетоновым телам относятся:
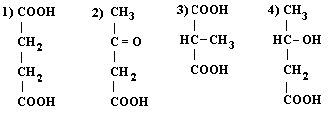 2,4
Кетонемия и кетонурия наблюдаются при – голодании, сахарном диабете
Предшественником для синтеза кетоновых тел является: ацетил-КоА
Структурным предшественником для синтеза жирных кислот служит: ацетил-КоА
Мультиферментный комплекс синтетаза высших жирных кислот локализован: в цитозоле
Особенно активно липогенез протекает: в печени, в жировой ткани
Конечным продуктом биосинтеза жирных кислот, катализируемого синтетазным комплексом, является – пальмитиновая кислота
Переносчиками ацетил-КоА через митохондриальную мембрану служат – цитрат, карнитин
В состав ацилпереносящего белка (АПБ) входит витамин – пантотеновая кислота
Карбоксилирование ацетил-КоА в процессе биосинтеза жирных кислот необходимо – для превращения СН3-ацетил-КоА в более реакционноспособную метиленовую группу СН2 малонил-КоА
Биотин в качестве кофермента входит в состав ферментов – пируваткарбоксилаза, ацетил-КоА-карбоксилазы
Установить последовательность реакций синтеза жирных кислот, катализируемых ферментами комплекса синтетазы жирных кислот – АПБ-ацетилтрансфераза,АПБ-малонилтрансфераза, бета-кетоацил-АПБ-синтаза, бета-кетоацил-АПБ-редуктаза, бета-гидроксиацил-АПБ-дегидратаза, еноил-АПБ-редуктаза
Донором восстановительных эквивалентов в реакциях биосинтеза высших жирных кислот является – НАДФНН+
Регуляторным ферментом синтеза высших жирных является – ацетил-КоА-карбоксилаза
Активатором регуляторного фермента синтеза жирных кислот ацетил-КоА-карбоксилазы является – цитрат
Биосинтез мононасыщенных жирных кислот идет из насыщенных при участии ферментов – дезатураз жирных кисллот
Локализация, метаболиты и коферменты процессов –
- биосинтез жирных кислот – малонил-КоА, происходит в цитоплазме, необходим НАДФНН+, биотинзависимый процесс
- бета-окисление жирных кислот – образуется АТФ, НЕОБХОДИМЫ над+ и ФАД
Глицерол, образующийся при распде триацилглицеролов, независмо от пути его дальнейшего превращения в организме прежде всего: фосфоримлируется
Общим интермедиатом для синтеза триацилглицеролов и глицерофосфолипидов является: фосфатидная кислота
Фосфатидная кислота синтезируется в процессе: эстерификации глицерол-3-фосфата
В синтезе триацилглицеролов из фосфатидной кислоты участвуют ферменты – фосфатаза, ацилтрансфераза
Биосинтез глицеролфосфолипидов локализован: в цитозоле
Синтез цитидиндифосфохолина осуществляется – с затратой атф, при участии фермента холинкиназы, при участии холинфосфатцитидилтрансферазы
Донором метильных групп для синтеза фосфатидилхолина из фосфатидилэтаноламина является – S-аденозилметионин
Фосфатидилэтаноламин образуется при конденсации диацилглицерола и – ЦДФ-этаноламина
ЦТФ в синтезе глицерофосфолипидов выполняет функции – переносчика активированных интермедиатов
Структурным предшественником всех углеродных атомов холестерола является – ауетил-КоА
первая стадия синтеза холестерола заканчивается образованием – мевалоната
донором восстанвительных эквивалентов в биосинтезе холестерола является – НАДФНН+
из пирофосфомевалоновой кислоты образуется изопентилпирофосфат в результате ферментативных реакций – декарбоксилирования и дефосфорилирования
В результате реакции конденсации изоппентилпирофосфата и диметилаллилпирофосфата образуется – геранилпирофосфат
Непосредственным предшественником полициклических спиртов является – сквален
Первым продуктом циклизации сквалена является – ланостерол
Гиперхолестеринемия связана с повышением концентрации в крови – ЛПНП, ЛПОНП
Обмен белков и аминокислот
Биологическая ценность пищевого белка зависит от:
Присутствия незаменимых аминокислот
Аминокислотного состава
Установить соответствие:
Азотистый баланс
Положительный – беременность, старение
Отрицательный – тяжелое заболевание, беременность
Азотистое равновесие – взрослый человек, полноценная диета
Установить соответствие:
Пептидазы
Экзопептидазы – карбоксипептидаза, аминопептидаза
Эндопептидазы – трипсин, эластаза, пепсин, химотрепсин
Расщепление белков в желудке катализируется:
Пепсином
Гастриксином
В расщеплении белков до пептидов в кишечнике участвуют:
Эластаза
Трипсин
Химотрипсин
Механизм образования активных пептидаз из проферментов включает:
Локальный протеолиз
Изменение третичной структуры
Установить соответствие:
Пепсиноген – пепсин, соляная кислота
Трипсиноген – трипсин, энтеропептидаза
Химотрипсиноген – трипсин
Трипсин гидролизует пептидные связи, образованные:
Карбоксильными группами аминокислотных остатков лизина и аргинина
Химотрипсин осуществляет гидролиз пептидных связей, образованны при участии:
Карбоксигрупп ароматических аминокислот
Карбоксипептидаза А гидролизует пептидные связи, образованные С-концевыми аминокислотами:
Ароматическиими
Аланинаминопептидаза гидролизует пептидную связь, образованную N-концевыми аминокислотами:
Аланином
Расщепление пептидов до свободных аминокислот в тонком кишечнике завершают:
Трипептидаза
Дипептидаза
(продукт гниения белка в кишечнике)
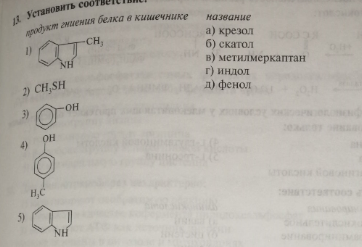
БВДАГ
Установить соответствие:
(Аминокислота, продукт распада аминокислоты микрофлорой кишечника)
Орнитин - путресцин
Цистеин – метилмеркаптан
Тирозин – фенол, скатол
Лизин – кадаверин
Триптофан – индол
Обезвреживание токсичных продуктов гниения белков происходит при участии:
3-фосфоаденозин -5’-фосфосульфата
Уридиндифосфоглюкуроновой кислоты
Транспорт аминокислот через клеточные мембраны происходит:
При участии фермента у-глутамильного цикла
Посредством вторично-активного транспорта
Глутатион является трипептидом:
у-глутамил-цистеинил-глицин
Фермент y-глутамильного цикла у-глутамилтрансфераза катализирует процесс:
Переноса транспортируемой аминокислоты на у-глутамильную группу глутатиона
На ресинтез глутатиона в у-глутамильном цикле затрачивается колличество молекул АТФ:
3
Установить последовательность реакций в процессе окислительного дезаминированиы аминокислот:
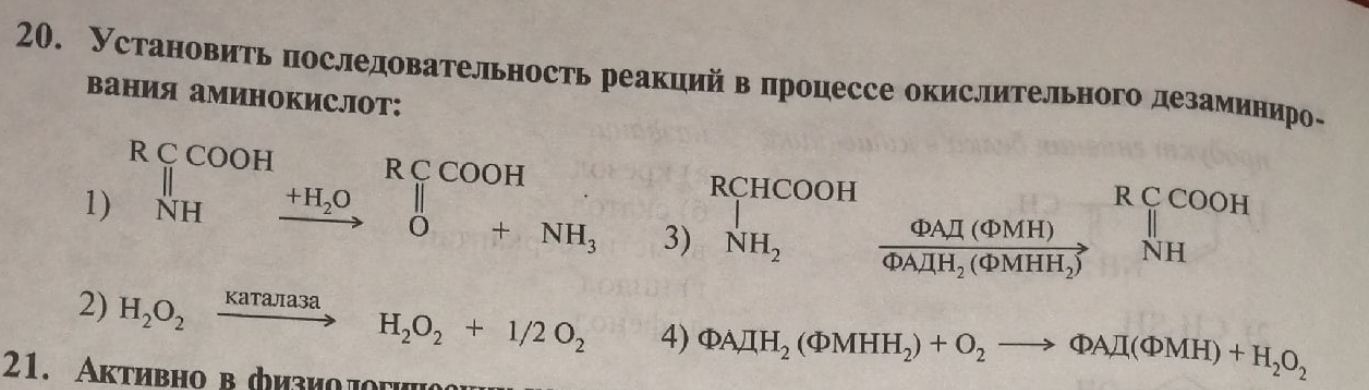
3142
Активно в физиологических условиях у млекопитающих протекает окислительное дезаминирование только:
L-глутаминовой кислоты
Установить соответствие:
Прямое окислительное – аланин
Трансдезаминирование – валин, глутаминовая кислота
Неокислительное дезаминирование – цистеин, серин
Для глутаминовой кислоты нехарактерно:
Подвергается неокислительному дезаминированию
Процесс неокислительного дезаминирования характерен для:
Серина, цистеина
Продуктами неокислительного дезаминирования цистеина являются:
Пируват, h2S, NH3
При внутримолекулярном дезаминировании аминокислот образуются:
Непредельные кислоты
Установить соответствие:
( фермент, катализируемая реакция)
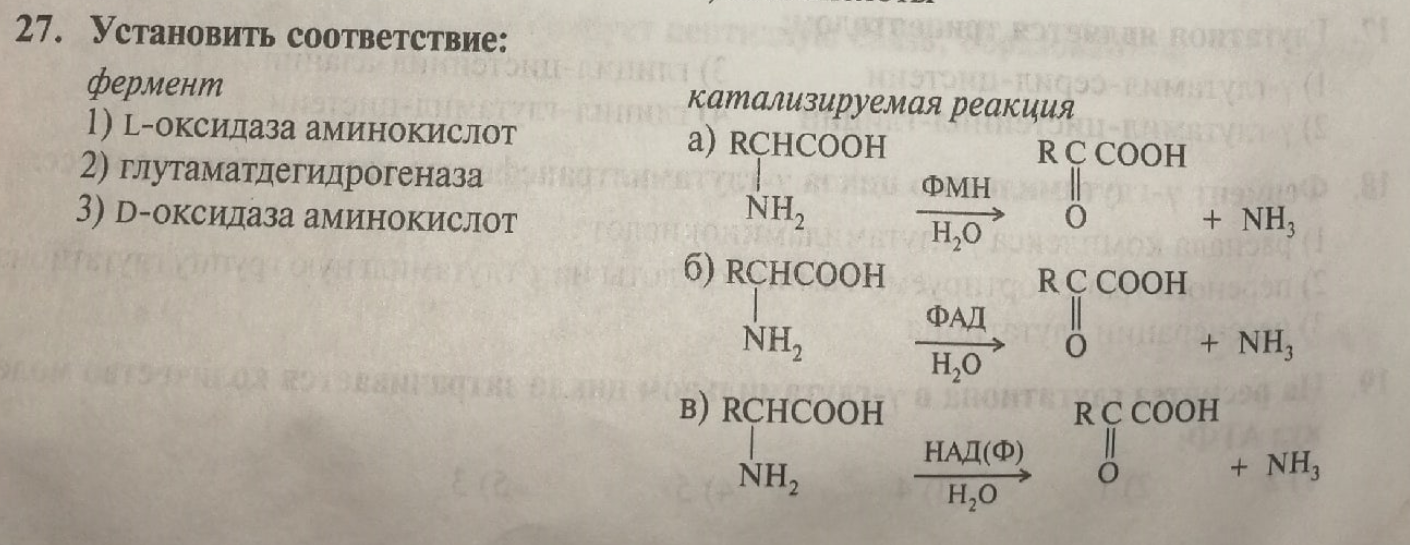
БВА
Трансаминирование – процесс межмолекулярного переноса аминогрупп от:
а-аминокислоты на а-кетогруппу
В пиридоксальфосфатзависимых ферментах пиридоксальфосфат связан карбонильной группой с апобелком фермента через:
e-аминогруппу лизина
Для аминотрансфераз нехарактерно:
Катализируют необратимую реакцию
Используют АТФ как источник энергии
Аминотрансферазы играют роль:
В синтезе заменимых аминокислот
В дезаминировании аминокислот
Пиридоксальфосфат не входит в состав фермента, катализирующего процесс: Окислительного дезаминирования L-аминокислот
32) Непрямое дезаминирование аминокислоты катализируются ферментами: Аминотрасферазой, Глутаматдегидрогеназой
Биогенные амины образуются из аминокислот в результате реакции: a-декарбоксилирования
Установить соответствие:
(аминокислота, продукт ее a-декарбоксилирования)
Гистидин-гистамин
Тирозин-тирамин
Орнитин-путресцин
Глутаминовая кислота – у-аминомасляная кислота
5-окситриптофан – серотонин