Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
но подобное взаимодействие (Shao et al., 2004, цит. по Автономова, Краснопольская, 2007). Макрофаги представляют собой одно из важнейших звеньев иммунной системы, поскольку способны к фагоцитозу и синтезу цитокининов, в частности, интерлейкинов: ИЛ-1, ИЛ-12, фактора некроза опухолей-α, а также оксида азота, токсичного для клеток опухолей и бактерий (Lin et al., 2003). Полисахариды, связываясь с TLR на поверхности эпителия, активируют выработку хемокинов, привлекающих к этому месту клетки врожденного иммунитета – дендридные клетки, нейтрофилы и моноциты, дифференцирующиеся в макрофаги и осуществляющие фагоцитоз. Таким образом, применение β-1,3- D-глюкана способствует стимуляции иммунной системы, что может использоваться как для профилактики иммунодефицитных состояний, так и для их лечения. Описаны и другие ценные свойства полисахаридов грибов (антимикробные, противовирусные, гиполипидемические). В Японии распространены фармокопейные препараты на основе грибных глюканов, которые составляют около 30% рынка онкостатиков и иммунокорректоров (Бабицкая, 2002). В настоящее время прошли клинические испытания и приобрели статус распространенных лекарственных средств, допущенных к применению в Японии и других странах ЮгоВосточной Азии, три препарата: лентинан, шизофиллан и крестин, основу которых составляют грибные полисахариды, обладающие противоопухолевой и иммуностимулирующей активностью (Карапетян и др., 2007).
Интерес исследователей вызывают полисахариды, выделенные из плодовых тел G. lucidum, которые включают глюконовую кислоту и полиглюканы (Бисько и др., 2001). Глюканам отводят ведущую роль в активации макрофагов (Hsu, et al., 2005). Под их действием происходит также стимуляция нейтрофильного фаго-
цитоза (http://www.fito.kiev.ua/b_lin_chi.php). Полисахариды в смешанной культуре лимфоцитов способны усиливать формирование цитотоксических Т-лимфоцитов, как полагают, за счет стимуляции дифференцировки клеток-предшественников в Т- киллеры. Главная иммунофармакологическая характеристика полисахаридов G. lucidum проявляется в постоянной Т- клеточнозависимой иммуностимуляции и действии их как факторов, способствующих созреванию лимфоидных клеток (Wang et
55
al., 1997). Т. Мицуно c соавторами (Mizuno et al., 1996; Mizuno, 1999) указали на противоопухолевую активность гриба G. lucidum, и связь этого действия с компонентами полисахаридов, способными активизировать иммунную систему организма. Эти данные были подтверждены в исследованиях ГУ НИИ Новых антибиотиков им. Г.Ф. Гаузе при изучении противоопухолевых свойств экстрактов вегетативного мицелия G. lucidum, полученного в условиях погруженной культуры (Бухман, Исаков, Антимонова, 2003).
Вряде работ исследовалось гипогликемическое «начало» G. lucidum. Из экстракта плодовых тел, получаемого горячей водой, после его концентрации, диализа и хроматографического разделения, на колонках выделены гипогликемические глюканы, из которых один – ганодеран В, имеющий молекулярную массу 3600 кДа, оказался главным компонентом. Ганодеран В содержит 1,3-В и 1,6-В-связанные глюкопиранозильные фрагменты (Hikino et al., 1985).Он увеличивает уровень инсулина в крови как у нормальных, так и у глюкозонагруженных мышей.
Особую группу биологически активных веществ, обнаруженных в G. lucidum составляют тритерпены – низкомолекулярные соединения, обладающие гиполипидимическими, противовоспалительными, гепатопротекторными, антиаллергическими, а также противовирусными эффектами. Водные и спиртовые экстракты мицелия, плодовых тел и спор, а также выделенные из них индивидуальные вещества, в частности, тритерпены, проявляли в опытах in vitro значительную противоопухолевую актив-
ность (Тадаши и др., 1998; Gao, Zhou, 2002; Gao et al., 2002). Из плодовых тел G. lucidum было выделено около ста терпеноидов, содержащих ланостановую тетрациклическую систему и имеющих разную степень окисленности скелета (Kim, Kim, 1999; Wasser, Weis, 1999a). Многие из них характерны только для данного вида гриба. По количеству углеродных атомов скелета эти терпеноиды можно разделить на три группы: с 30 углеродными атомами (тип ганодеровых кислот); с 27 углеродными атомами (тип луциденовых кислот); с 24 углеродными атомами (тип луцидонов). Структурное разнообразие терпеноидов обусловлено также различным сочетанием кислородсодержащих заместителей, которые могут находиться при С-3, С-7, С-11, С-12, С-22, С-
56
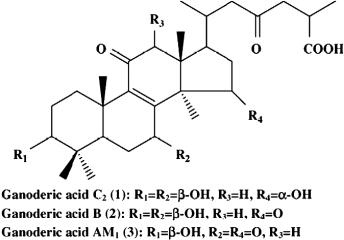
23, С-24, С-25, С-26, С-27, С-28, С-29 скелета ланостана известных терпеноидов G. lucidum. Спектр тритерпеноидного состава является штаммовой особенностью, при этом установлено, что содержание тритерпеноидов увеличивается с ростом гриба (Тадаши и др., 1998). По своему характеру ланостоноидные терпеноиды, извлеченные из мицелия, являются полифункциональными соединениями, содержащими наряду с гидроксильными группами также карбонильные, кетонного, и, в подавляющем большинстве случаев, кислотного характера. Установлено, что главные кислотные тритерпеноидные компоненты мицелия – ганодеровые кислоты (рис. 4) оказывают дозозависимый эффект на агрегацию тромбоцитов человека (Тадаши и др., 1998).
В классе терпеноидов обнаружены соединения, идентифицируемые как стеролы. Выделены ряд ганодериковых спиртов: люцидумолы А и В, ганодериолы А и F, ганодерманонтриол А, ганодерманондиол. Результаты исследований показывают, что содержание общих тритерпенов в спорах гриба было в 5-20 раз выше, чем в плодовых телах (Huie, Di, 2004).
Рисунок 4 – Химическая структура некоторых ганодеровых ки-
слот (по Russell, Paterson, 2006)
Этот факт наглядно свидетельствует о регуляторной роли тритерпенов, а вероятно, и терпеноидов в широком смысле, в процессах морфогенеза базидиомицетов. Ряд исследователей указывают, что содержание эргостерола может выступать показа-
57
тельным маркером качества спор трутовика лакированного (Yuan et al., 2006, 2007).
Структурное сходство некоторых терпеноидов G. lucidum с промежуточными продуктами синтеза холестерола у млекопитающих стимулировало проведение испытаний их in vitro и in vivo воздействия на синтез и уровень холестерола (Тадаши и др., 1998). Установлено, что ряд терпеноидов ингибирует синтез холестерола путем угнетения норма-лимитирующего энзима-3- гидрокси-3-метилглутарил-коэнзим А-редуктазы, то есть ключевого энзима биосинтеза холестерола. Ряд нативных терпеноидов и их производных, полученных химическими превращениями, тормозит биосинтез холестерола из 24,25-дигидроланостерола, в частности, стерол 121, полученный из ганодеровой кислоты, в определенной концентрации ингибирует синтез холестерола на 84% (Oshiro, 1991). Подобная способность снижать содержание холестерина в крови обнаружена у многих базидиальных грибов, относящихся к семействам Poliporaceae и Agaricaceae. Механизм снижения связывают, во-первых, со снижением скорости синтеза холестерина (в том числе за счет действия ловастатина - ингибитора синтеза мевалоновой кислоты), во-вторых, с адсорбцией холестерина на грибных полимерах и с соответственным усилением его эксрекции, и, в-третьих, с увеличением активности лецитинхолестеролацилтрансферазы, приводящим к ускорению дальнейших превращений холестерина (Краснопольская, Белицкий,
2001).
В числе наиболее распространенных причин смерти в большинстве развитых стран – коронаротромбоз и сосудистые заболевания. Главные факторы риска - гиперхолестеринемия, тромбофлебиты, гипертензия и диабет. Коронарная недостаточность развивается на фоне повышенных уровней в крови общего холестерина, холестерина низкой и очень низкой плотности, холестерина высокой плотности (Alberts et al., 1980). Считают, что большая часть (две трети) общего холестерина в организме человека имеет эндогенное происхождение (рис.5).
58
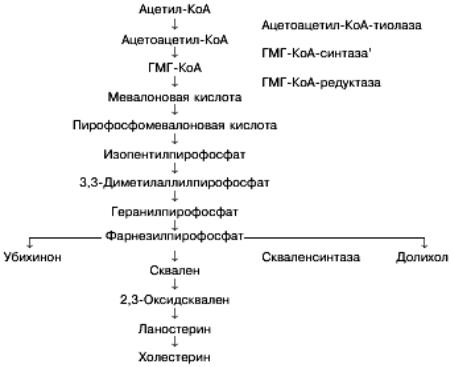
Рисунок 5 – Схема биосинтеза холестерина
Мевалонат, как свидетельствует схема, – ключевое соединение для синтеза изопреноидов. Реакция образования мевалоновой кислоты определяет скорость биосинтеза холестерина в клетках животных и человека, и обеспечивается активностью фермента ГМГ – КоА-редуктазы. Обнаруженное у мицелиальных грибов широкое распространение ингибиторов ферментов биосинтеза стеринов обусловлено особенностями их обмена, а именно - наличием у них пути биосинтеза изопреноидных соединений. Многие ингибиторы синтезируются грибами из ацетатных единиц на пути биосинтеза изопреноидов (Егоров, 1999). Первым из грибных ингибиторов ГМГ-КоА-редуктазы был описан ингибитор ML-236В, выделенный из фильтрата культуральной жидкости мицелиального гриба Penicillium citrinum 18767 (Endo et al.,
1976). Наряду с МL-236В P. citrinum образует ингибиторы ML236A и МL-236C. В 1979 году впервые из экстрактов гриба Aspergillus terreus ATCC 20542 было выделено вещество монаколин К (мевинолин, ловастатин) - конкурентный ингибитор ГМГ- КоА-редуктазы, то есть эффективный ингибитор синтеза мевалоновой кислоты (Alberts et al., 1980). Это вещество представляет собой [1S-[l(R),3,7,8(2S,4S)8а]]-1,2,3,7,8,8а-гексагидро-3,7-
диметил-8[2-(тетрагидро-4-гидрокси-6-oксо-2Н-пиран-2-
59