Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
Измерение 2; Соб. знач.: ,26149 (30,80 % инерции )
0,6
0,4 Филаменты
Пеллеты с внутр.диф
0,2
Плотные пеллеты
0,0
-0,2
-0,4
-0,6
-0,8
-1,0 |
|
|
|
|
|
|
|
|
|
Рыхлые пеллеты |
|
|
|
|
|
|
|
-1,2 |
|
|
|
|
|
|
|
|
-1,4 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
-1,4 -1,2 -1,0 -0,8 -0,6 -0,4 -0,2 |
0,0 |
0,2 |
0,4 |
0,6 |
0,8 |
1,0 |
||
|
Измерение 1; Соб. знач.: ,58130 (68,47 % |
инерции ) |
|
|
|
|
||
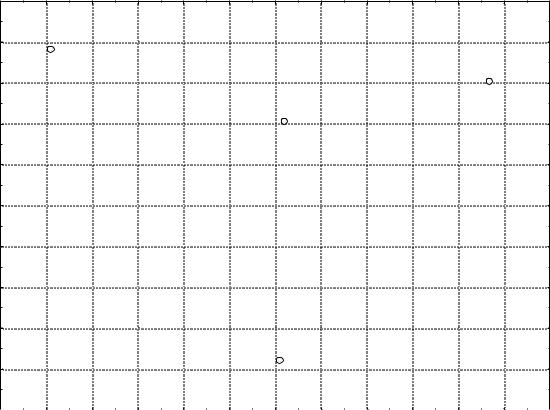
Рисунок 11 – Результаты анализа соответствий в ряду морфологических типов структур глубинного мицелия у видов афиллофороидных базидиомицетов
Характерно, что отмеченные при развитии на плотных агаризованных питательных средах межштаммовые отличия в морфологии, в данном случае почти нивелируются, таким образом, характер глубинного роста является более стабильным видовым признаком. Следует отметить, что проведенный эксперимент одним из обязательных условий предполагал единые параметры культивирования (состав и реакция среды, скорость и эксцентриситет вращения, концентрация растворенного кислорода, температура и т.д.), выбранные с учетом общепринятых подходов (Бухало, 1988). На наш взгляд, закономерны вопросы о возможных морфологических модификациях глубинных мицелиальных структур при изменениях параметров культивирования, а также касающиеся нормы реакции при реализации модификационной изменчивости у разных видов.
90
2.3 Влияние концентрации кислорода на рост и продуктивные свойства некоторых видов ксилотрофных базидиомицетов
в условиях глубинной культуры
Известно, что при выращивании глубинной культуры лимитирующим рост биомассы фактором является содержание в среде растворенного кислорода. С этих позиций, интерес представляет изучение степени накопления биомассы разных видов в зависимости от насыщения культуральной жидкости растворенным кислородом. Для эксперимента были отобраны 15 видов ксилотрофных базидиомицетов, отличающихся интенсивностью накопления биомассы, а также структурой глубинного мицелия.
Известно, что растворимость кислорода в жидкой среде сравнительно низка и зависит от температуры, давления и от концентрации растворенных, эмульгированных и диспергированных компонентов. Справочные данные свидетельствуют, что при давлении 0,1 МПа (1 кгс/см2) и температуре 30°С в 1 л дистиллированной воды максимальное количество растворенного кислорода составляет 7,5 мг, а в реальной питательной среде максимальная растворимость кислорода 2-5 мг/л. При глубинном культивировании запасы кислорода в питательной среде возобновляются при подаче аэрирующего воздуха. Скорость адсорбции кислорода увеличивается с ростом интенсивности перемешивания среды. Изменения соотношения культуральной жидкости и объема колбы, а также скорости вращения качалки изменяли концентрацию растворенного кислорода в питательной среде. Благодаря серии комбинаций подобных приемов получен размах величин от 1,0 до 7,0 мг/л растворенного кислорода. Эти возможности, несомненно, следует учитывать при выборе режимов культивирования в условиях качалок. Однако при таком подходе нельзя избежать возможных артефактов, обусловленных различием гидродинамических условий и механических воздействий. В связи с этим, для обеспечения точности эксперимента использовали специально сконструированный нагнетатель кислорода, снабженный расходомером. Частота вращения качалки была снижена до 150 об./мин. В результате стало возможным поддержание концентра-
91
ций растворенного кислорода во вращающихся колбах на желаемом уровне при сохранении единых гидродинамических параметров. При помощи подачи кислорода из баллона получили ва-
рианты, соответствующие 3,07±0,04; 4,09±0,05; 5,04±0,03; 7,05±0,04; 9,06±0,03 г/л. Минимальная концентрация кислорода, фиксируемая в колбах без подачи газа, находилась на уровне 2,0±0,2 мг/л. Измерения содержания кислорода производилось трижды в сутки в течение всего периода культивирования. Полученные результаты позволили установить существенные различия в отношении к содержанию кислорода вкультуральной жидкости у штаммов изученных видов ксилотрофных базидиомицетов
(табл. 3).
Таблица 3 – Воздушно-сухая биомасса мицелия штаммов некоторых видов ксилотрофных базидиомицетов при различном содержании кислорода в культуральной жидкости при 26ºС, на 10 сутки культивирования
(г/л)
Вид |
Штамм |
|
|
Содержание рО2, мг/л культуральной жидкости |
|||||
|
|
|
|
3,07± |
4,09± |
5,04± |
7,05± |
9,06± |
|
|
|
|
|
0,04 |
0,05 |
0,03 |
0,04 |
0,03 |
|
Продолжение таблицы 2 |
|
|
|
|
|
|
|||
1 |
2 |
|
|
3 |
4 |
5 |
|
6 |
7 |
C.perennis |
CPe-2 |
|
0,64± |
1,10± |
2,07± |
|
2,86± |
3,59± |
|
|
|
|
|
0,06 |
0,02 |
0,07 |
|
0,16 |
0,17 |
|
CPe-3 |
|
0,79± |
1,16± |
1,74± |
|
2,34± |
2,69± |
|
|
|
|
|
0,07 |
0,05 |
0,03 |
|
0,06 |
0,16 |
|
CPe-5 |
|
0,27± |
0,89± |
1,63± |
|
2,30± |
3,21± |
|
|
|
|
|
0,07 |
0,03 |
0,08 |
|
0,11 |
0,09 |
I. obliquus |
IO-1 |
|
0,71± |
2,18± |
3,07± |
|
4,14± |
4,25± |
|
|
|
|
|
0,03 |
0,07 |
0,07 |
|
0,07 |
0,13 |
|
IO-2 |
|
0,84± |
3,01± |
3,83± |
|
4,60± |
4,13± |
|
|
|
|
|
0,07 |
0,07 |
0,10 |
|
0,10 |
0,03 |
|
IO-4 |
|
0,25± |
2,20± |
3,50± |
|
4,51± |
4,19± |
|
|
|
|
|
0,04 |
0,03 |
0,17 |
|
0,06 |
0,02 |
Ph. |
Pht-2 |
|
1,58± |
1,91± |
1,77± |
|
0,87± |
0,60± |
|
tremulae |
|
|
|
0,11 |
0,04 |
0,03 |
|
0,04 |
0,05 |
|
Pht-3 |
|
1,69± |
1,75± |
1,23± |
|
0,87± |
0,68± |
|
|
|
|
|
0,12 |
0,02 |
0,10 |
|
0,13 |
0,11 |
92

Продолжение таблицы 2
1 |
2 |
3 |
4 |
5 |
6 |
7 |
|
Pht-4 |
1,33± |
1,48± |
1,19± |
0,93± |
0,52± |
|
|
0,08 |
0,03 |
0,02 |
0,07 |
0,07 |
F. pinicola |
Fpi-1 |
4,94± |
5,69± |
4,48± |
3,18± |
2,21± |
|
|
0,08 |
0,03 |
0,35 |
0,12 |
0,11 |
|
Fpi-2 |
3,23± |
4,82± |
4,06± |
2,56± |
2,48± |
|
|
0,05 |
0,01 |
0,05 |
0,12 |
0,13 |
|
Fpi-3 |
2,86± |
3,47± |
4,14± |
3,66± |
2,62± |
|
|
0,09 |
0,02 |
0,30 |
0,18 |
0,08 |
L. |
РD-01 |
1,16± |
5,78± |
6,19± |
6,39± |
6,06± |
sulphureus |
|
0,03 |
0,02 |
0,07 |
0,11 |
0,09 |
|
Аh-02 |
1,79± |
4,34± |
5,33± |
5,87± |
6,13± |
|
|
0,15 |
0,04 |
0,19 |
0,13 |
0,07 |
|
Zap-03 |
2,40± |
5,23± |
6,10± |
6,13± |
6,64± |
|
|
0,11 |
0,68 |
0,05 |
0,10 |
0,12 |
P.betulinus |
Pi-1 |
1,28± |
3,55± |
4,28± |
4,14± |
4,98± |
|
|
0,09 |
0,03 |
0,21 |
0,10 |
0,03 |
|
Pi-2 |
1,50± |
4,08± |
4,64± |
4,20± |
5,10± |
|
|
0,06 |
0,03 |
0,19 |
0,10 |
0,12 |
|
Pi-3a |
0,87± |
3,96± |
4,17± |
4,11± |
4,64± |
|
|
0,07 |
0,04 |
0,08 |
0,07 |
0,14 |
G. applanat |
G-4 |
4,61± |
3,10± |
2,72± |
1,96± |
1,98± |
um |
|
0,16 |
0,04 |
0,16 |
0,04 |
0,05 |
|
РО-01 |
3,88± |
3,18± |
2,47± |
2,04± |
1,49± |
|
|
0,09 |
0,02 |
0,26 |
0,04 |
0,09 |
|
РО-05 |
4,42±0,1 |
3,77± |
3,50± |
2,48± |
1,70± |
|
|
5 |
0,01 |
0,04 |
0,08 |
0,29 |
G.lucidum |
Gl-1 |
1,63± |
2,59± |
4,23±0,1 |
4,28± |
3,79± |
|
|
0,16 |
0,02 |
2 |
0,08 |
0,10 |
|
Gl-3 |
2,06± |
3,64± |
4,82± |
4,24± |
3,39± |
|
|
0,08 |
0,03 |
0,08 |
0,15 |
0,03 |
|
Gl-6 |
2,29± |
3,04± |
4,19± |
4,11± |
3,93± |
|
|
0,09 |
0,02 |
0,05 |
0,01 |
0,08 |
B. adusta |
Bj-a-1 |
1,13± |
5,33± |
5,88± |
6,19± |
5,29± |
|
|
0,06 |
0,03 |
0,06 |
0,13 |
0,13 |
|
Bj-a-2 |
2,64± |
6,08± |
6,97± |
6,34± |
5,15± |
|
|
0,17 |
0,06 |
0,09 |
0,12 |
0,10 |
|
Bj-a-3 |
1,79± |
5,21± |
5,73± |
6,07± |
5,47± |
|
|
0,11 |
0,02 |
0,09 |
0,12 |
0,03 |
F. fomentari |
Nic-03 |
3,57± |
2,28± |
2,26± |
2,12± |
1,30± |
us |
|
0,15 |
0,01 |
0,03 |
0,11 |
0,10 |
93
Продолжение таблицы 2
1 |
2 |
3 |
4 |
5 |
6 |
7 |
|
Kn-04 |
4,46± |
3,08± |
2,86± |
2,79± |
1,55± |
|
|
0,24 |
0,02 |
0,14 |
0,14 |
0,06 |
|
Lp-05 |
3,65± |
2,12± |
2,07± |
2,50± |
1,03± |
|
|
0,21 |
0,01 |
0,03 |
0,07 |
0,03 |
P. cinnabari |
PyC-2 |
1,38± |
3,29± |
3,54± |
5,23± |
5,39± |
us |
|
0,17 |
0,01 |
0,11 |
0,07 |
0,08 |
|
PyC-4 |
2,45± |
3,77± |
4,12± |
5,36± |
5,54± |
|
|
0,22 |
0,02 |
0,06 |
0,18 |
0,18 |
|
PyC-5 |
1,45± |
3,65± |
4,02± |
5,14± |
5,00± |
|
|
0,11 |
0,02 |
0,07 |
0,04 |
0,06 |
T. |
Trw-1 |
4,16± |
4,50± |
3,90± |
2,36± |
2,31± |
versicolor |
|
0,14 |
0,01 |
0,16 |
0,12 |
0,11 |
|
Trw-2 |
4,86± |
4,85± |
4,48± |
2,97± |
2,39± |
|
|
0,08 |
0,03 |
0,11 |
0,09 |
0,09 |
|
Trw-3 |
3,41± |
4,75± |
4,47± |
2,72± |
1,88± |
|
|
0,20 |
0,03 |
0,13 |
0,03 |
0,08 |
H. annosum |
Han-1 |
2,81± |
0,89± |
0,86± |
0,57± |
0,16± |
|
|
0,20 |
0,01 |
0,05 |
0,04 |
0,03 |
|
Han-2 |
2,05± |
1,11± |
0,94± |
0,75± |
0,37± |
|
|
0,25 |
0,01 |
0,02 |
0,04 |
0,07 |
|
Han-3 |
2,29± |
1,12± |
0,99± |
0,72± |
0,23± |
|
|
0,20 |
0,02 |
0,05 |
0,01 |
0,03 |
F. hepatica |
Fh-1 |
0,50± |
2,89± |
3,64± |
4,05± |
6,01± |
|
|
0,01 |
0,02 |
0,10 |
0,03 |
0,07 |
|
Fh-2 |
0,90± |
2,58± |
2,99± |
4,31± |
6,32± |
|
|
0,07 |
0,04 |
0,01 |
0,06 |
0,11 |
|
Fh-3 |
1,20± |
2,06± |
2,69± |
4,60± |
5,91± |
|
|
0,11 |
0,03 |
0,09 |
0,09 |
0,12 |
S.commune |
SZ-4 |
2,21± |
4,29± |
4,29± |
4,29± |
5,16± |
|
|
0,09 |
0,04 |
0,09 |
0,13 |
0,03 |
|
SZ-5 |
1,80± |
3,18± |
3,31± |
5,48± |
5,30± |
|
|
0,06 |
0,02 |
0,07 |
0,06 |
0,14 |
|
SZ-7 |
1,58± |
3,59± |
3,46± |
5,69± |
5,65± |
|
|
0,08 |
0,04 |
0,06 |
0,09 |
0,20 |
Проведенный кластерный анализ на основе метода «ближайшего соседа» позволил обнаружить следующие закономерности. Во-первых, установленные отличия по отношению к содержанию растворенного кислорода в среде прослеживаются у изученных культур на видовом уровне (рис. 12). Во-вторых, сравнительно
94