Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
большая потребность в кислороде объединяет культуры видов,
образующих |
in situ однолетние |
плодовые тела: |
C. perennis, |
|
I. obliquus, |
L. sulphureus, P. betulinus, G. lucidum, |
B. adusta, |
||
P. cinnabarinus, F. hepatica, S. commune. |
|
|||
|
Tr ee Diagr am |
f or |
15 Cases |
|
|
Single |
Linkage |
|
|
|
Euclidean |
dist ances |
|
|
C.per enni s
P.bet ul i nus
F.hepat i ca P. ci nnabar i nus
I. obl i quus
L.sul phur eus
S.com m une
G. l uci dum B. adust a Ph. t r em ul a
T.ver si col or
F.pi ni col a G . appl anat um F. f om ent ar i us
H.annosum
0 |
2 |
4 |
6 |
8 |
10 |
12 |
Linkage Dist ance
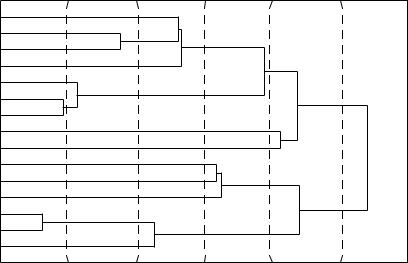
Рисунок 12 – Степень сходства различных видов ксилотрофных базидиомицетов по отношению к содержанию растворенного кислорода в среде
Еще одним интересным моментом представляется обнаруженная связь между потребностью в кислороде и характером (но не типом) гнили древесины, отмечаемым для того или иного вида в природе. Так, повышенные концентрации кислорода зачастую определяли оптимизацию накопления биомассы у видов, для ко-
торых показана заболонная (I. obliquus, B. adusta, P. cinnabarinus, S. commune) либо сплошная гниль (C. perennis), а также гниль сердцевинного типа, распространяющаяся к периферии
(L. sulphureus, P. betulinus, F. hepatica). Напротив, хорошо разви-
ваются при относительно низком содержании растворенного ки-
95
слорода в среде виды, вызывающие только сердцевинную
(Ph. tremulae, G. applanatum), реже сплошную гниль (H. annosum, F. fomentarius), а также гниль, распространяющуюся от периферии к центру (F. pinicola, T. versicolor). Названные виды образуют более или менее тесные группировки при использовании кластерного анализа.
Однако в силу относительно небольшого числа взятых в настоящий эксперимент видов, четко различающихся характером гнилей (много вариантов характера гнили и относительно мало видов), в данном случае следует говорить лишь о тенденции к связи между этой характеристикой и особенностями развития вглубинной культуре. При этом, поскольку зависимость между потребностью культур в кислороде и особенностями плодовых тел установлена на штаммовом и видовом уровне, причем существует четкая дифференциация второго признака (два альтернативных варианта: однолетние/многолетние), очевидно, что виды, формирующие in situ однолетние плодовые тела, имеют повышенную потребность в кислороде при развитии в глубинной культуре.
96
Глава 3 ОСОБЕННОСТИ РАЗВИТИЯ КСИЛОТРОФНЫХ БАЗИДИОМИЦЕТОВ – ПРЕДСТАВИТЕЛЕЙ РАЗЛИЧНЫХ ТРОФИЧЕСКИХ СТРАТЕГИЙ В УСЛОВИЯХ ЧИСТОЙ КУЛЬТУРЫ 3.1 Развитие культур видов с различными трофическими стратегиями на распространенных агаризованных средах
Для наиболее полной реализации эколого-физиологического потенциала видов и штаммов ксилотрофных базидиомицетов с различными трофическими стратегиями (облигатные паразиты, факультативные паразиты и факультативные сапротрофы) в культуре, на наш взгляд, целесообразно использование разных по составу питательных сред. Для проведения настоящего исследования из коллекции мицелиальных культур были отобраны штаммы видов – представителей облигатных паразитов (Phellinus tremulae, Sparassis crispa, Heterobasidion annosum; факультативных паразитов – Inonotus obliquus, Laetiporus sulphureus, Fomes fomentarius, Fistulina hepatica) и факультативных сапротрофов Fomitopsis pinicola, Ganoderma applanatum, G. lucidum и Picnoporus cinnabarinus. Прежде всего, интерес представляли возможные различия в скоростях и динамике роста штаммов с различной трофической стратегией на традиционных, наиболее широко используемых агаризованных средах. В эксперименте использовали три наиболее широко распространенных в практической микологии агаризованных среды: сусло-агар (СА), карто- фельно-глюкозный агар (КГА) и агар Чапека-Докса (ЧД), отличающиеся по составу. СА и КГА содержат аминный, а ЧД – нитратный азот. Источником углеводов в первой среде служит мальтоза, во второй – частично гидролизованный картофельный крахмал, в третьей – сахароза. Соотношение азотной и углеводной составляющей в средах составляет 1:18- 1:20.
В результате исследований установлены различия в особенностях развития мицелия штаммов с разными трофическими стратегиями как на каждой из изученных сред, так и при сравнении данных, полученных на разных питательных средах (табл. 4).
97

Таблица 4 – Показатели средних скоростей роста (СР) штаммов изученных видов ксилотрофных базидиомицетов на сусло-агаре (СА) и агаре Чапека-Докса (ЧД), 26°С, три повторности (р<0,05)
Вид |
(трофический |
Штамм |
|
СР, мм/сут±∆ |
|
|
статус) |
|
|
|
|
|
|
|
СА |
|
КГА |
ЧД |
||
|
|
|
|
|
|
|
I. obliquus (ФП) |
IO-1 |
5,60±0,10b* |
|
3,17 ±0,08a |
2,67±0,07 |
|
|
|
IO-2 |
5,31±0,08 b |
|
2,75±0,05a |
2,13±0,07 |
|
|
IO-3 |
3,10±0,05 b |
|
1,43 ±0,03a |
1,37±0,7a |
Ph. tremulae (ОП) |
Pht-1 |
2,60±0,03 b |
|
1,18±0,02a |
1,07±0,07 |
|
|
|
Pht-2 |
2,07±0,03 b |
|
1,11±0,02a |
0,83±0,03 |
|
|
Pht-3 |
2,16±0,02 b |
|
1,28±0,02a |
0,96±0,22 |
S. crispa (ОП) |
AI-10 |
0,87±0,03 b |
|
0,53±0,03a |
0,50±0,01a |
|
F. pinicola (ФС) |
Fpi-1 |
4,63±0,04a |
|
7,13±0,20 b |
4,53±0,03a |
|
|
|
Fpi-2 |
7,90±0,06a |
|
8,30±0,15 b |
6,30±0,10 |
|
|
Fpi-3 |
4,17±0,05 |
|
9,32±0,16 b |
6,25a ±0,13 |
L. sulphureus (ФП) |
РD-99 |
7,53±0,08 b |
|
7,07±0,03 a |
5,10±0,12 |
|
|
|
РD-01 |
9,83±0,03 b |
|
8,23±0,13a |
4,16±0,15 |
|
|
Аh-02 |
8,23±0,15 b |
|
6,10±0,10a |
3,57±0,12 |
G. applanatum (ФС) |
G-1 |
7,07±0,09a |
|
8,03±0,03 b |
6,87±0,19 |
|
|
|
G-3 |
8,77±0,15 b |
|
7,22±0,14a |
5,70±0,06 |
|
|
G-4 |
4,73±0,18 |
|
9,30±0,15 b |
7,53±0,09a |
G. lucidum (ФС) |
Gl-1 |
7,20±0,26a |
|
9,60±0,10 b |
5,30±0,15 |
|
|
|
Gl-3 |
11,53±0,29a |
|
12,07±0,03a |
5,77±0,12 |
|
|
Gl-6 |
3,70±0,21 |
|
5,97±0,14 b |
3,90±0,17a |
F. fomentarius (ФП) |
AH-96 |
10,80±0,12 b |
|
6,20±0,10a |
2,20±0,10 |
|
|
|
Nic-02 |
6,18±0,13 b |
|
4,13±0,07a |
4,10±0,10a |
|
|
Lp-05 |
7,67±0,08 b |
|
4,40±0,06a |
3,30±0,06 |
P. |
cinnabarinus |
PyC-1 |
3,95±0,03 |
|
5,17±0,09 b |
4,27±0,09a |
(ФС) |
|
PyC-2 |
5,27±0,03 |
|
6,40±0,10 b |
5,59±0,09a |
|
|
PyC-4 |
4,17±0,03 |
|
6,67±0,0 b 8 |
5,73±0,07a |
H. annosum (ОП) |
Han-1 |
1,50±0,03 b |
|
0,79±0,01a |
0,51±0,01 |
|
|
|
Han-2 |
2,23±0,07 b |
|
0,93±0,03a |
0,73±0,01 |
|
|
Han-3 |
1,82±0,02 b |
|
0,88±0,02a |
0,51±0,01 |
F. hepatica (ФП) |
Fh-1 |
5,40±0,10 b |
|
3,13±0,03a |
2,96±0,03 |
|
|
|
Fh-1а |
4,10±0,06 b |
|
2,97±0,03a |
1,19±0,06 |
|
|
Fh-5 |
5,69±0,11 b |
|
3,95±0,13a |
1,97±0,03 |
*Примечание: отсутствие индекса – минимальное значение; a – достоверное отличие от минимума; b – максимальная величина, существенно отличная от минимума или группы a при р<0,05
98
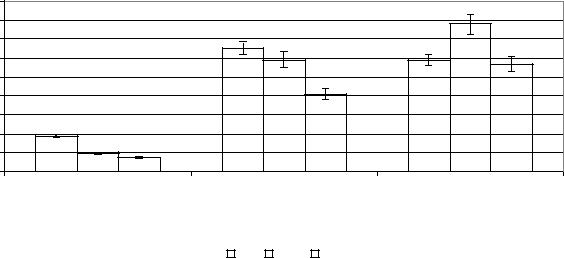
Проведенное сравнение средних скоростей роста штаммов на разных средах с использованием непараметрического теста Дункана выявило существенные отличия между облигатными паразитами и прочими трофическими группировками. Так, средние скорости роста штаммов факультативных паразитов (в сумме) на сусло-агаре выше, чем облигатных, почти в 2,5 раза (Р=0,0001), и выше, чем факультативных сапротрофов – в 1,1 раза (Р=0,001) (рис. 13). Следует отметить, что сравнительно более интенсивное развитие факультативных паразитов по сравнению с факультативными сапротрофами может объясняться не только большей долей аминного азота, наличием доступных сахаров (мальтозы), но и присутствием витаминов и прочих ростовых факторов в сусло-агаре.
Скорость роста, мм/сут
9
8
7
6
5
4
3
2
1
0
ОП |
ФП |
ФС |
Трофические стратегии видов |
||
СА |
КГА |
ЧД |
Рисунок 13 – Средние значения скоростей роста у видов ксилотрофных базидиомицетов на разных средах. Условные обозначения: ОП – облигатные паразиты; ФП
– факультативные паразиты; ФС – факультативные сапротрофы (планки погрешностей – ошибка средней, р<0,05)
Агар Чапека-Докса, как синтетическая среда, в меньшей степени отвечает трофическим требованиям культур ксилотрофных базидиомицетов. Штаммы паразитических видов (Ph. tremulae, S. crispa, H. annosum) осваивали названную среду крайне слабо. Представители факультативных паразитов (I. obliquus,
99