Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
конденсации молекулы (экстрагированные системой полярных и неполярных растворителей нативные и метанолизные опилки древесины дуба). Интерес представляло исследование ростовых показателей и интенсивности метаболизма мицелиальных культур на субстратах, содержащих разные формы лигнина, причем одна из них была получена в ходе предварительной обработки (метанолиза). Метанолиз – предварительная подготовка лигнинсодержащего материала, позволяющая существенно увеличить в нем число доступных метоксильных групп и олигомерных фрагментов лигнина. Одновременно эта процедура способствует разрыхлению субстрата и частичному высвобождению целлюлозы из лигноцеллюлозных комплексов. В итоге были подготовлены к использованию две формы лигноцеллюлозных добавок. Содержание метоксильных групп в нативных опилках составляло 18,9 мг/г материала или 0,61 мМ/г; содержание метоксильных групп в опилках, подвергшихся метанолизу, было более, чем вдвое, выше и составляло 41,6 мг/г (1,32 мМ/г). Содержание холоцеллюлозы в образцах опилок (определялось методом кислотного гидролиза по Комарову (Оболенская, 1991)) было приблизительно на одном уровне и составляло от 78,7 до 81,6%.
В качестве предварительной серии опытов была произведена попытка культивирования штаммов видов, характеризующихся разными трофическими стратегиями в природе, в чашках Петри на стерильных экстрагированных дубовых опилках двух сортов: нативных и метанолизных. Поскольку определенное заранее содержание целлюлозы в обоих источниках было одинаковым, возможное влияние на развитие мицелия тех или иных культур могло быть обусловлено только различной структурой молекул лигнина. Никаких дополнительных источников питательных веществ в состав субстратов не входило. Исходный материал для получения обеих форм источников целлюлозы и лигнина имел идентичное происхождение, а перед использованием был измельчен на одинаковые фракции, что исключает возможные артефакты. Было отмечено развитие (разное по своей интенсивности) для всех изученных культур, независимо от того, на каком субстрате преимущественно развивается вид в природе и какой тип гнили вызывает. Вероятно, это стало возможным благодаря удалению экстрактивных веществ из древесины в ходе ее подго-
135
товки. Исходя из литературных данных, мы предполагаем, что в ходе экстрагирования происходит инактивация специфичных для данного вида древесины веществ, которые могут рассматриваться в качестве одного из факторов иммунитета растения (Фен-
гел, 1988).
Установлены возможности относительно активного развития на указанных субстратах даже тех видов, которые очень слабо развивались на агаризованных средах (глава 3). Это виды – облигатные паразиты Ph. tremulae, H. annosum. На экстрагированных дубовых опилках развиваются и виды, которые не встречаются в природе на древесине не только дуба (I. obliquus, Ph. tremulae, H. annosum), но и прочих лиственных пород (H. annosum) (табл. 12). Макроморфологические признаки мицелия изученных штаммов при культивировании на опилках, подготовленных различным образом, существенно отличались. Мицелий, растущий на опилках, подвергшихся метанолизу, в большинстве случаев характеризовался высокой плотностью, был лучше выражен воздушный мицелий, хотя темпы роста нередко были ниже, чем в альтернативном варианте. Относительно низкие скорости роста можно объяснить более высокой концентрацией фенольных соединений в материале метанолизных опилок, чем в материале нативных. В высокой концентрации они могут оказать токсическое действие и ингибировать рост культуры. В вариантах с использованием нативных опилок мицелий был рыхловатый, паутинистый, воздушный мицелий не был выражен. Исключение составили штаммы – представители двух изученных видов:
L. sulphureus и P. cinnabarinus. У штаммов названных видов, на-
против, формировался относительно более густой мицелий на нативных опилках и более слабый, тонкотяжистый – на метанолизных.
Анализ и обобщение данных, полученных при изучении роста на опилках всех изученных штаммов каждого вида, показал, что виды, склонные к сапротрофности (факультативные сапротрофы) в подавляющем большинстве активнее осваивают метанолизный субстрат.
136
Таблица 12 – Средние скорости роста мицелия штаммов изученных видов на стерильных дубовых опилках в качестве субстрата (мм/сут, 26ºС, повторность трехкратная*)
Вид, штамм |
Штаммы |
Особенности субстрата |
|
|
|
|
|
|
|
Нативные опилки |
Метанолизные опил- |
|
|
|
ки |
I. obliquus |
IO-1 |
3,82±0,07 |
1,52±0,01 |
|
IO-2 |
3,60±0,06 |
1,54±0,02 |
|
IO-3 |
2,57±0,04 |
1,73±0,01 |
Ph. tremulae |
Pht-1 |
3,58±0,12 |
0,85±0,02 |
|
Pht-2 |
3,00±0,06 |
1,11±0,03 |
|
Pht-3 |
3,10±0,06 |
1,96±0,02 |
F.pinicola |
Fpi-1 |
1,51±0,11 |
2,57±0,05 |
|
Fpi-2 |
1,23±0,02 |
2,35±0,05 |
|
Fpi-3 |
1,80±0,06 |
2,15±0,04 |
L. sulphureus |
РD-99 |
2,61±0,02 |
2,87±0,04 |
|
РD-01 |
2,70±0,03 |
2,53±0,04 |
|
Аh-02 |
2,50±0,12 |
2,65±0,03 |
G. applanatum |
G-1 |
2,84±0,07 |
5,29±0,11 |
|
G-2 |
1,73±0,02 |
3,46±0,02 |
|
G-3 |
3,57±0,04 |
6,65±0,09 |
G.lucidum |
Gl-1 |
2,01±0,07 |
3,80±0,06 |
|
Gl-3 |
3,70±0,06 |
4,68±0,15 |
|
Gl-6 |
1,04±0,07 |
3,00±0,06 |
F.fomentarius |
AH-96 |
5,21±0,05 |
5,01±0,03 |
|
Nic-02 |
5,70±0,06 |
5,33±0,05 |
|
Lp-05 |
5,35±0,05 |
4,94±0,07 |
P.cinnabarinus |
PyC-1 |
3,93±0,04 |
3,72±0,05 |
|
PyC-2 |
4,07±0,04 |
3,80±0,06 |
|
PyC-4 |
2,13±0,04 |
3,57±0,04 |
H. annosum |
Han-1 |
2,08±0,03 |
1,91±0,03 |
|
Han-2 |
2,96±0,04 |
2,15±0,03 |
|
Han-3 |
2,33±0,04 |
1,95±0,03 |
F. hepatica |
Fh-1 |
5,29±0,07 |
3,60±0,06 |
|
Fh-1а |
4,85±1,01 |
2,94±0,03 |
|
Fh-5 |
4,33±0,07 |
3,17±0,04 |
*р<0,05
137
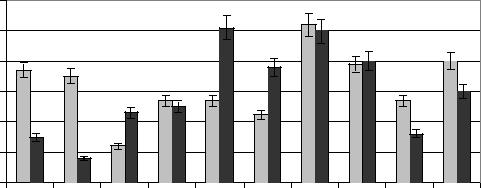
Это достоверно отмечено для F. pinicola, G. applanatum, G. lucidum, в значительно меньшей степени (в пределах ошибки опыта) – для P. cinnabarinus. Группировка биотрофных видов
(факультативные паразиты – L. sulphureus, |
F. fomentarius, |
F. hepatica, I. obliquus; облигатные паразиты – |
Ph. tremulae, |
H. annosum), напротив, лучше развивались на нативных опилках
(рис. 28).
Вероятно, сапротрофные виды эволюционно адаптированы к эффективному использованию обилия метоксильных групп в значительной степени разрушенной древесины. Это косвенно свидетельствует о стимуляции метоксильными группами ферментативной активности мицелия наиболее перспективных в этом плане видов. Для более конкретного ответа на вопрос о механизмах активизации роста мицелия штаммов факультативных сапротрофов, необходимо изучение некоторых физиологобиохимических аспектов развития мицелия на средах, содержащих метоксильные группы лигнина.
Средняя скорость роста, мм/сут
6
5
4
3
2
1
0
I |
Ph |
F |
|
sulphureus |
G |
|
|
. |
|
|
|||
|
.pinicola |
|
applanatum |
lucidum |
.cinnabarinus |
F |
|
||||||
|
obliquus tremulae |
. |
|
.fomentarius |
|
|
hepatica |
||||||
. |
. |
|
|
|
|
|
. |
|
H |
annosum. |
|||
|
|
|
|
|
|
|
|
|
|
|
|||
|
|
|
L |
|
. |
|
F |
P |
|
|
|
||
|
|
|
|
G |
|
|
|
|
|
|
|||

 Нативные опилки
 Метанолизные опилки
Рисунок 28 – Сравнительная оценка средних скоростей роста видов ксилотрофных базидиомицетов на различных субстратах (среднее по трем штаммам каждого вида, три повторности, 26ºС) (планки погрешностей – ошибка средней, р<0,05)
138
С другой стороны, с установлением возможности достаточно активного роста мицелия изученных видов на материале экстрагированных опилок, нельзя не отметить, что скорости роста штаммов всех видов в этом случае ниже средних скоростей, установленных для них на агаризованных средах. На наш взгляд, это объясняется удлинением лаг-фаз в условиях отсутствия легкодоступных сахаров и лимитированным количеством влаги в субстрате. Поэтому, для более полного раскрытия ростового потенциала штаммов в культуре целесообразно внесение некоторого количества метанолизных и нативных опилок в агаризованные среды.
6.2 Активность некоторых ферментов ксилотрофных базидиомицетов при твердофазном культивировании
Изучение активности ферментов ксилотрофных базидиомицетов проводилось при твердофазном культивировании на двух субстратах. В качестве субстратов выступали экстрагированные нативные и метанолизные дубовые опилки, пропитанные солевым раствором Чапека. Известно, что недостаток в среде легкодоступных источников углерода способствует выработке гидролитических ферментов (Решетникова, 1997). Определение ферментативной активности проводилось на 13-16 сутки роста мицелия, в момент наступления идио-фазы, о котором судили по косвенным визуальным признакам (появление капель экссудата, пигментирование). У многих видов, по сведениям некоторых авторов, в этот период отмечаются максимумы ферментативной активности.
Под общей оксидазной активностью понимают способность комплекса ферментов катализировать окисление фенольных структур лигнина при помощи молекулярного кислорода воздуха. К группе оксидазных ферментов относят лакказу, тирозиназу, а также их различные изоформы, так называемые фенолоксидазы. Такие ферменты как лакказы обладают достаточно широкой субстратной специфичностью. Они способны катализировать окисление различных органических и неорганических субстратов, а при помощи различных редокс-медиаторных агентов лакказы
139