Материал: Ильина Г.В., Ильин Д.Ю. Ксилотрофные базидиомицеты в чистой культуре
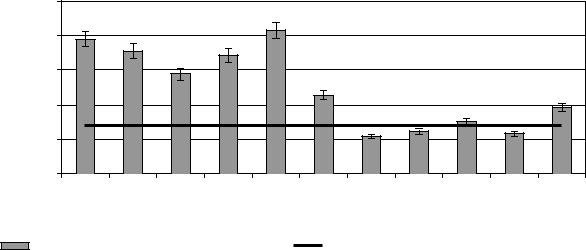
свидетельствует о связи синтеза эргостерина с процессом плодоношения. Высокие показатели получены и при исследовании штамма спорового происхождения GD-I-4. Однако показатели содержания эргостерина, определенные в мицелии полиенрезистентных штаммов G. lucidum достоверно превышают как индивидуальные, так и средние показатели, характерные для прочих штаммов (табл. 10, рис. 20).
Таблица 10 – Показатели содержания эргостерина в мицелии различных штаммов G. lucidum
Штамм |
Масса на- |
Содержание |
% эргостерина |
Среднее, |
|
вески, мг |
эргостерина, мг |
от сухой массы |
мг% |
GD II–ун1* |
1520,3±11,0 |
2,97±0,31 |
0,195±0,016 |
0,179 |
GD II–ун2* |
1477,7±14,9 |
2,63±0,54 |
0,178±0,023 |
|
GD II–ун3* |
1513,2±15,6 |
2,18±0,22 |
0,144±0,041 |
|
GD II–ун4* |
1152,8±10,1 |
1,99±0,28 |
0,172±0,034 |
|
GD II–ун5* |
997,9±7,5 |
2,07±0,11 |
0,208±0,071 |
|
Gl-1 |
890,8±9,7 |
1,01±0,18 |
0,113±0,017 |
0,076 |
Gl-3 |
1395,5±15,7 |
0,75±0,11 |
0,054±0,022 |
|
Gl-6 |
750,8±10,2 |
0,46±0,08 |
0,061±0,009 |
|
GD-I-1 |
1286,3±17,5 |
0,98±0,14 |
0,076±0,025 |
|
GD-I-2 |
1770,5±21,2 |
0,86±0,22 |
0,058±0,007 |
|
GD-I-4 |
1205,2±13,3 |
1,16±0,16 |
0,096±0,010 |
|
*полиенрезистентные штаммы; прочие – полиенчувствительные
Результаты свидетельствуют, что средние показатели содержания эргостерина в мицелии изученных полиенрезистентных штаммов превышают таковые обычных штаммов, в 2,4 раза (р<0,05). При многократном пересеве штаммов GD-II–ун1 и GDII–ун2 (устойчивых к нистатину) на среды, не содержащие нистатина, показатели содержания эргостерина несколько снижаются, но остаются достоверно более высокими. Все это делает состоятельной гипотезу о реализации у данного вида одного из предполагаемых механизмов устойчивости к повреждающему действию полиена. Важно отметить, что все выделенные полиенрезистентные штаммы G. lucidum, впоследствии проявили повышенную склонность к плодоношению в чистой культуре.
125
Copyright ОАО «ЦКБ «БИБКОМ» & ООО «Aгентство Kнига-Cервис»
% |
0,25 |
|
|
|
|
|
, мг |
|
|
|
|
|
|
|
|
|
|
|
|
|
эргостерина |
0,2 |
|
|
|
|
|
0,15 |
|
|
|
|
|
|
|
|
|
|
|
|
|
Содержание |
0,1 |
|
|
|
|
|
0,05 |
|
|
|
|
|
|
0 |
|
|
|
|
|
|
|
GD II – |
GD II – GD II – GD II – GD II – |
Gl -1 |
Gl -3 |
Gl -6 |
GD-I-1 GD-I-2 GD-I-4 |
|
ун1 |
ун2 ун3 ун4 ун5 |
|
|
|
|
|
Содержание эргостерина в разных штаммах |
Среднее для полиенчувствительных штаммов |
||||
Рисунок 20 – Содержание эргостерина в образцах мицелия раз- |
||||||
|
|
ных штаммов G. lucidum (р<0,05, планки погрешно- |
||||
|
|
стей – ошибка средней) |
|
|
|
|
В целом, практически для всех полиенрезистентных штаммов данного вида характерной особенностью является выраженная тенденция к образованию телеоморфы в условиях чистой культуры. Впервые на примере этих штаммов для нашей коллекции описано формирование развитых дифференцированных примордиев, имеющих типичную для вида структуру, на стерильном субстрате (сусло-агар) в чашках Петри и пробирках в довольно короткие сроки (9-12 суток от момента посева) (рис. 21). Это служит очередным подтверждением связи интенсивности синтеза эргостерина грибами с процессами плодообразования у базидиомицетов.
В целом, образование зачатков плодовых тел (примордиев) после хранения культуры в течение 2-3 недель, отмечено у всех без исключения штаммов, в мицелии которых обнаружено повышенное относительно средних показателей содержание эргосте-
рина (Gl-1, GD-I-1, GD-I-4).
126
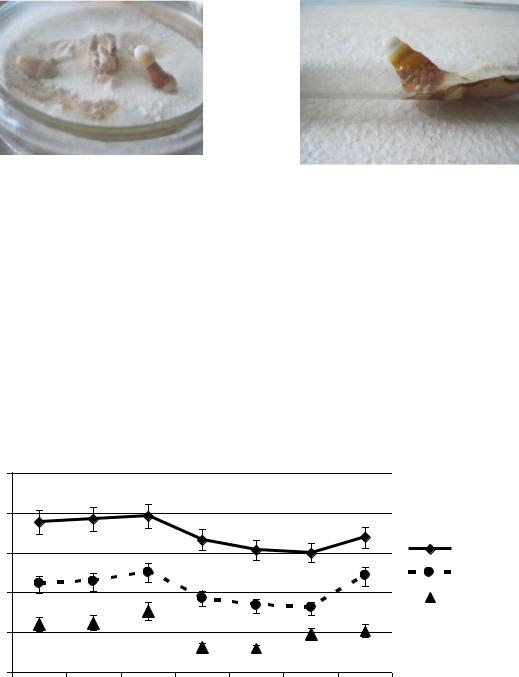
Рисунок 21 – Формирование примордиев полиенрезистентными штаммами на стерильных средах: слева штамм GD II-ун1, справа штамм GD II-ун2
На разных стадиях развития культуры содержание эргостерина в мицелии изменяется. Так, установлено, что содержание эргостерина как у обычных, так и у полиенрезистентных штаммов снижается к окончанию фазы логарифмического роста (12-15 сутки), а затем несколько увеличивается при образовании анаморф (18-21 сутки), а также при образовании примордиев (рис.
22).
Содержание эргостерина, мг%
0,25 |
|
|
|
|
|
|
0,2 |
|
|
|
|
|
|
0,15 |
|
|
|
|
|
GD II – ун1 |
|
|
|
|
|
|
|
|
|
|
|
|
|
Gl -1 |
0,1 |
|
|
|
|
|
GD-I-1 |
|
|
|
|
|
|
|
0,05 |
|
|
|
|
|
|
0 |
|
|
|
|
|
|
3 |
6 |
9 |
12 |
15 |
18 |
21 |
|
|
Сутки культивирования |
|
|
||
Рисунок 22 – Динамика содержания эргостерина в мицелии штаммов G. lucidum на разных этапах развития культуры (р<0,05, планки погрешностей – ошибка средней)
Важно отметить, что определенное после плодоношения некоторых штаммов содержание эргостерина в плодовых телах достоверно ниже, чем в вегетативных мицелиях и зачатках плодовых тел. Однако поскольку получены зрелые плодовые тела не
127
у всех изученных культур, сравнения в данном случае невозможно.
Установленные закономерности вновь свидетельствуют о сопряженности морфогенетических процессов и биосинтеза эргостерина у базидиомицетов.
Наблюдения за развитием полиенрезистентных штаммов на плотных агаризованных средах позволило обнаружить характерную последовательность событий. На первом этапе, непосредственно после посева, развивается типичный для вида дикариотичный вегетативный мицелий, характеризующийся более или менее выраженными плотностью и белизной, который можно рассматривать как «первичный».
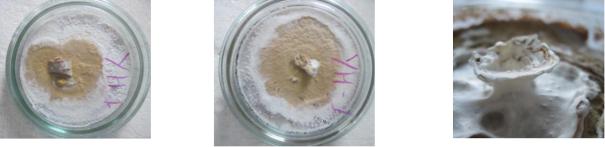
После полного освоения «первичным» мицелием площади питательной среды, поверх образовывается желтоватая бархатистая корочка, микроскопическое исследование материала которой выявило присутствие большого количества артроспор. Поверх корочки локально, как показали исследования, именно из артроспор прорастает «вторичный» белый мицелий, формирующий плотные островки. Впоследствии на этих островках начинается формирование зачатков плодовых тел (рис. 23 а)-в)).
а) |
б) |
в) |
Рисунок 23 – |
Характерные особенности развития мицелия по- |
|
|
лиенрези-стентных штаммов G. lucidum: а), б) |
|
|
штамм GD II–ун1; в) штамм GD II–ун2 |
|
Были проведены исследования по определению содержания эргостерина в разных частях мицелия: в белом «первичном», бархатистой желтой корочке, «вторичном» мицелии и самих примордиях. Полученные результаты свидетельствуют в пользу озвученного выше предположения о сопряженности морфогенети-
128
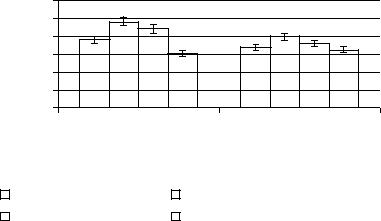
ческих процессов и интенсивности биосинтеза эргостерина у изученного вида (рис. 24).
Содержание эргостерина в сухом мицелии, % от массы
0,3
0,25
0,2
0,15
0,1
0,05
0
GDII -ун1 |
GDII -ун2 |
Штаммы
Вегетативный мицелий |
Коричневая корочка |
Примордии |
Базидиомы |
Рисунок 24 – Содержание эргостерина в разных частях мицелия колоний G. lucidum (р<0,05, планки погрешностей – ошибка средней)
5.2 Особенности толерантных к действию токсичных концентраций нистатина штаммов Pleurotus ostreatus
В качестве объектов настоящего исследования нами использованы несколько штаммов P. ostreatus, выделенные из базидиом в разные годы, а также штаммы данного вида, полученные нами в лабораторных условиях (споровые изоляты). Изучено четыре штамма P. ostreatus: ПН-10, PlО(K)-05 (тканевые изоляты); PlО-I- 09 PlО-I-10 (споровые изоляты). Предварительно были проведены исследования по установлению концентрации нистатина, лимитирующей развитие штаммов изученных видов. Установлено, что такой концентрацией является 120 ЕД/мл. Условно указанные выше штаммы названы полиенчувствительными. Кроме названных мицелиальных культур, выделенных тканевым и споровым способом, в исследования были взяты пять штаммов изученного вида, названных нами полиенрезистентными. Это споровые изоляты, проращенные из базидиоспор на средах, содержащих полиеновый макролид нистатин в токсичной концентрации. Прорастание спор P. ostreatus отмечено лишь в 5% чашек. Культураль- но-морфологические признаки мицелия полиенрезистентных штаммов изученных видов различались, как и особенности роста.
129